Wprowadzenie
Pająki należą do najbardziej zróżnicowanych drapieżników lądowych. Zasiedlają ściółkę, korony drzew, jaskinie, pustynie, mokradła i budynki. Jedne zastawiają niemal niewidoczne pułapki, inne tropią ofiary wzrokiem, polują z zasadzki albo czekają przy wejściu do nory. Ich wspólnym znakiem rozpoznawczym jest nie tyle pajęczyna rozpięta między gałęziami, ile zdolność produkowania jedwabiu i niezwykle plastyczne wykorzystanie tego materiału.
W odczycie World Spider Catalog wykorzystanym do tego opracowania figuruje 54 239 uznawanych gatunków, 4538 rodzajów i 139 rodzin. Jest to stan naukowego rozpoznania różnorodności, a nie liczba wszystkich gatunków rzeczywiście istniejących na Ziemi. Część pozostaje nieodkryta, część czeka w kolekcjach na opracowanie, a granice innych zmieniają się wraz z badaniami. [1]
Artykuł prowadzi od budowy pojedynczego pająka do obrazu całej grupy w skali świata. Wyjaśnia klasyfikację, porównuje rodziny i strategie życiowe, przedstawia wybrane kraje oraz omawia relacje pająków z człowiekiem. Dużą rolę odgrywa tu interpretacja danych: liczba gatunków, liczba osobników, biomasa i liczba zgłoszeń ukąszeń odpowiadają na odmienne pytania. Ich bezrefleksyjne zestawienie prowadzi do pozornie efektownych, ale mylących wniosków.
Opracowanie ma charakter syntezy edukacyjnej, nie pełnego katalogu wszystkich gatunków ani recenzowanej monografii taksonomicznej. Nazwy naukowe pozwalają uniknąć niejednoznaczności nazw potocznych. Numery w nawiasach kwadratowych odsyłają do bibliografii. Mapy i wykresy są autorskimi opracowaniami wskazanych danych; schematy biologiczne przedstawiają uproszczenia, a nie cechy diagnostyczne konkretnego okazu.
Najważniejsze ustalenia i przewodnik po publikacji
Światowa różnorodność pająków przekracza 54 tysiące uznawanych gatunków, lecz opis taksonomiczny jest nadal daleki od zakończenia. Najbogatszą w gatunki rodziną pozostają w zastosowanym odczycie skakunowate. W jednym porównywalnym zestawie europejskim Polska ma 854 wykazane gatunki; liczba ta opisuje katalog, nie liczebność pająków w krajobrazie. [1–3]
Główne wnioski ekologiczne są równie istotne jak liczby: pająki uczestniczą w przepływie ogromnej ilości biomasy, a ich wpływ na uprawy zależy od warunków. Wiedza o gatunkach obejmuje coraz więcej precyzyjnych doświadczeń nad zmysłami, rozwojem i właściwościami jedwabiu. Jednocześnie lokalny sukces niektórych pająków w miastach nie zastępuje ochrony wyspecjalizowanej fauny naturalnych siedlisk. [6–8, 22, 64–66, 72, 75]
| Cel lektury | Gdzie zacząć |
|---|---|
| Poznać budowę i klasyfikację | Rozdziały 2–4 oraz ryciny anatomiczne |
| Porównać kraje i regiony | Rozdziały 10–15 i 37, pełna tabela Europy |
| Zrozumieć ewolucję i izolację | Rozdziały 31–33: skamieniałości, wyspy i jaskinie |
| Poznać mechanikę ruchu i barwy | Rozdziały 35–36 i 40–41 oraz ryciny |
| Zrozumieć społeczność i ochronę | Rozdziały 43–44: genomy, endemizm i handel |
| Poznać konkretne rodzaje i gatunki | Rozdział 17 oraz atlas 32 gatunków w rozdziałach 22 i 39 |
| Zrozumieć wyniki doświadczeń | Rozdziały 23–27; metody i granice wniosków opisane przy wynikach |
| Przygotować własną dokumentację | Rozdziały 29, 38 i 45 |
| Wykorzystać dane lub grafiki | Rozdział 48 i bibliografia |
1 Jak czytać statystyki pająków
Cztery różne pytania o różnorodność
Bogactwo gatunkowe mówi, ile gatunków rozpoznano na danym obszarze. Liczebność oznacza liczbę osobników. Zagęszczenie odnosi liczbę osobników do powierzchni lub objętości próby. Biomasa określa ich łączną masę. Niewielki teren z wieloma drobnymi pająkami może mieć większe zagęszczenie, lecz mniejszą biomasę niż stanowisko z nielicznymi dużymi osobnikami. Żadna z tych miar nie zastępuje pozostałych.
Katalog gatunków jest ponadto czymś innym niż baza obserwacji. Tysiąc zdjęć jednego pospolitego gatunku nie oznacza tysiąca gatunków. Kraje z licznymi obserwatorami i rozbudowanymi muzeami mogą mieć więcej udokumentowanych stanowisk niż regiony o bardzo bogatej, lecz słabo zbadanej faunie. Nierówność dokumentacji jest szczególnie istotna przy porównywaniu tropików z Europą.
Dlaczego liczby się zmieniają
Nowy opis taksonomiczny zwiększa rozpoznaną różnorodność. Synonimizacja, czyli uznanie dwóch nazw za odnoszące się do tego samego gatunku, może ją zmniejszyć. Rozdzielenie dawnego szeroko ujmowanego gatunku na kilka odrębnych podnosi liczbę, choć nie jest dowodem, że właśnie wtedy powstały nowe organizmy. Przeniesienie gatunku do innej rodziny zmienia statystyki rodzin bez koniecznej zmiany sumy globalnej.
Nowe stwierdzenie krajowe także nie musi oznaczać ekspansji. Gatunek mógł od dawna występować w mało badanej jaskini, na trudno dostępnej wyspie albo w koronach drzew. Do wykazania realnego przesuwania zasięgu potrzeba danych historycznych, porównywalnego wysiłku obserwacyjnego i wiarygodnych oznaczeń.
Zasady przyjęte w tym opracowaniu
Globalne liczby i porównanie rodzin pochodzą z jednego odczytu WSC. Statystyki europejskie zaczerpnięto z jednej wersji bazy araneae, z zachowaniem jej jednostek geograficznych. Autorzy tej bazy zaznaczają, że listy opierają się na publikacjach, mogą zawierać niepotwierdzone oznaczenia i nie obejmować jeszcze wszystkich doniesień. [4]
Dla reszty świata podano profile krajów i wybrane, jednoznacznie datowane inwentarze. Nie utworzono z nich pozornego aktualnego rankingu. Szacunki ekologiczne mają datę publikacji i zachowują przedziały podane przez autorów. Na mapach szary kolor oznacza brak danych w wybranym zestawieniu, a nie brak pająków.
| Miara | Co rzeczywiście opisuje | Czego nie dowodzi |
|---|---|---|
| Gatunki w katalogu | Aktualnie uznane taksony | Pełna liczba gatunków istniejących |
| Gatunki wykazane w kraju | Udokumentowana fauna w zakresie źródła | Liczba osobników ani poziom zagrożenia dla ludzi |
| Rekordy obserwacyjne | Liczba zapisów, zdjęć lub okazów | Porównywalne zagęszczenie w terenie |
| Roczna masa ofiar | Przepływ biomasy w czasie | Masa pająków obecna w jednej chwili |
| Zgłoszenia ukąszeń | Obciążenie systemu zgłoszeniowego | Potwierdzona liczba ukąszeń danego gatunku |
2 Pająki w systematyce zwierząt
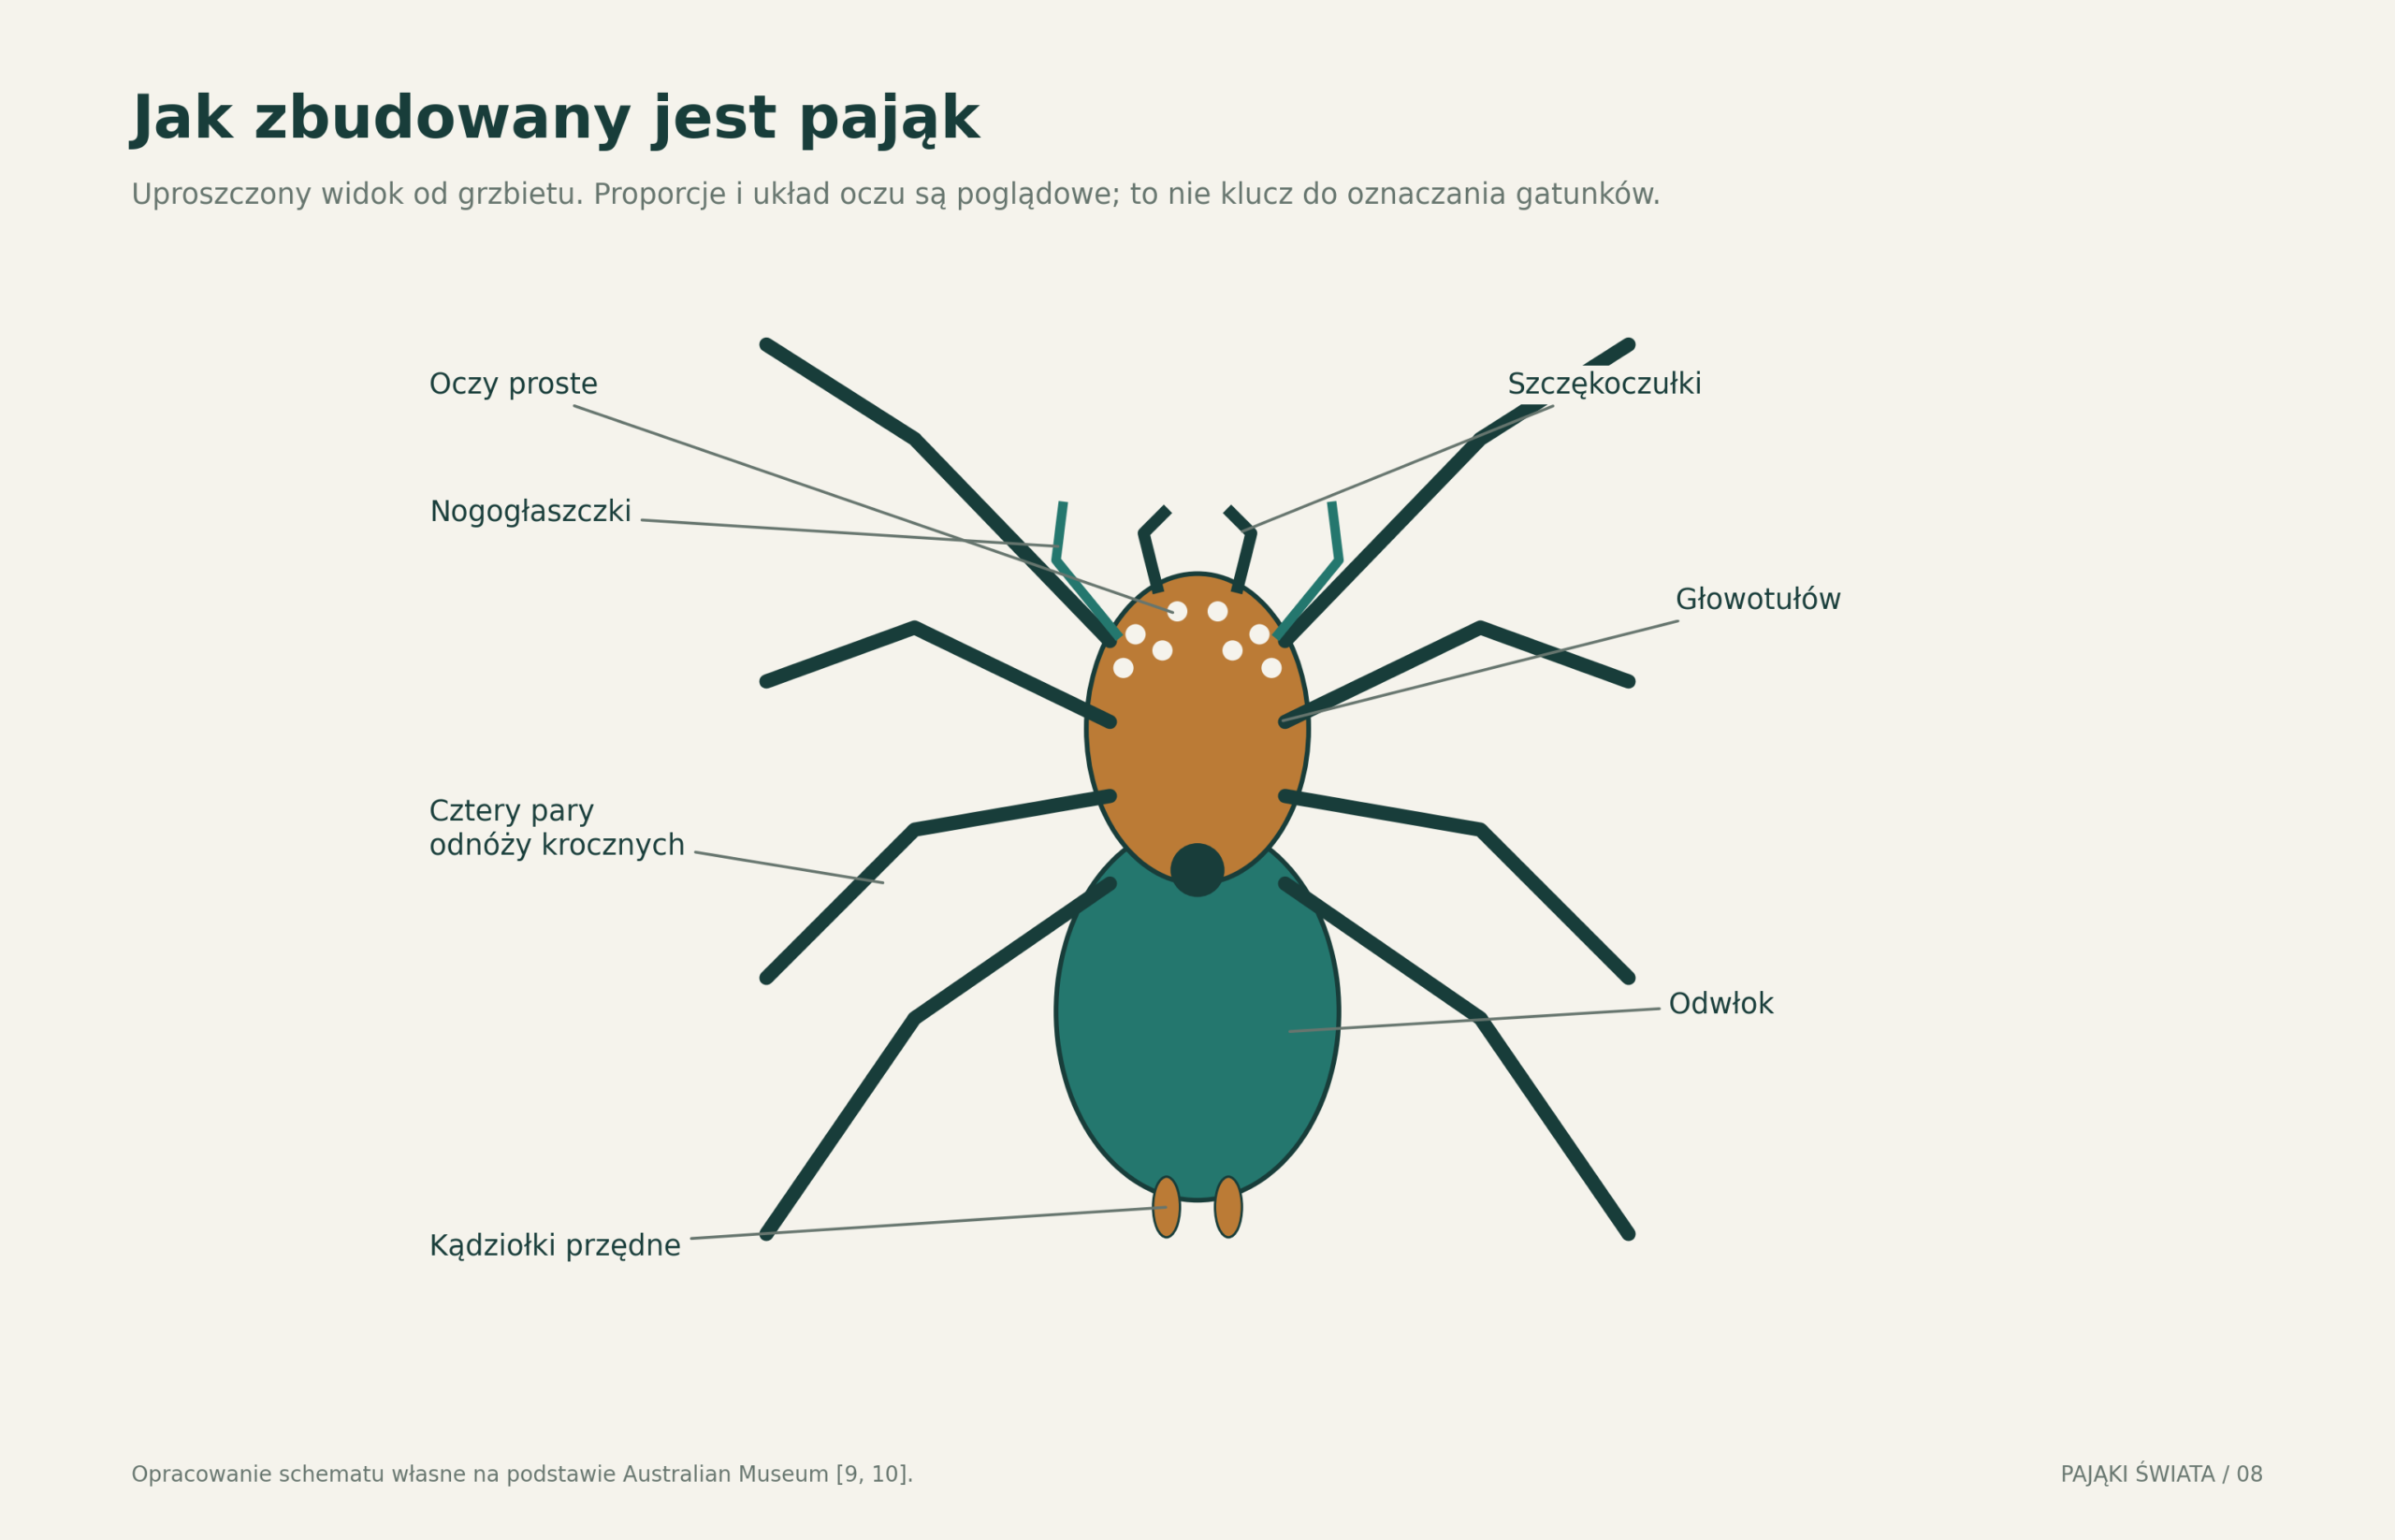
Pająki tworzą rząd Araneae w obrębie pajęczaków, czyli Arachnida. Są stawonogami, podobnie jak owady, ale nie należą do owadów. Dorosły pająk ma cztery pary odnóży krocznych, a jego ciało dzieli się na głowotułów i odwłok. Brak czułków, obecność szczękoczułków i kądziołków przędnych pomagają rozpoznać tę grupę.
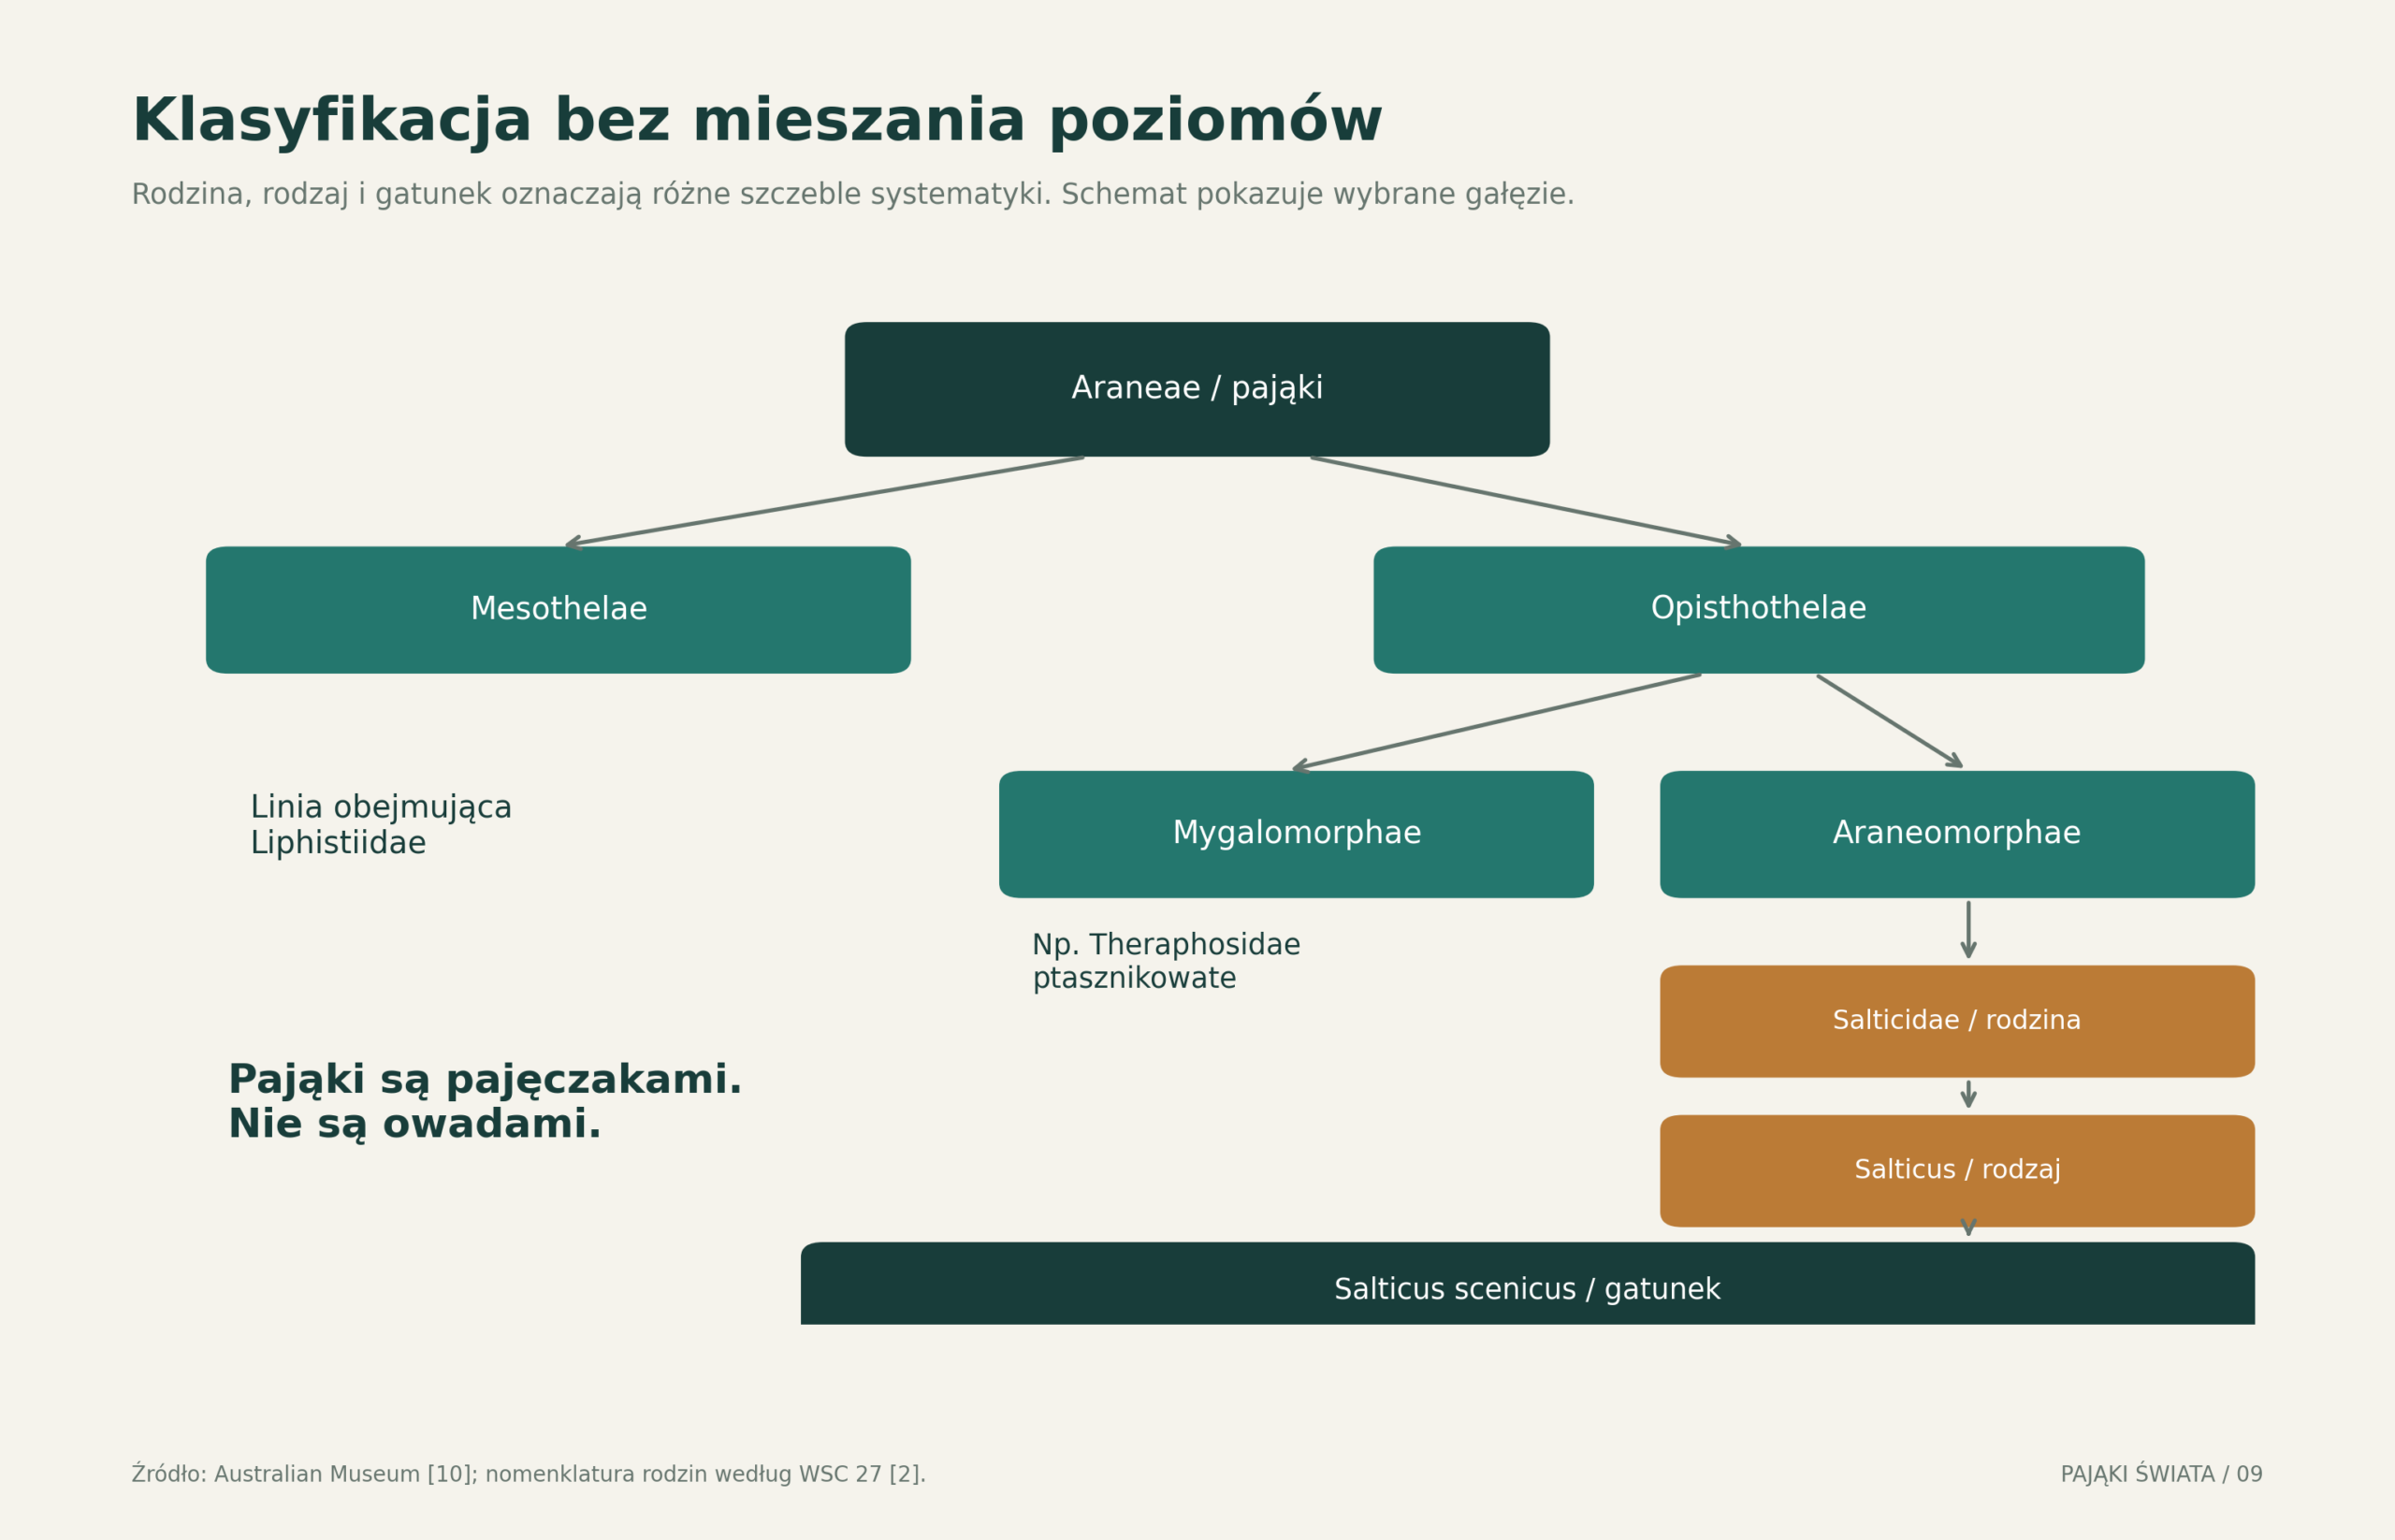
Termin „rodzaje pająków” bywa używany potocznie wobec dowolnych grup. W systematyce rodzaj ma ścisłe znaczenie. Przykładowo Salticidae to rodzina skakunowatych, Salticus to rodzaj, a Salticus scenicus to gatunek. „Pająki sieciowe”, „pająki domowe” i „pająki jadowite” nie są równorzędnymi jednostkami taksonomicznymi: opisują sposób życia, środowisko lub właściwości biologiczne.
W szerokim podziale wyróżnia się Mesothelae oraz Opisthothelae. Do drugiej grupy należą Mygalomorphae i Araneomorphae. Mesothelae zachowują wyraźne płytki na grzbietowej stronie odwłoka. Mygalomorphae obejmują między innymi ptasznikowate i wiele pająków norowych; ich kły pracują zasadniczo równolegle. U Araneomorphae, obejmujących większość znanych gatunków, kły zwykle działają przeciwstawnie. To przydatne uogólnienia, nie samodzielny terenowy klucz oznaczania. [10]
Nazwa „ptasznik” w języku polskim najczęściej odnosi się do Theraphosidae. Nie każdy duży, owłosiony pająk jest ptasznikiem. Podobnie angielskie określenie „funnel-web spider” może dotyczyć różnych grup budujących sieci z lejkiem. Pomylenie australijskich Atracidae z domowymi lejkowcowatymi w Europie prowadzi do szczególnie nietrafnych ocen ryzyka.
3 Budowa ciała i odbieranie świata
Dwa odcinki ciała i osiem nóg
Głowotułów skupia oczy, aparat gębowy i przyczepy odnóży. Odwłok mieści między innymi znaczną część układu pokarmowego, narządy rozrodcze i gruczoły przędne. Obie części łączy wąski trzonek. Sztywny oskórek chroni ciało, ale ogranicza wzrost, dlatego powiększanie rozmiarów wymaga linienia.
Szczękoczułki chwytają i przebijają zdobycz; u ogromnej większości pająków współpracują z aparatem jadowym. Nogogłaszczki, krótsze przydatki przy otworze gębowym, służą między innymi manipulowaniu pokarmem i odbieraniu bodźców. U dorosłych samców ich końcowe części są przekształcone w narządy przekazywania nasienia. Nie należy liczyć nogogłaszczków jako dodatkowej pary nóg.
Pająki mają otwarty układ krążenia. W zależności od grupy wymiana gazowa zachodzi dzięki płucotchawkom, tchawkom lub ich kombinacji. Narządy oddechowe nie są zewnętrzną cechą, którą laik powinien próbować oceniać przez chwytanie zwierzęcia. Ogólny plan budowy pomaga zrozumieć funkcjonowanie organizmu, ale oznaczenie gatunku często wymaga mikroskopu. [9]
Wzrok i mechanika drgań
Osiem oczu to częsty, lecz nie uniwersalny układ. Istnieją pająki z sześcioma, czterema lub dwoma oczami, a także formy bezoczne związane ze środowiskiem podziemnym. Sama liczba oczu nie określa jakości widzenia. Skakunowate rozpoznają wzrokiem otoczenie i precyzyjnie kierują skokiem; u wielu pająków budujących sieci ogromną rolę odgrywają bodźce mechaniczne. [21, 38]
Sieć jest zarazem konstrukcją łowną i przedłużeniem układu sensorycznego. Drgania mogą informować o uderzeniu owada, ruchach partnera, uszkodzeniu nici lub zbliżaniu się wroga. To, jak pająk napina nici i gdzie umieszcza nogi, wpływa na odbiór sygnałów. Wrażliwe włoski pozwalają także wykrywać ruch powietrza.
Dla obserwatora wynika z tego prosta zasada: dotknięcie sieci nie jest neutralnym działaniem. Wprowadza silny sygnał do otoczenia pająka i może wywołać reakcję obronną, ucieczkę lub zachowanie łowieckie. Rzetelna obserwacja zaczyna się od pozostawienia zwierzęciu przestrzeni.
4 Najważniejsze rodziny pająków
Rodzina łączy gatunki o wspólnym pochodzeniu, a niekoniecznie identycznym wyglądzie i zachowaniu. Zestawienie poniżej porządkuje najważniejsze grupy spotykane w literaturze, fotografii przyrodniczej i obserwacjach terenowych. Zasięgi rodzin bywają bardzo szerokie, podczas gdy pojedynczy gatunek może występować tylko w jednej dolinie.
Skakunowate Salticidae
Skakunowate są najbogatszą w gatunki rodziną w wykorzystanym odczycie WSC. Wiele poluje aktywnie, obserwuje ofiarę i dopiero potem wykonuje skok. Charakterystyczne duże przednie oczy sprawiają, że zwierzęta te wydają się wyjątkowo „uważne”. U licznych gatunków samce prezentują podczas zalotów barwy i ruchy odnóży. Brak sieci łownej nie oznacza braku jedwabiu: skakun może korzystać z nici asekuracyjnej i jedwabnego schronienia. [2, 45]
Osnuwikowate Linyphiidae
Ta rodzina obejmuje wiele drobnych pająków tworzących płachty i niewielkie sieci rozpięte w roślinności lub przy gruncie. Ze względu na małe rozmiary łatwo je przeoczyć, mimo dużego znaczenia w zespołach pająków. Widoczne w porannej rosie liczne „hamaki” nad trawą pokazują skalę ich obecności. Oznaczenie małego brązowego osobnika do gatunku często wymaga specjalistycznej analizy, a nie samego powiększenia fotografii. [13]
Krzyżakowate Araneidae
Z rodziną tą najczęściej kojarzy się klasyczna sieć kolista. Promienie podtrzymują konstrukcję, a nić łowna przechwytuje zdobycz. Krzyżakowate obejmują jednak również bardziej wyspecjalizowane formy łowów. Znane w Europie rodzaje to Araneus i Argiope. Obserwowanie budowy sieci pozwala śledzić powtarzalną sekwencję czynności, ale rozmiar i położenie konstrukcji zmieniają się zależnie od gatunku, wieku oraz miejsca. [13, 42]
Omatnikowate Theridiidae
Wiele omatnikowatych tworzy przestrzenne, pozornie nieregularne sieci. Należą tu zarówno pospolite niewielkie pająki związane z budynkami i roślinnością, jak i wdowy z rodzaju Latrodectus. Znaczenia medycznego kilku gatunków nie wolno przenosić na całą rodzinę. Budowa sieci i sposób obchodzenia się ze zdobyczą są często bardziej pouczające niż pobieżne porównanie barwy odwłoka.
Pogońcowate Lycosidae
Pogońcowate są zwykle naziemnymi łowcami. Liczne aktywnie poszukują ofiar, inne wykorzystują nory lub krótkie wypady z kryjówki. Charakterystyczny układ oczu ułatwia rozpoznanie rodziny. Samica nosi kokon przyczepiony do kądziołków, a młode po wyjściu z kokonu mogą przebywać na jej grzbiecie. Ten obraz jest jednym z najbardziej czytelnych przykładów opieki nad potomstwem u pająków. [18]
Worczakowate Gnaphosidae
Wiele worczakowatych jest związanych z powierzchnią gruntu, kamieniami i ściółką. Polują aktywnie, a jedwab wykorzystują między innymi do budowy kryjówek. Nocna aktywność części gatunków sprawia, że bywają niedoreprezentowane w amatorskich obserwacjach prowadzonych wyłącznie w dzień. Jednolita ciemna barwa nie wystarcza do ich oznaczenia; znaczenie mają szczegóły budowy i cechy dojrzałego osobnika.
Ukośnikowate Thomisidae
Ukośnikowate kojarzą się z zasadzaniem na kwiatach. Rozstawione na boki nogi i sposób poruszania przypominają kraba, lecz rodzina obejmuje także gatunki żyjące na korze, liściach i przy gruncie. Pająk oczekujący na kwiecie może chwytać odwiedzające go owady. Z punktu widzenia rośliny relacja nie musi być jednoznacznie korzystna, ponieważ wśród ofiar mogą znaleźć się zapylacze.
Nasosznikowate Pholcidae
Długonogie nasoszniki są znane z piwnic, narożników i innych spokojnych miejsc w budynkach. Nie są kosarzami. Tworzą sieci i mają typowy dla pająków podział ciała, choć przy niewielkim rozmiarze tułowia może być on słabo widoczny. Gatunki spotykane w domach stanowią tylko wycinek różnorodności rodziny, która obejmuje również liczne formy tropikalne i jaskiniowe.
Oonopidae
To rodzina wielu bardzo małych pająków związanych ze ściółką i innymi trudno dostępnymi mikrosiedliskami. Stanowi dobry przykład różnorodności niewidocznej w popularnych albumach. Wzrost liczby znanych gatunków zależy tu w dużym stopniu od systematycznego pobierania prób, preparatyki i rewizji muzealnych. Wykres największych rodzin pokazuje, że spektakularny wygląd nie jest warunkiem dużego bogactwa gatunkowego.
Spachaczowate Sparassidae
Spachacze, często nazywane z angielskiego huntsmanami, potrafią mieć szeroko rozstawione nogi i spłaszczone ciało ułatwiające poruszanie się pod korą. Polują bez typowej pułapki sieciowej. Ich szybki ruch i duża rozpiętość nóg wzmacniają wrażenie zagrożenia, lecz nie stanowią same w sobie miary działania jadu. Australijskie spachacze są dobrym przykładem zwierząt, których reputacja znacznie wyprzedza rzeczywiste znaczenie medyczne. [19]
Lejkowcowate Agelenidae
Do tej rodziny należą liczne pająki tworzące łowne płachty połączone z lejkowatym schronieniem. Osobnik czeka w bezpiecznym miejscu i reaguje na drgania sieci. W Europie wiele dużych pająków spotykanych w budynkach należy do rodzajów Eratigena i Tegenaria. Zwyczajowa nazwa kątniak nie wskazuje automatycznie jednego gatunku. [46]
Zodariidae
W rodzinie tej znanych jest wiele wyspecjalizowanych łowców mrówek. Specjalizacja nie oznacza prostego „zjadania wszystkiego, co ma odpowiedni rozmiar”: wiąże się z obchodzeniem obrony ofiary i doborem momentu ataku. Ta grupa dobrze pokazuje, jak szerokie jest spektrum nisz zajmowanych przez pająki, od ogólnych drapieżników po wyspecjalizowanych łowców określonych stawonogów.
Ptasznikowate Theraphosidae
Ptaszniki należą do Mygalomorphae. Obejmują formy naziemne, norowe i związane z drzewami. Ich rozmiary i długość życia przyciągają uwagę, ale słowo „ptasznik” nie opisuje typowej diety opartej na ptakach. Wiele żywi się głównie bezkręgowcami, choć większe osobniki mogą chwytać małe kręgowce. Reakcje obronne różnią się między grupami; nie wszystkie ptaszniki mają włoski parzące. [20]
Kwadratnikowate i pająki środowisk wodnych
Tetragnathidae obejmują liczne pająki sieciowe spotykane przy wodzie i w roślinności. Osobną uwagę warto poświęcić rodzajowi Dolomedes, związanemu między innymi z brzegami zbiorników. W aktualnym ujęciu WSC należy on do Dolomedidae, choć starsze materiały często umieszczają go w Pisauridae. Nie jest to zmiana zachowania zwierzęcia, tylko klasyfikacji. [43]
Atracidae i Liphistiidae
Atracidae obejmują australijskie pająki lejkowe o istotnym znaczeniu medycznym. Liphistiidae reprezentują odmienną linię Mesothelae i żyją w Azji. Obie grupy mogą zajmować nory, ale podobne schronienie nie oznacza bliskiego pokrewieństwa. Zewnętrzne podobieństwo ekologiczne trzeba oddzielać od wspólnego pochodzenia. [10, 30, 37]
Jak silnie skoncentrowane jest bogactwo gatunkowe
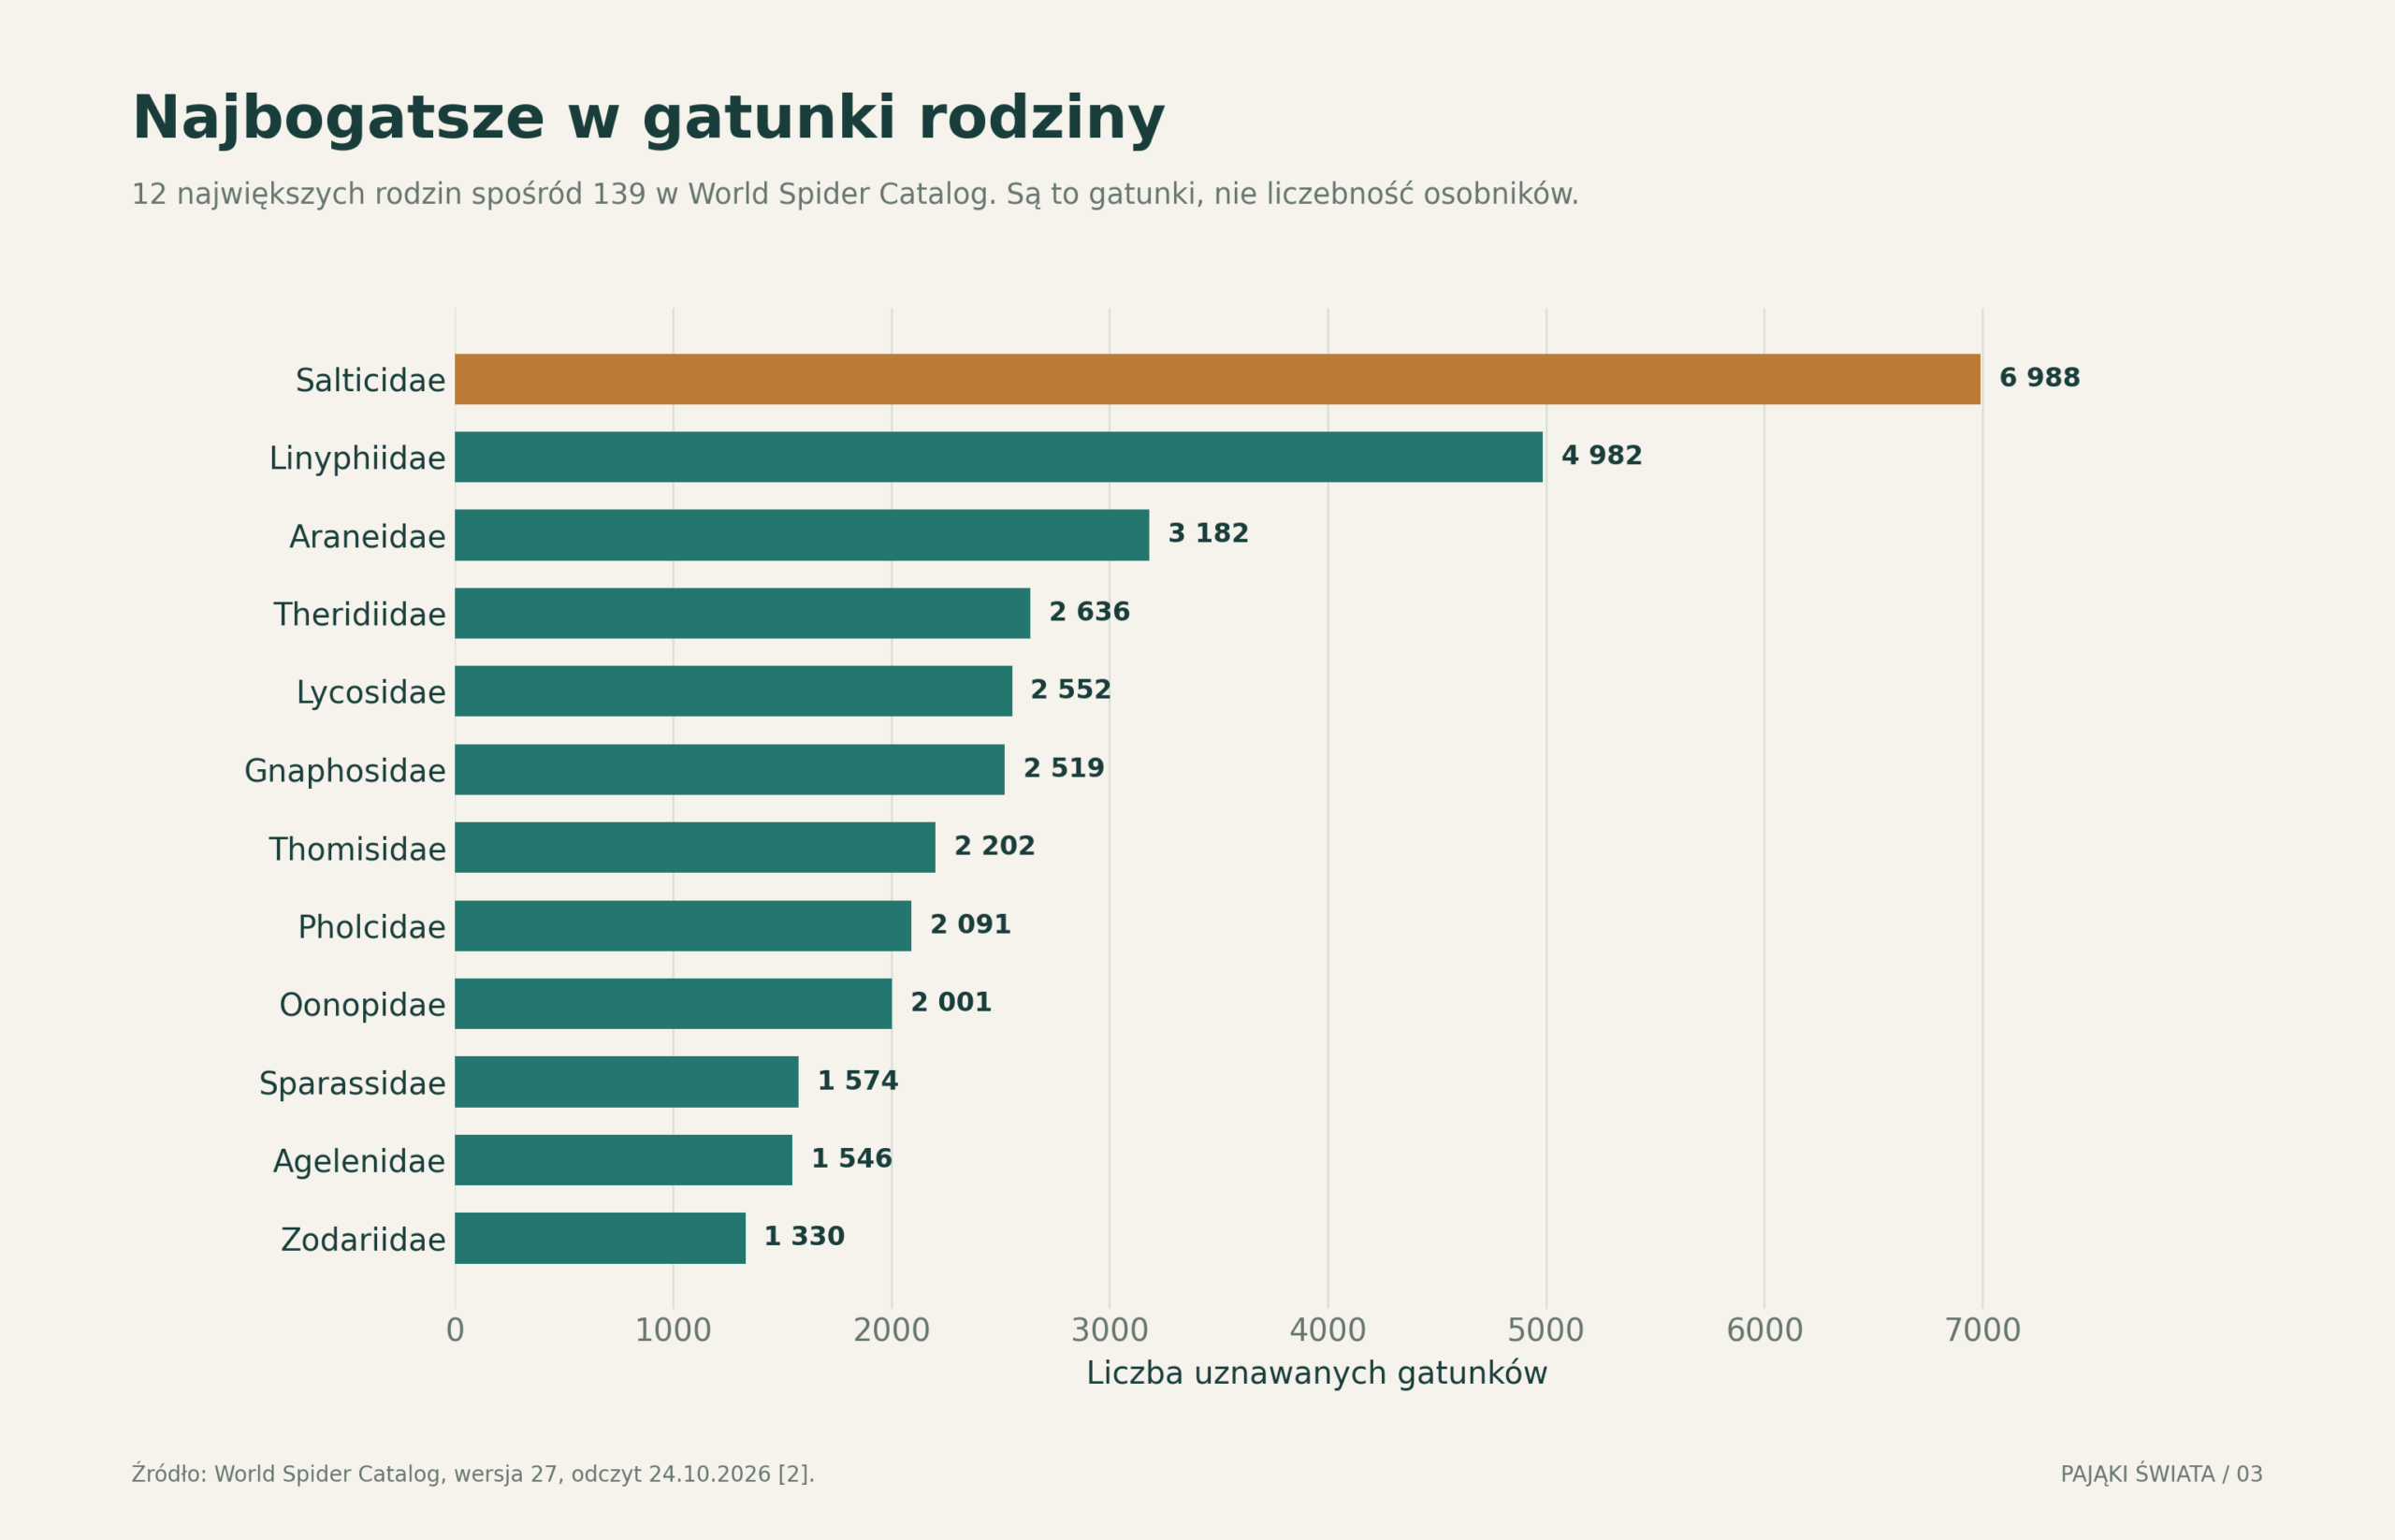
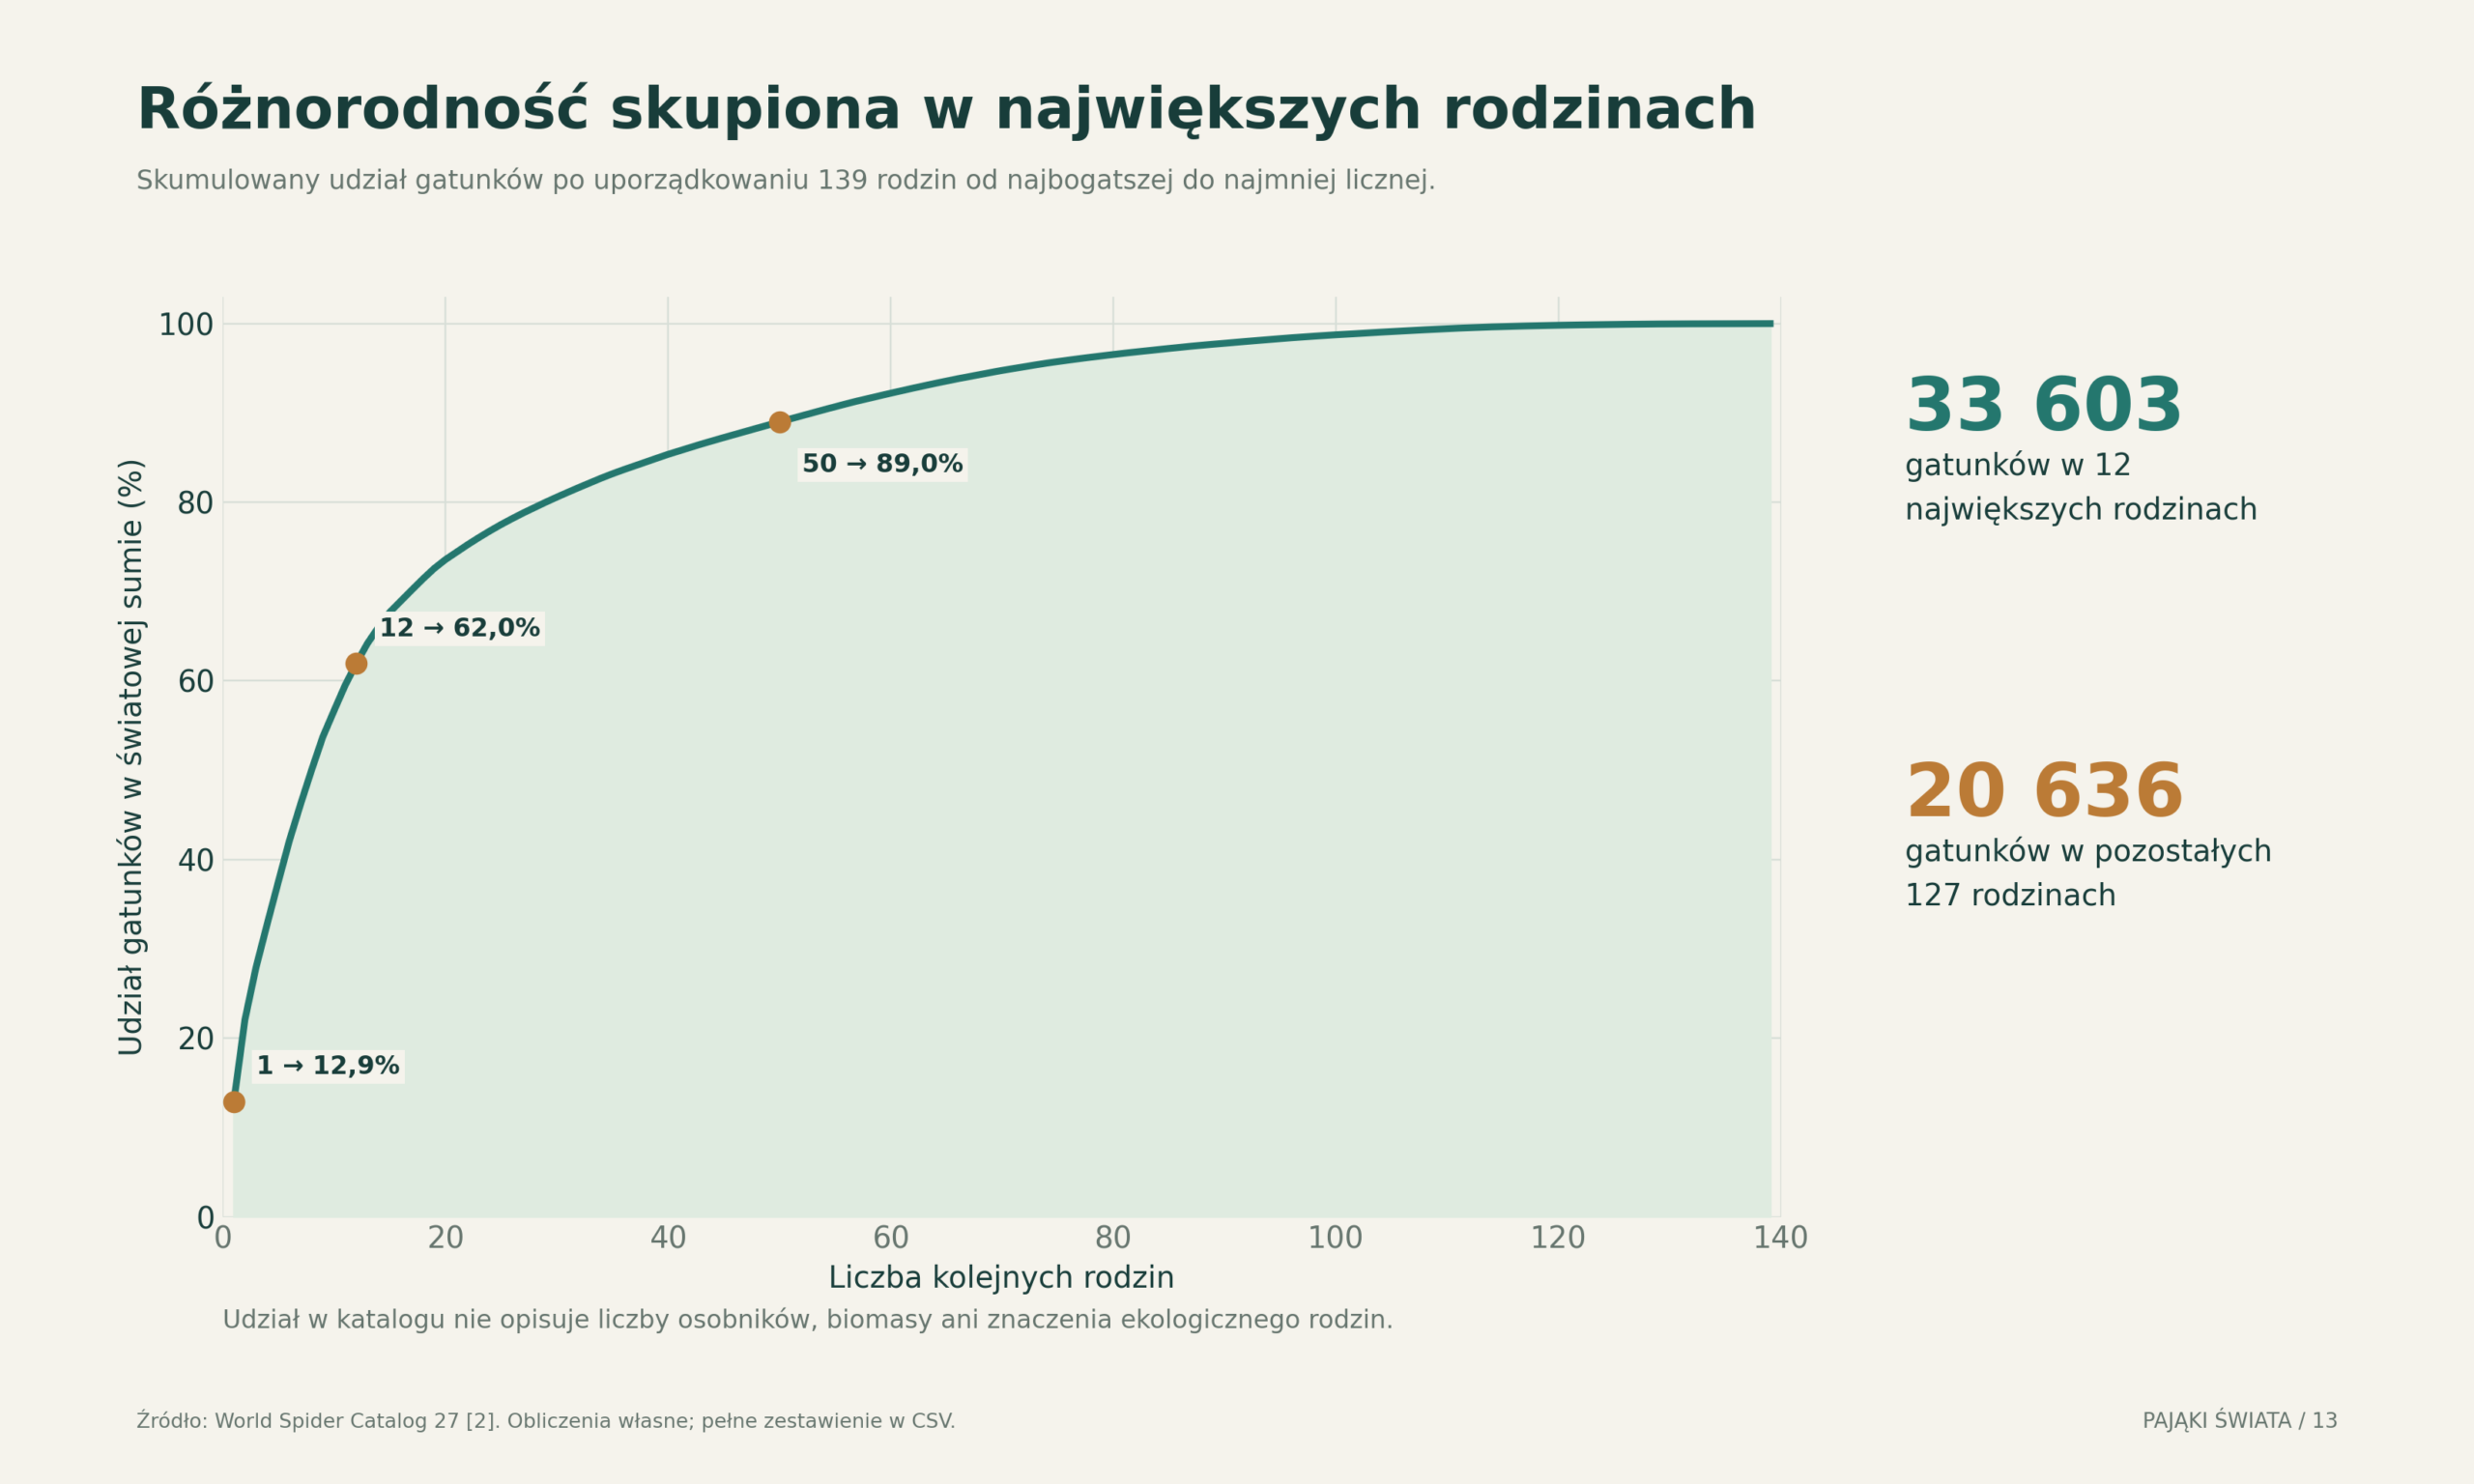
Dwanaście najbogatszych rodzin obejmuje łącznie 33 603 gatunków, czyli 62,0% światowej sumy z tego samego odczytu WSC. Pozostałe 127 rodzin zawiera resztę uznawanych gatunków. Udział obliczono po uporządkowaniu wszystkich rodzin, a nie przez dobranie kilku najbardziej znanych pająków. [2]
Krzywa skumulowana pokazuje, jak szybko kolejne rodziny zwiększają objętą zestawieniem część katalogu. Nie jest to miara wartości ochronnej: niewielka rodzina może obejmować bardzo odrębne ewolucyjnie gatunki. Również mała liczba opisów nie dowodzi małej liczebności osobników w środowisku.
5 Jak polują pająki
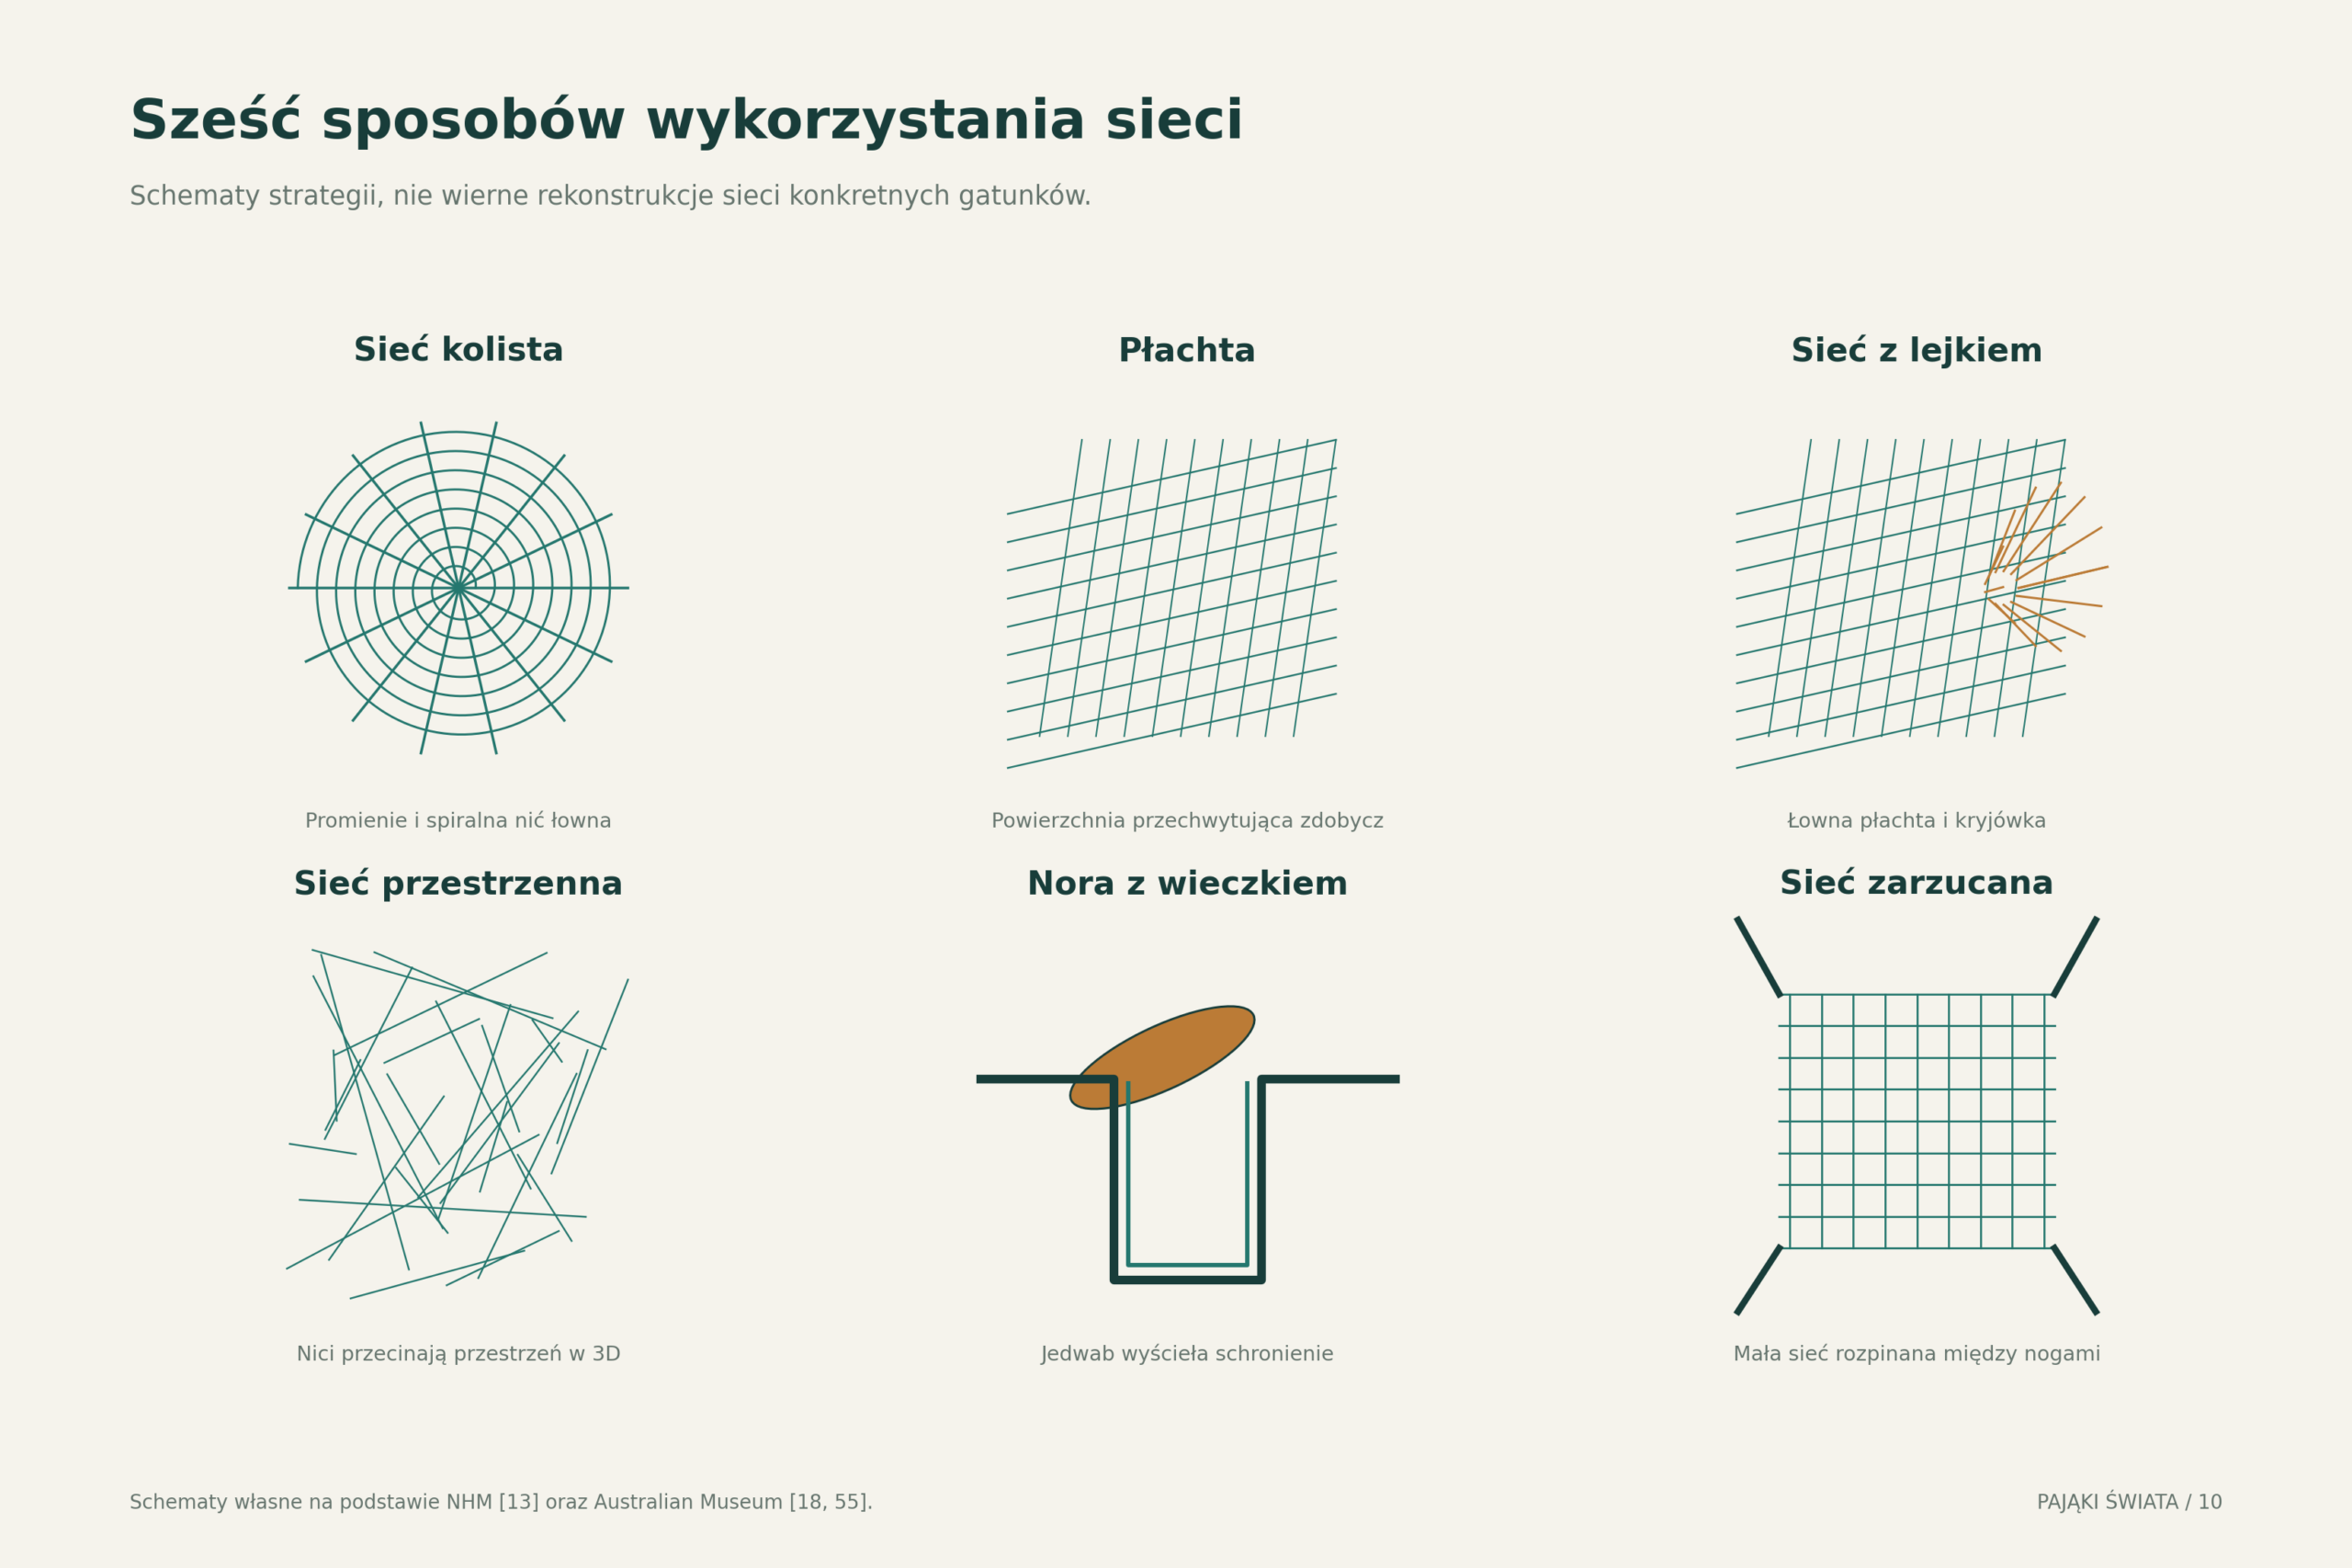
Sieć kolista jest jedną z wielu strategii. Pająki aktywnie biegające przeszukują grunt, korę lub liście; łowcy zasadzający się oszczędzają energię, czekając na bliski kontakt ze zdobyczą. Niektóre wykorzystują do ataku niewielką sieć trzymaną między odnóżami, inne wyczuwają ruch przed wejściem do nory. [55]
Pułapka sieciowa rozwiązuje kilka problemów naraz: zwiększa obszar wykrywania ofiary, spowalnia ją i przekazuje informację o jej położeniu. Jednocześnie kosztuje materiał, wymaga odpowiednich punktów mocowania i może zostać uszkodzona przez deszcz, wiatr lub duże zwierzę. Aktywny pościg pozwala ominąć te ograniczenia, lecz oznacza wydatki energetyczne i większą ekspozycję na wrogów.
Dieta jest zwykle oparta na innych stawonogach, ale relacja rozmiarów nie przesądza o wyniku spotkania. Pająk może unieruchomić relatywnie dużą ofiarę dzięki kombinacji jadu, nici i odpowiedniej techniki. Zdarza się również drapieżnictwo między pająkami. Rozpoznanie pustego pancerzyka w sieci nie jest zawsze proste: może to być resztka ofiary albo własna wylinka gospodarza.
Pająki pobierają pokarm w postaci płynnej. Rozdrabnianie i trawienie pozajelitowe umożliwiają wykorzystanie tkanek zdobyczy, a twardsze resztki pozostają. Nie oznacza to, że każdy gatunek żeruje dokładnie w taki sam sposób i z tą samą kolejnością owijania, gryzienia oraz manipulowania zdobyczą. [47]
Warto wyróżnić wyjątek: Bagheera kiplingi, skakun związany z akacjami rodzaju Vachellia w neotropikach, korzysta w dużym stopniu z pokarmu roślinnego. Badania zachowania i izotopów wykazały pobieranie ciałek pokarmowych roślin. To istotne odejście od typowego drapieżnictwa, lecz nie podstawa do nazywania wszystkich skakunów roślinożernymi. [17]
6 Jedwab pająków jako materiał i narzędzie
Nie istnieje jeden uniwersalny jedwab
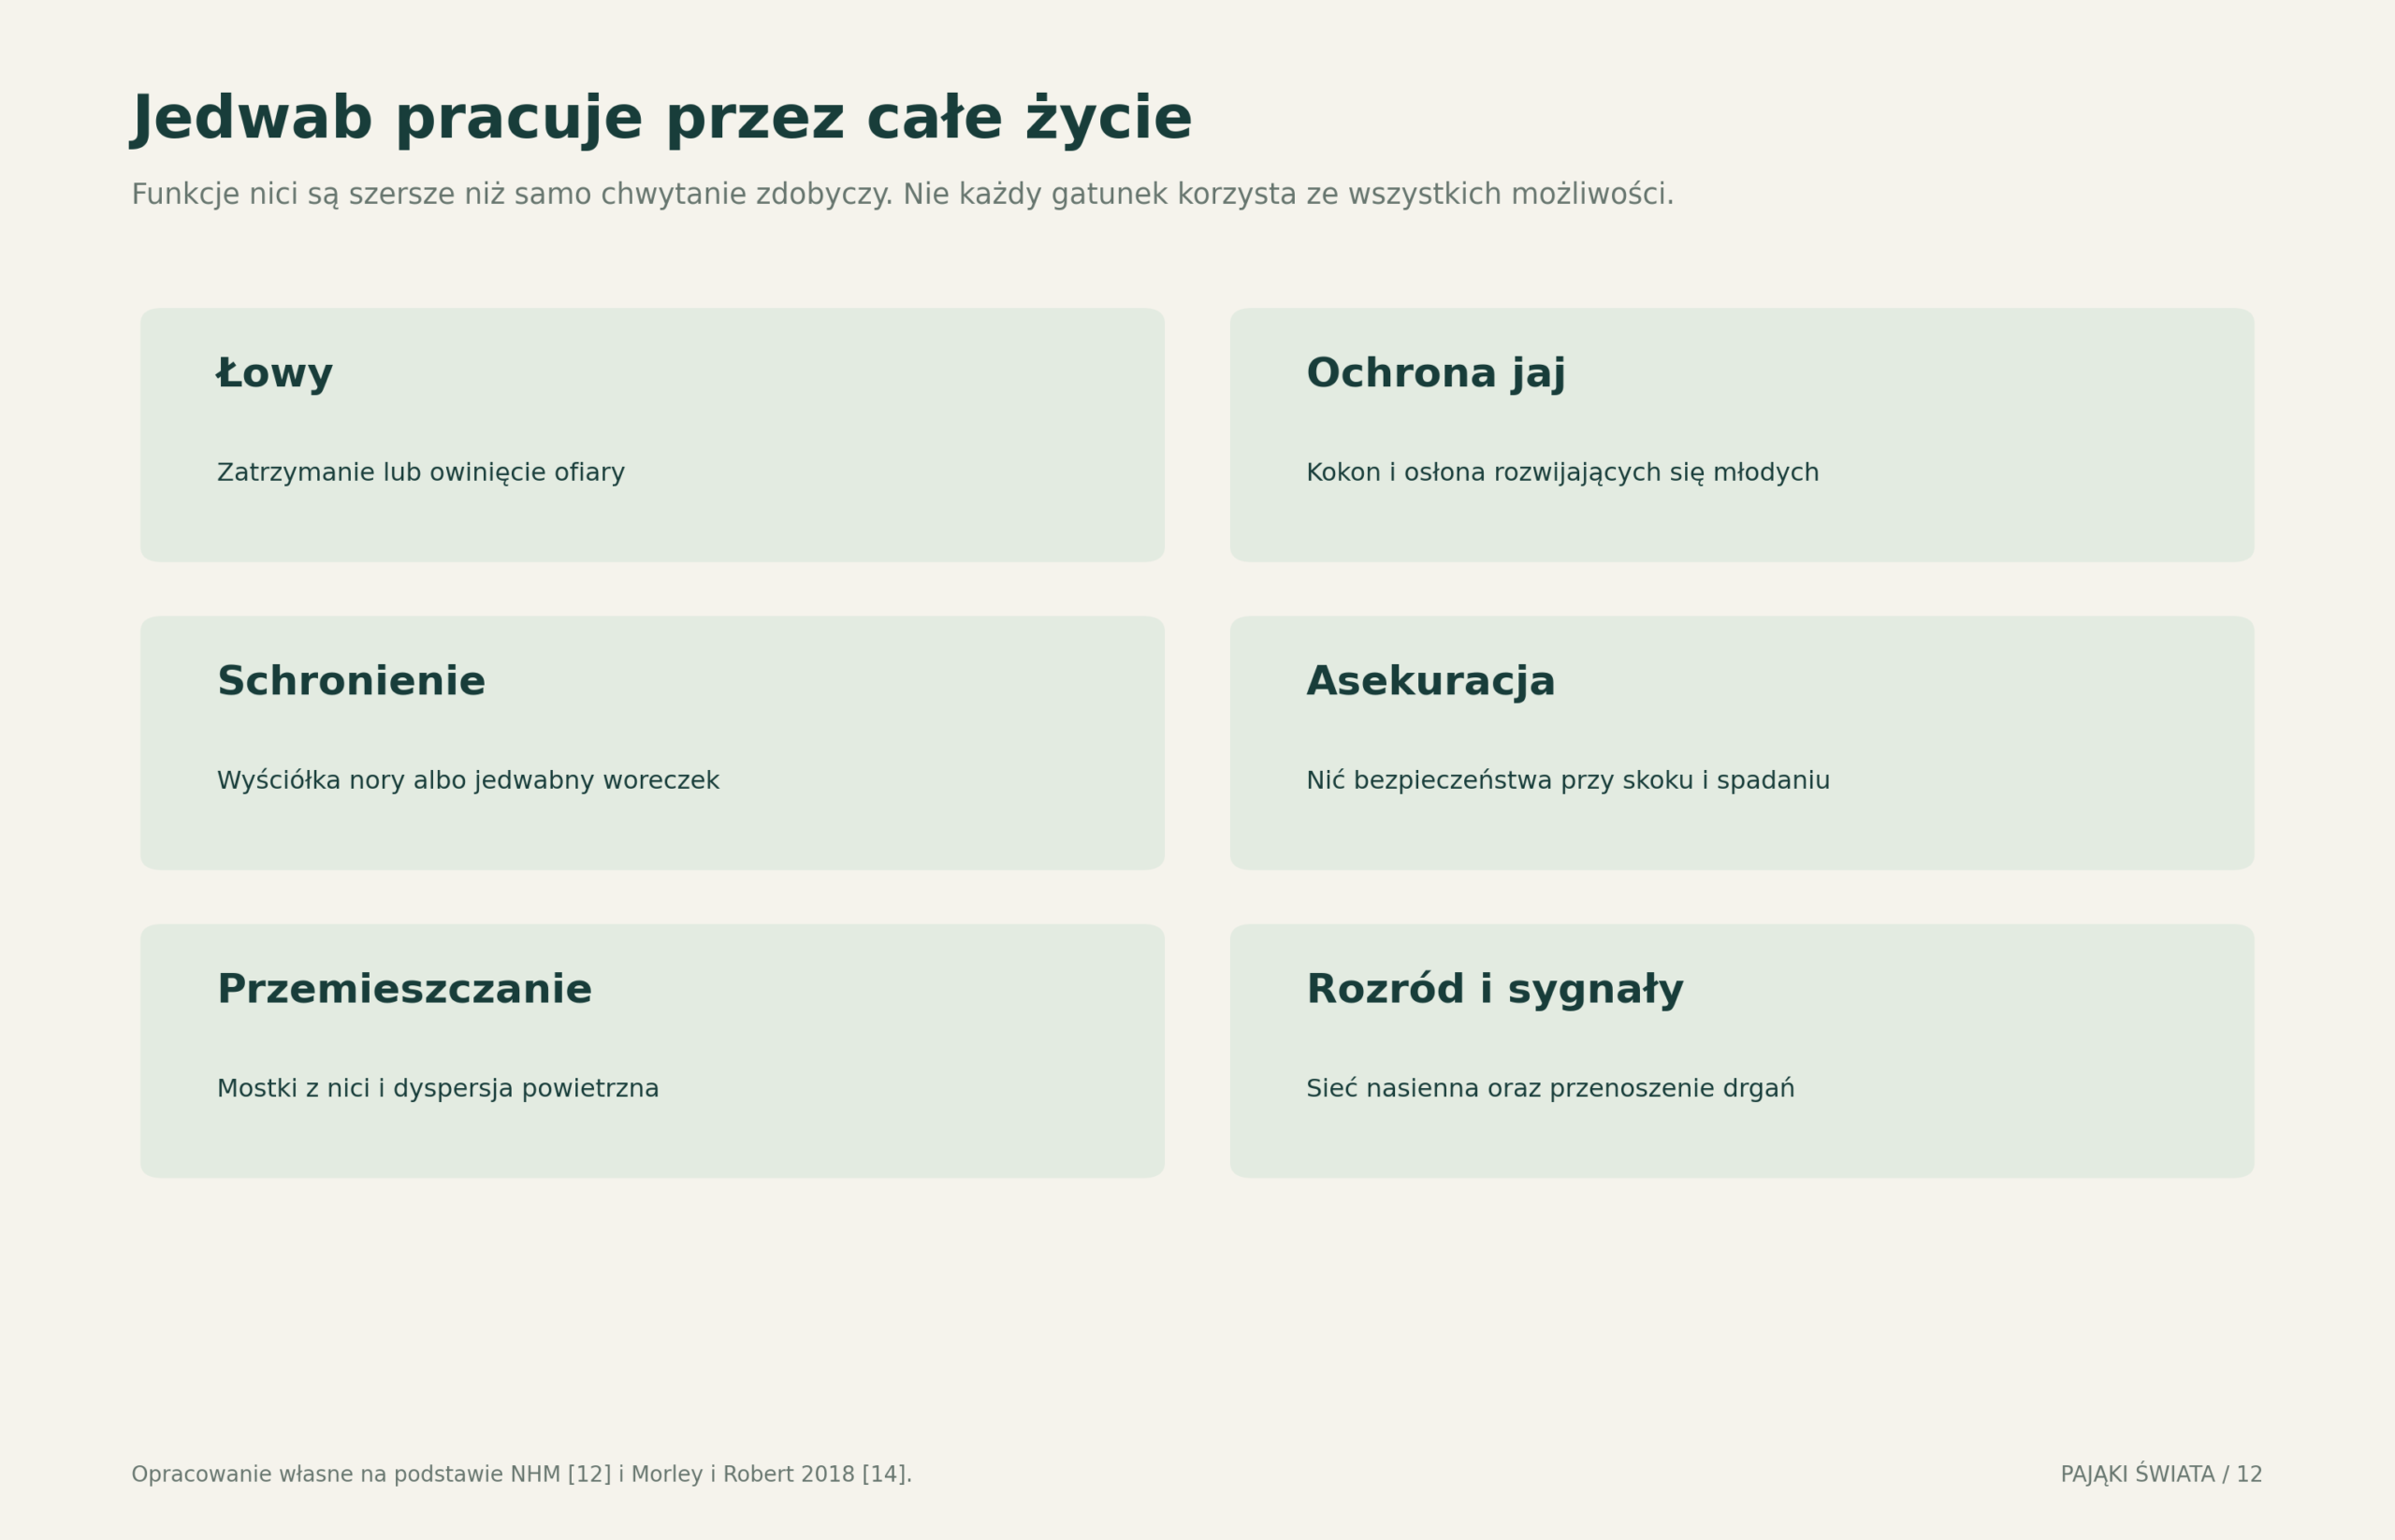
Jedwab jest materiałem białkowym wytwarzanym w gruczołach przędnych. Różne nici mogą pełnić funkcje konstrukcyjne, łowne, ochronne i transportowe. Pojęcie „pajęczyna” zwykle oznacza gotową konstrukcję, a „jedwab” materiał, z którego została wykonana. Rozróżnienie jest ważne: także gatunki niebudujące sieci łownych korzystają z jedwabiu. [12]
Nić asekuracyjna zabezpiecza ruch, kokon osłania jaja, a jedwabny woreczek może zapewniać kryjówkę. Materiał wyściełający norę pełni inną funkcję niż rozciągliwa nić zatrzymująca lecącego owada. Część nici chwyta za pomocą kleistych substancji, inne wykorzystują bardzo drobne włókna i ich fizyczne oddziaływanie z powierzchnią ofiary.
Wytrzymałość nie jest tym samym co odporność na zerwanie
W opisach jedwabiu często miesza się kilka parametrów. Wytrzymałość na rozciąganie określa naprężenie, które materiał znosi przed zniszczeniem. Rozciągliwość mówi, jak bardzo może się wydłużyć. Energia pochłaniana do zerwania zależy od połączenia tych właściwości. Hasło „mocniejszy od stali” bez wskazania parametru, przekroju, masy i warunków pomiaru jest zbyt mało precyzyjne, by miało wartość techniczną.
Badanie Caerostris darwini z Madagaskaru wykazało wyjątkowo dużą energię pochłanianą przez badane włókna: średnio około 350 MJ/m³, a w części prób do 520 MJ/m³. Wynik dotyczy określonych nici i warunków eksperymentu. Nie oznacza, że dowolna pajęczyna w domu ma takie parametry albo że można bezpośrednio zastąpić nią gotowy materiał konstrukcyjny. [15]
Nić jako sposób przemieszczania
Podczas ballooningu pająk wypuszcza nici i może zostać uniesiony. Zjawisko jest związane z przepływem powietrza; eksperymenty Morley i Roberta wykazały również, że pole elektryczne może wywoływać zachowanie prowadzące do startu i umożliwiać unoszenie. Nie należy redukować całego zjawiska wyłącznie do jednego z tych mechanizmów. [14]
Dyspersja pomaga zasiedlać nowe miejsca, lecz oznacza także ryzyko trafienia w nieodpowiednie środowisko. To wyjaśnia, dlaczego zdolność przemieszczania nie jest równoznaczna z gwarancją trwałego osiedlenia. Rozród, przetrwanie zimy i dostępność mikrohabitatów są kolejnymi filtrami.
7 Rozmnażanie i cykl życia
Rozród rozpoczyna się często od rozbudowanej komunikacji. Samiec może przekazywać drgania przez sieć, poruszać nogami, prezentować kontrastowe barwy lub wykonywać sekwencje ruchów. Sygnały pomagają rozpoznać partnera, ale nie eliminują całkowicie ryzyka drapieżnictwa. Kanibalizm seksualny występuje u części gatunków; nie jest obowiązkowym finałem każdego spotkania samca z samicą.
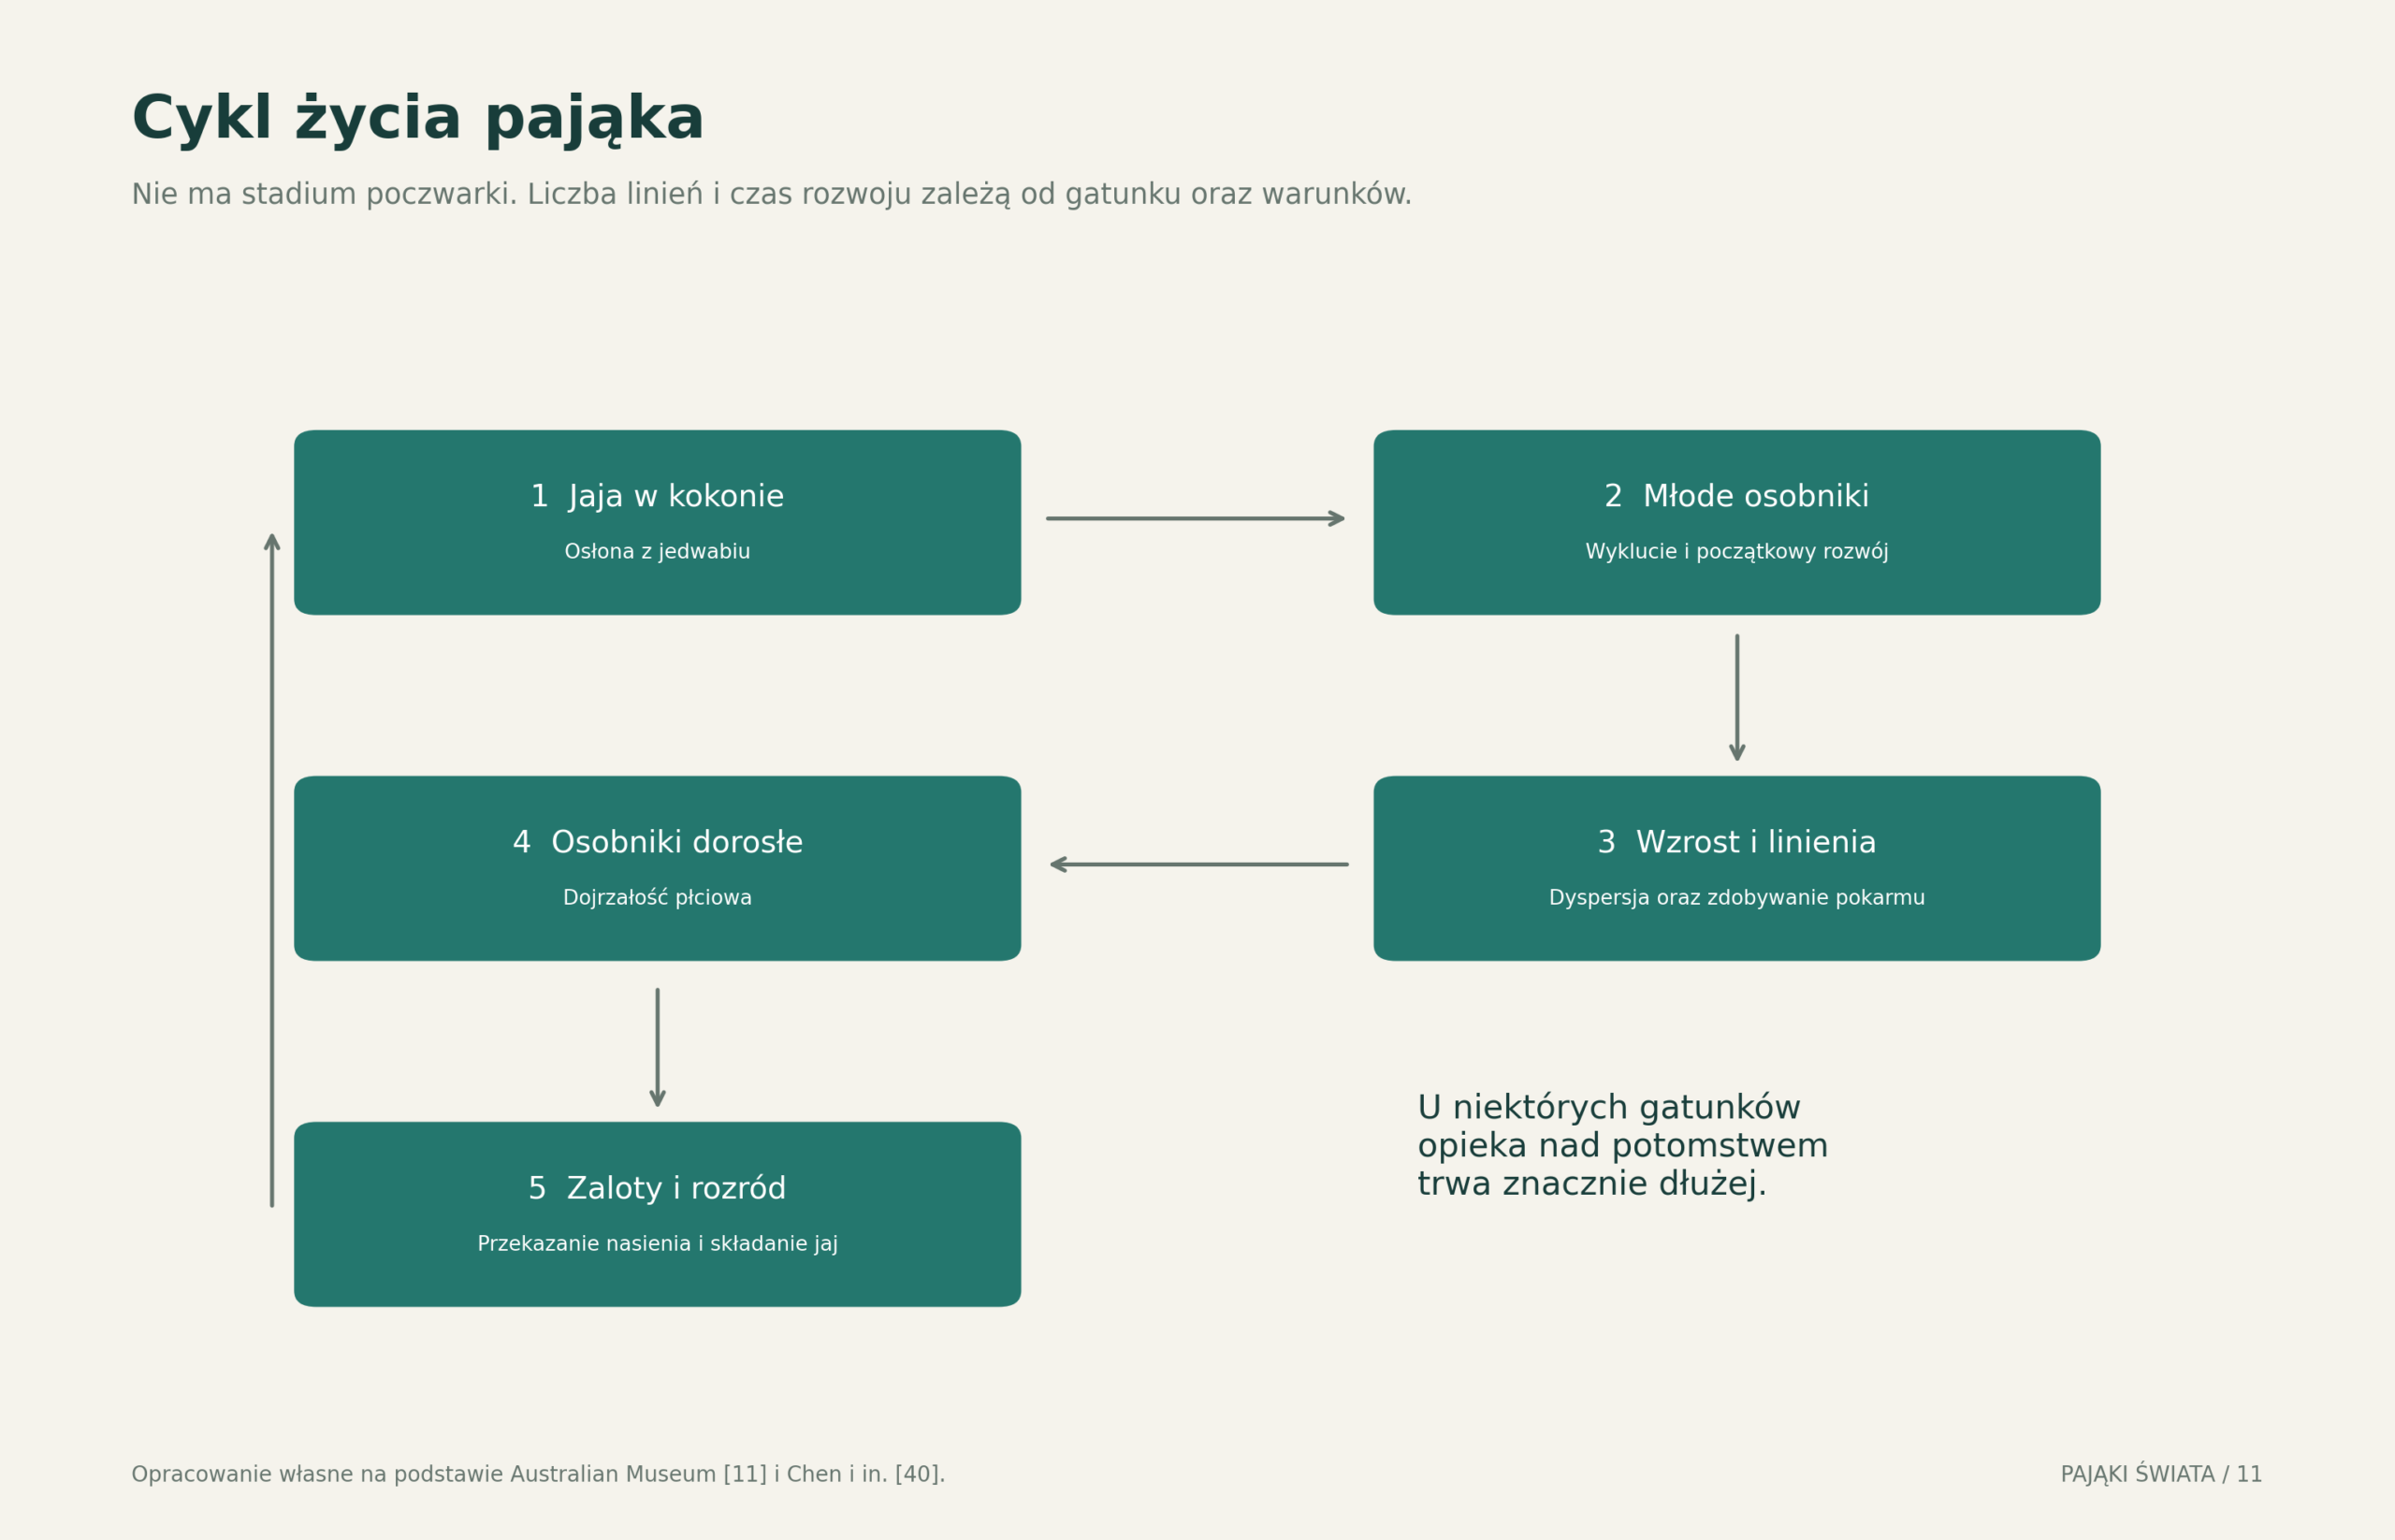
Samiec przekazuje nasienie przy użyciu przekształconych nogogłaszczków. Samica składa jaja, zwykle osłonięte jedwabiem. Kokony mogą być ukryte, zawieszone w sieci, noszone albo pilnowane. Ich osłona ogranicza część zagrożeń środowiskowych, lecz nie jest nieprzenikalnym sejfem: istnieją wyspecjalizowane organizmy atakujące jaja i młode. [11]
Pająki nie przechodzą stadium poczwarki. Młode rosną przez kolejne linienia, stopniowo osiągając dojrzałość. Tempo rozwoju zależy od temperatury, pokarmu, wilgotności i biologii gatunku. Dlatego uniwersalny kalendarz „ile dni od jaja do dorosłego pająka” byłby mylący. Również długość życia silnie różni się między gatunkami i płciami.
Linienie jest okresem wrażliwości. Zwierzę opuszcza stary oskórek, a nowy przez pewien czas pozostaje miękki. Niepokojenie go wtedy może mieć poważniejsze skutki niż w zwykłych warunkach. Wylinka zachowuje wiele elementów kształtu pająka, przez co bywa mylona z martwym osobnikiem.
U Toxeus magnus opisano karmienie młodych wydzieliną przypominającą funkcjonalnie mleko oraz przedłużoną opiekę matczyną. To efektowne porównanie nie oznacza obecności gruczołów mlekowych ani pokrewieństwa ze ssakami. Pokazuje natomiast, że podobne problemy biologiczne mogą prowadzić w odległych liniach ewolucyjnych do częściowo zbliżonych rozwiązań. [40]
8 Samotnicy i życie społeczne
Większość znanych pająków prowadzi samotniczy tryb życia poza okresami rozrodu i opieki nad młodymi. Istnieją jednak gatunki, w których wspólne przebywanie trwa dłużej, a także formy trwale społeczne. Nie każda grupa pająków na jednej roślinie jest kolonią społeczną. Skupisko może wynikać z dobrego miejsca do budowy sieci, wyklucia rodzeństwa albo sezonowej dyspersji.
W biologii społecznej rozróżnia się między innymi krótkotrwałe przebywanie młodych z matką, przedłużoną opiekę oraz trwałe kolonie z wieloma dorosłymi samicami. U niektórych pająków społecznych występują współpraca przy utrzymaniu sieci, wspólne polowanie i opieka nad potomstwem. Badania genomowe wskazują, że przejścia do życia społecznego zachodziły niezależnie w różnych liniach. [41]
Współpraca nie usuwa kosztów życia w grupie. Pojawiają się konkurencja o pokarm, nierówny udział w rozrodzie i ograniczenia wynikające z kojarzenia osobników spokrewnionych. Kolonia może skutecznie wykorzystywać większe ofiary, ale pozostaje zależna od warunków środowiska i trwałości wspólnej konstrukcji.
Dla obserwatora szczególnie istotne jest rozróżnienie poziomu opisu: „gatunek społeczny” dotyczy organizacji życia określonej populacji lub gatunku, podczas gdy „wiele pająków obok siebie” jest jedynie opisem chwilowego układu przestrzennego. Dopiero dłuższa obserwacja pokazuje, czy osobniki współpracują, tolerują się czy po prostu korzystają z tej samej lokalizacji.
9 Ewolucja i granice wiedzy
Historia pająków sięga paleozoiku, a ich linia jest znacznie starsza od człowieka. Rekonstrukcja tej historii wymaga połączenia skamieniałości, porównania budowy i danych molekularnych. Nie każdy dawny pajęczak wytwarzający jedwab musi być jednak zaliczany do współczesnego rzędu Araneae. Sposób definiowania grupy wpływa na to, jaką skamieniałość uznaje się za jej najstarszego przedstawiciela. [21, 39]
Dobrym przykładem jest Chimerarachne yingi z kredowego bursztynu z Mjanmy, sprzed około 100 milionów lat. Łączył kądziołki i zmodyfikowane męskie nogogłaszczki z długim, biczykowatym wyrostkiem końcowym. Jego pozycja względem pająków i ich wymarłych krewnych zależała w badaniu od parametrów analizy. Wartość odkrycia polega więc również na pokazaniu niepewności drzewa pokrewieństwa. [39]
Współczesne Mesothelae bywają nazywane „żywymi skamieniałościami”. Określenie to może być skrótem opisującym zachowanie części dawnych cech, lecz nie oznacza zatrzymania ewolucji. Dzisiejsze gatunki mają własną historię zmian, przystosowań i różnicowania.
Zapis kopalny jest nierównomierny. Organizmy małe i delikatne zachowują się tylko w szczególnych warunkach, a bursztyn reprezentuje określone środowiska. Nie można zatem traktować braku skamieniałości z danego regionu jako pewnego dowodu nieobecności pająków. Podobny problem, choć w innej skali czasu, dotyczy współczesnych białych plam w rozmieszczeniu obserwacji.
10 Geografia pająków w skali świata
Pająki występują na wszystkich kontynentach poza Antarktydą w sensie trwałej rodzimej fauny lądowej omawianej w globalnych zestawieniach. Nie należy rozszerzać tego stwierdzenia na całą strefę polarną: pająki żyją w Arktyce, w tym na północy Europy i Ameryki. Podobnie środowisko wodne nie jest całkowicie wyłączone z ich świata, choć nie istnieje odpowiednik powszechnej fauny pająków otwartego oceanu. [3, 5, 16]
Tropiki i strefa umiarkowana
Zróżnicowanie siedlisk, długi sezon aktywności, warstwowa struktura roślinności i historia ewolucyjna sprzyjają dużej różnorodności tropików. Nie oznacza to, że każdy tropikalny hektar ma więcej gatunków niż każdy hektar Europy. O wyniku decydują skala porównania, typ siedliska, metoda próbkowania i wysiłek badawczy.
W strefie umiarkowanej silniejszą rolę odgrywa sezonowość. Pająki mogą zimować w różnych stadiach, a kalendarz pojawiania się dorosłych osobników zależy od gatunku. Porównanie dwóch stanowisk tylko w jednym miesiącu może zatem faworyzować grupy, które akurat osiągnęły dojrzałość i są łatwiejsze do oznaczenia.
Góry i wyspy
Góry dzielą obszar na piętra klimatyczne i izolują doliny. Dla pająka o małych możliwościach dyspersji wąski pas odpowiedniej wilgotności może być ważniejszy niż granica państwa. Na wyspach istotne są odległość od lądu, historia kolonizacji i izolacja. Endemizm, czyli występowanie tylko na określonym obszarze, jest dlatego równie ważny jak sama suma gatunków.
Gatunek obecny w wielu krajach nie musi występować równomiernie na całym ich terytorium. Krajowy wykaz mówi o obecności w granicach jednostki geograficznej; nie jest mapą zajęcia wszystkich dostępnych siedlisk. Ta różnica ma znaczenie zarówno w ochronie przyrody, jak i w ocenie szansy spotkania zwierzęcia podczas podróży.
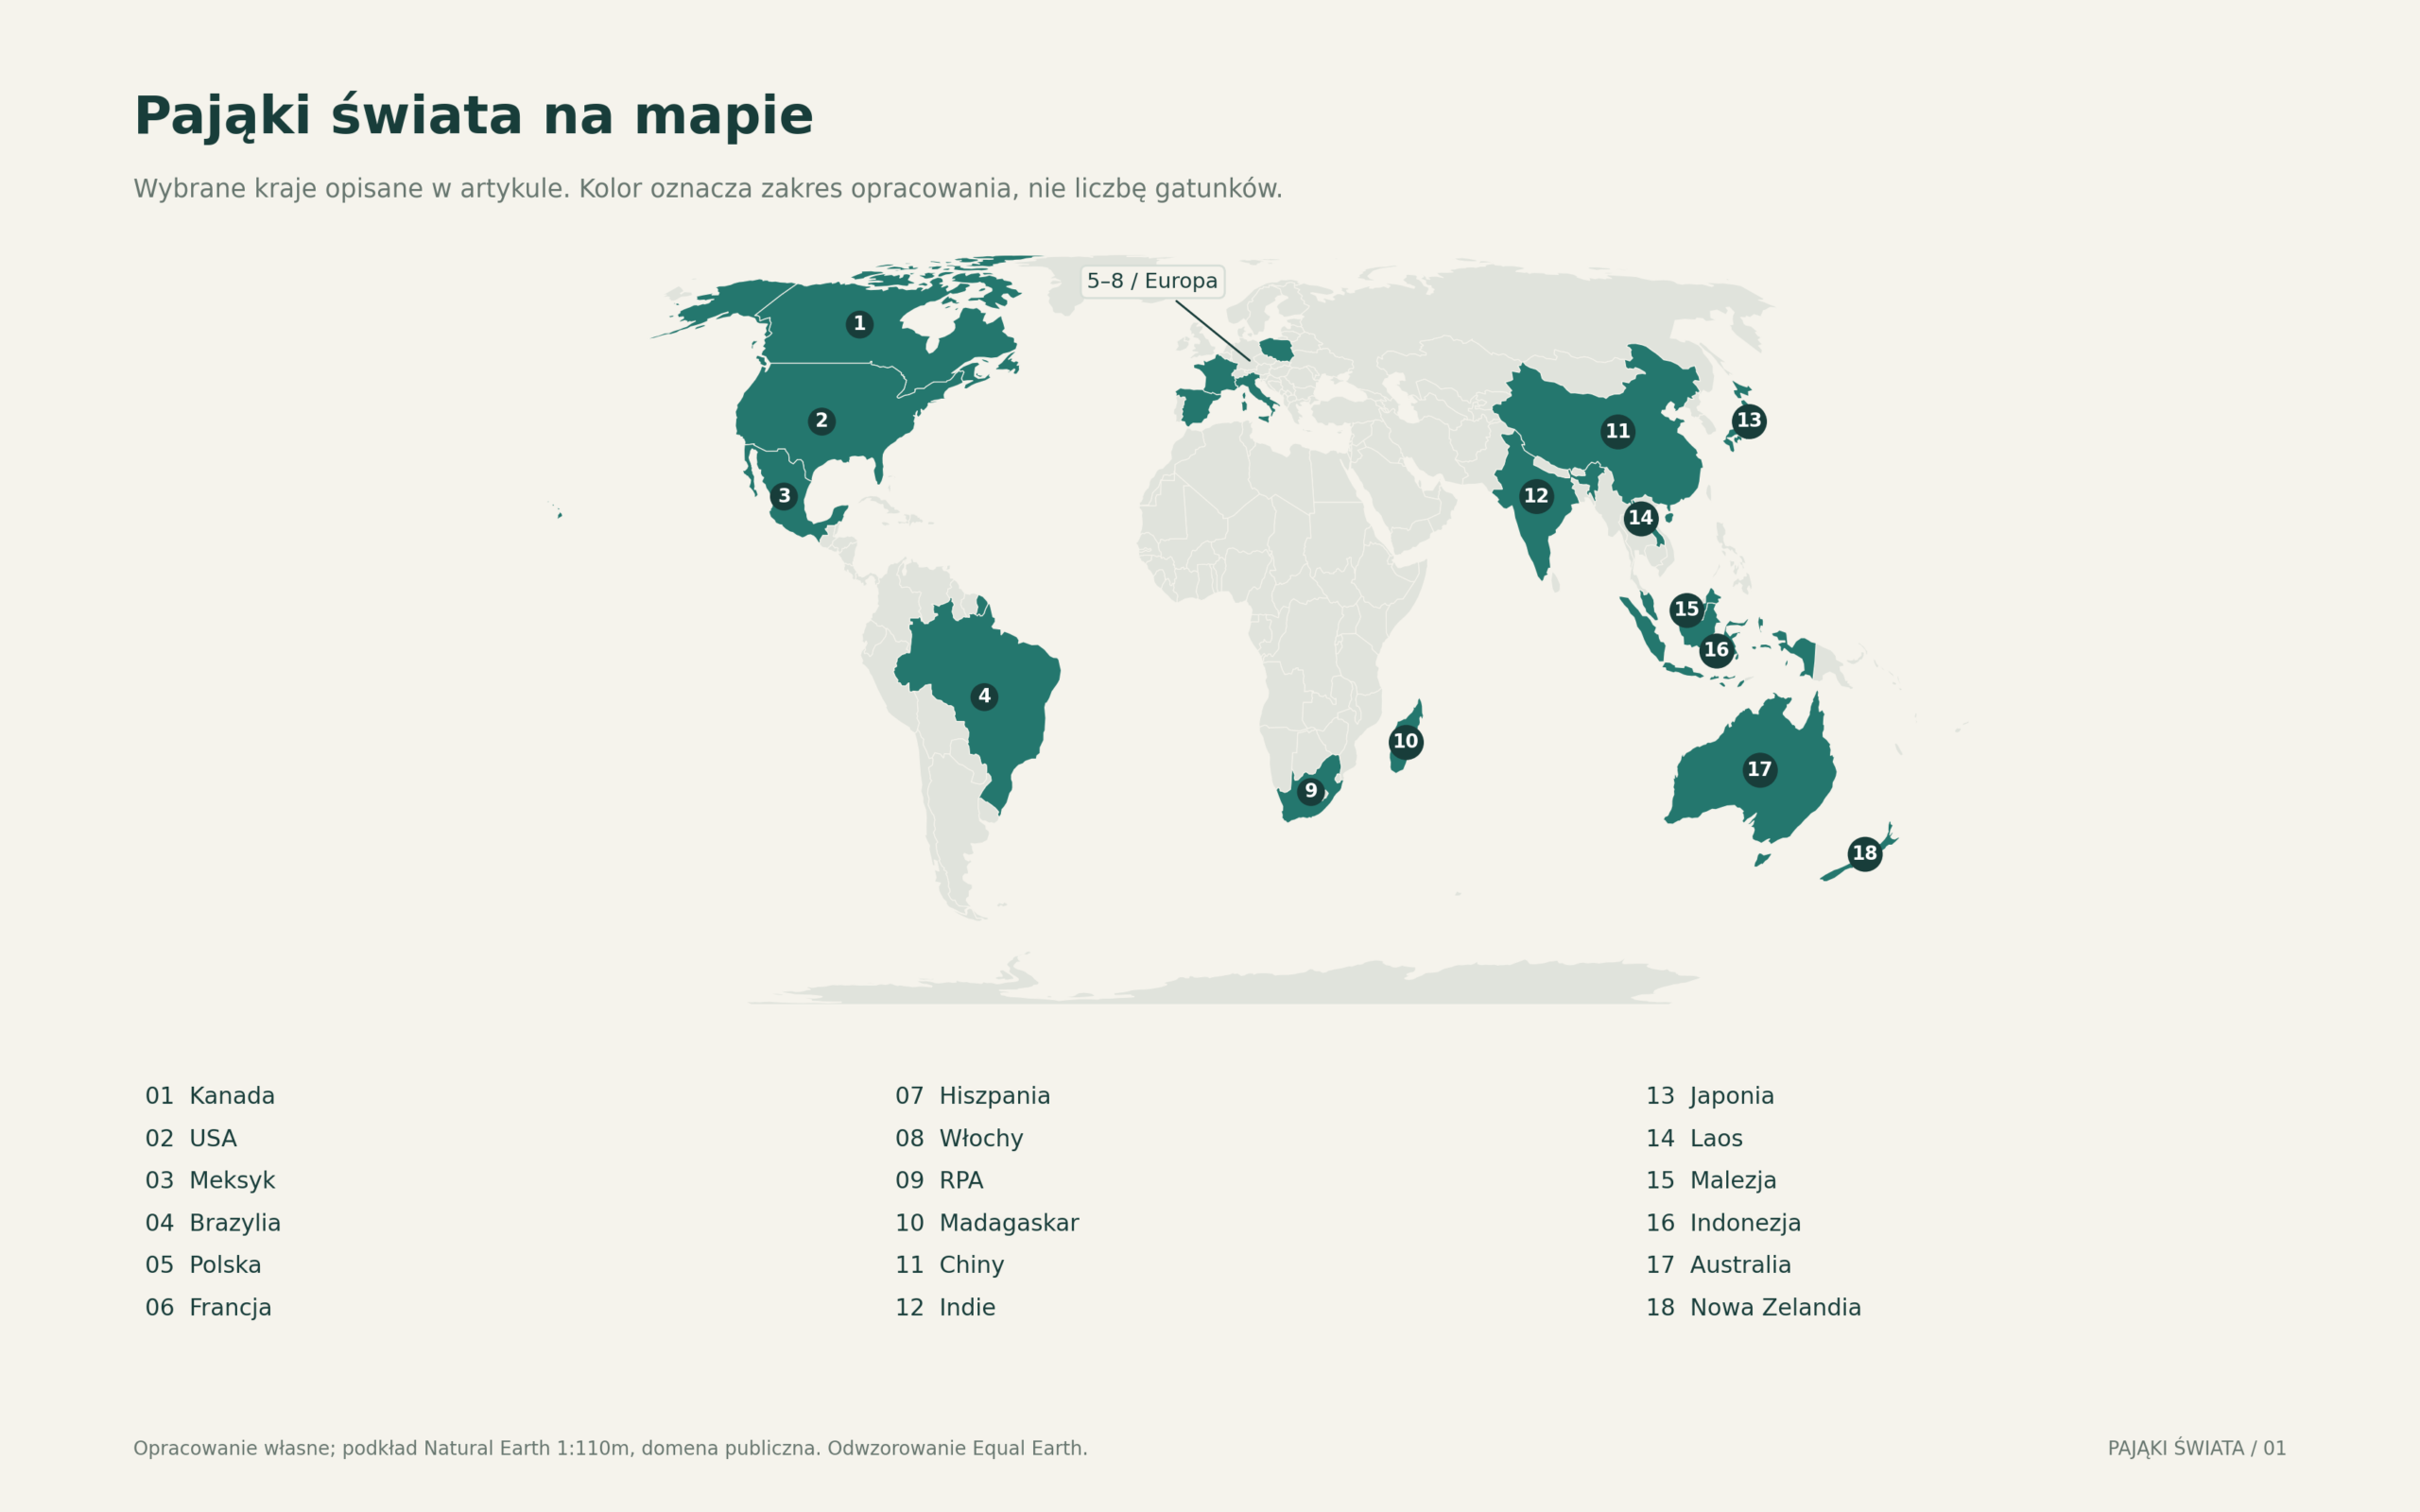
Co pokazuje mapa świata
Mapa wskazuje wybrane kraje będące punktami odniesienia dla artykułu. Nie przedstawia gęstości pająków ani zagrożenia ukąszeniem. Szczegółowe dane liczbowe porównano na osobnej mapie europejskiej, ponieważ tam możliwe było wykorzystanie wspólnej bazy regionalnej.
11 Europa i Polska w liczbach
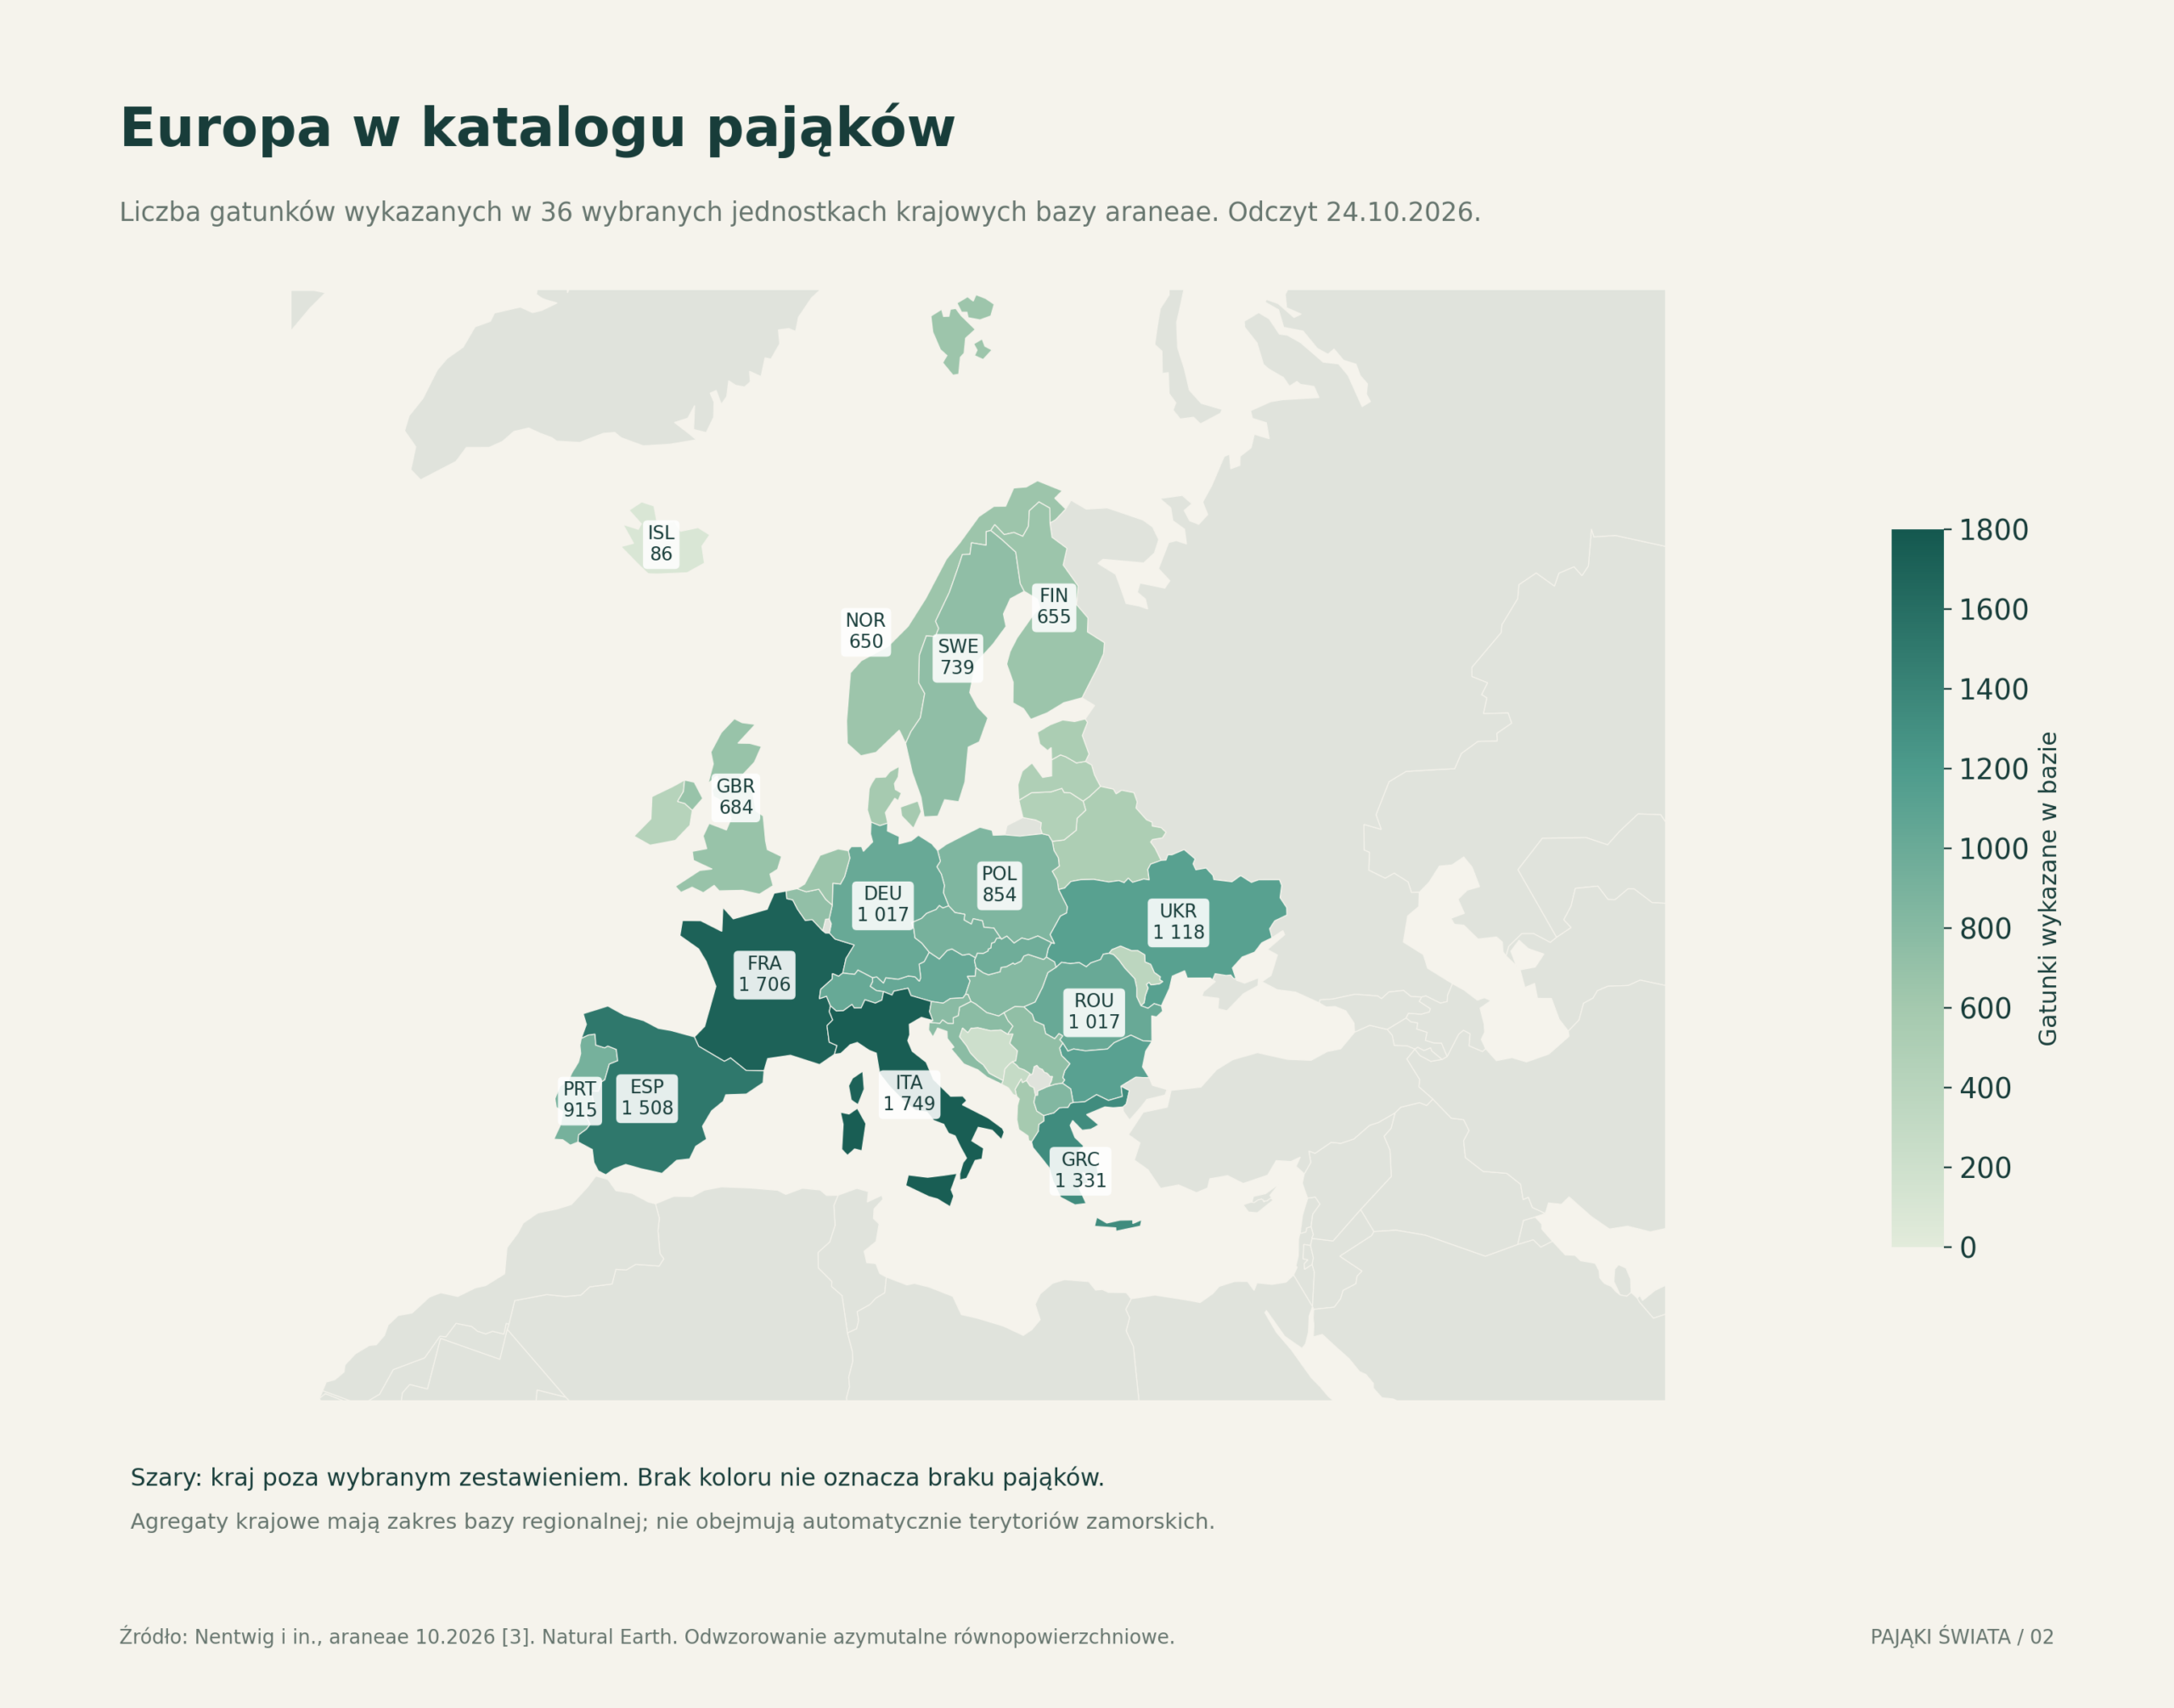
Europa ma długą tradycję badań arachnologicznych, lecz także tutaj znajomość fauny nie jest jednolita. W bazie araneae widoczny jest ogólny gradient: większe bogactwo gatunków w wielu obszarach śródziemnomorskich i mniejsze ku północy. Autorzy wskazują zarazem, że część niskich wartości może odzwierciedlać luki badawcze. [3]
Poniższe zestawienie jest wyciągiem z jednego odczytu bazy. Dla Danii, Francji, Grecji, Włoch, Norwegii, Hiszpanii i Zjednoczonego Królestwa wykorzystano źródłowe agregaty „political”, łączące regiony uwzględnione przez bazę. Nie są to kompletne wykazy wszystkich zamorskich terytoriów tych państw. Rozbieżności względem innych atlasów mogą wynikać również z aktualizacji taksonomii i daty włączenia publikacji.
| Kraj | Gatunki | Rodzaje |
|---|---|---|
| Włochy | 1749 | 452 |
| Francja | 1706 | 461 |
| Hiszpania | 1508 | 421 |
| Grecja | 1331 | 374 |
| Ukraina | 1118 | 366 |
| Bułgaria | 1116 | 360 |
| Austria | 1030 | 353 |
| Szwajcaria | 1021 | 356 |
| Niemcy | 1017 | 363 |
| Rumunia | 1017 | 337 |
| Słowacja | 968 | 344 |
| Portugalia | 915 | 317 |
| Czechy | 912 | 344 |
| Polska | 854 | 328 |
| Macedonia Północna | 834 | 289 |
| Węgry | 815 | 320 |
| Słowenia | 780 | 305 |
| Chorwacja | 772 | 289 |
| Szwecja | 739 | 289 |
| Serbia | 732 | 288 |
| Belgia | 725 | 301 |
| Zjednoczone Królestwo | 684 | 290 |
| Finlandia | 655 | 269 |
| Niderlandy | 655 | 275 |
| Norwegia | 650 | 274 |
| Albania | 582 | 245 |
| Dania | 578 | 257 |
| Estonia | 535 | 231 |
| Białoruś | 514 | 226 |
| Łotwa | 499 | 208 |
| Litwa | 466 | 204 |
| Irlandia | 430 | 212 |
| Mołdawia | 372 | 176 |
| Czarnogóra | 287 | 168 |
| Bośnia i Hercegowina | 205 | 125 |
| Islandia | 86 | 62 |
Źródło: araneae 10.2026, bezpośredni odczyt 24.10.2026. [3]
Wierszy nie sumuje się, aby obliczyć liczbę gatunków Europy: ten sam gatunek może występować w wielu państwach.
Polska
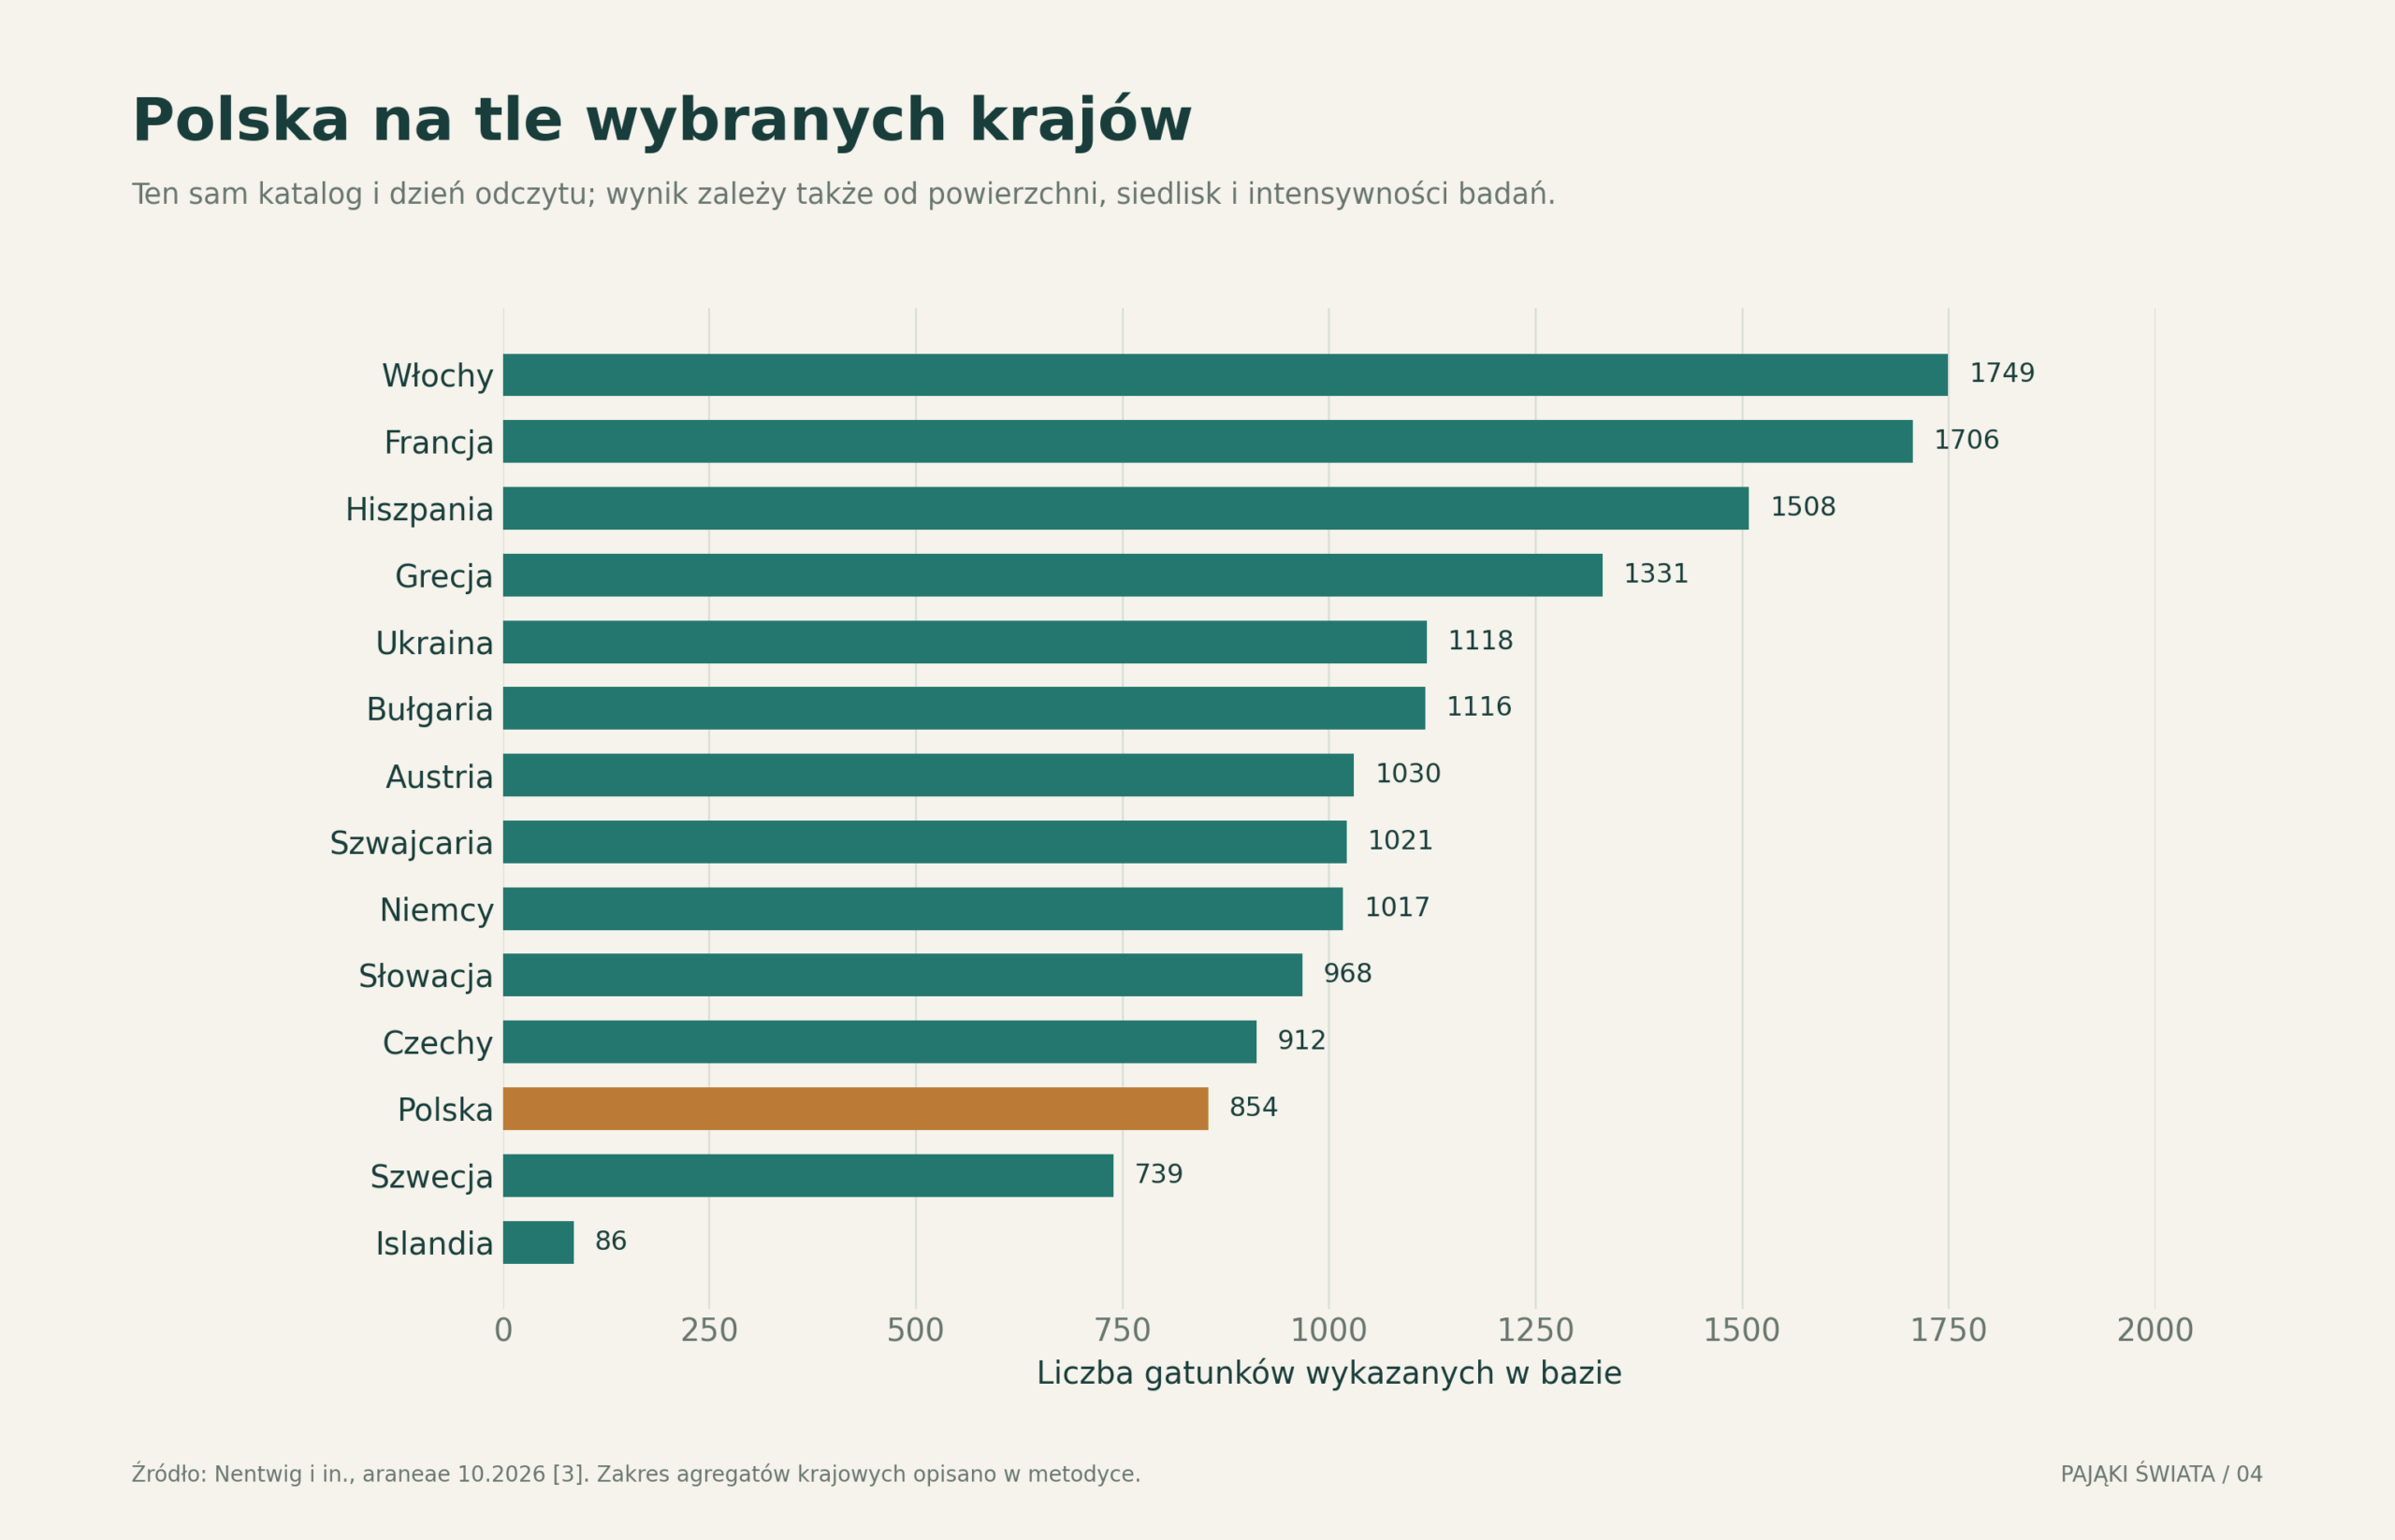
W przyjętym odczycie Polska ma 854 wykazane gatunki. Liczba ta odnosi się do zestawienia araneae, a nie do niezmiennej zamkniętej listy. Polska obejmuje lasy, obszary rolnicze, murawy, góry, torfowiska, wydmy i zabudowę. Z punktu widzenia pająków tworzy to mozaikę mikrosiedlisk różniących się temperaturą przy gruncie, wilgotnością, strukturą roślinności i dostępnością kryjówek. [3]
W ogrodach łatwo obserwować sieci krzyżaków, w zabudowie kątniaki i nasoszniki, a na słonecznych powierzchniach skakuny. Tygrzyk paskowany, Argiope bruennichi, zwraca uwagę kontrastowym odwłokiem samicy i siecią rozpiętą w roślinności. Rozmiary samic i samców wyraźnie się różnią, dlatego porównywanie fotografii bez uwzględnienia płci bywa mylące. [42]
Dla oceny stanu polskiej fauny ważniejsze od pojedynczego rekordu jest zachowanie pełnego zestawu siedlisk: od wilgotnych obniżeń po suche, nagrzewające się fragmenty krajobrazu. Pospolity pająk domowy nie informuje bezpośrednio o kondycji gatunków zależnych od torfowiska albo starej ściółki leśnej.
Niemcy
Niemcy są dobrym punktem porównania dla Polski ze względu na położenie w Europie Środkowej i dobrze rozwiniętą dokumentację. Wyższa liczba wykazanych gatunków może odzwierciedlać jednocześnie różnorodność siedlisk, historię klimatyczną i intensywność badań. Sam wynik katalogowy nie pozwala rozdzielić tych wpływów. W analizach transgranicznych szczególnie wartościowe są dane z podobnych siedlisk po obu stronach granicy.
Czechy
Czechy pokazują, dlaczego stosunkowo niewielkie państwo może mieć bogaty wykaz. Duże znaczenie ma kontrast między ciepłymi terenami nizinnymi, skałami, lasami i obszarami górskimi. Rzetelne porównanie z Polską powinno uwzględniać typy środowisk i historię badań. Dane zebrane w jednym rezerwacie nie są reprezentatywne dla całego kraju.
Słowacja
W przypadku Słowacji szczególnie interesująca jest bliskość obszarów górskich i cieplejszych terenów południowych. Zmiana warunków na niewielkiej odległości może przekładać się na wyraźnie odmienny skład zespołów pająków. Badania wysokościowe warto prowadzić przez cały sezon, ponieważ fenologia gatunków może zmieniać się wraz z piętrem klimatycznym.
Francja
Francję należy rozpatrywać jako zespół bardzo różnych krajobrazów: od wybrzeży atlantyckich i obszarów śródziemnomorskich po góry. W zestawieniu wykorzystano agregat uwzględniający Korsykę. To nie jest łączna liczba gatunków wszystkich francuskich terytoriów na świecie. Rozróżnienie ma zasadnicze znaczenie, ponieważ włączenie Gujany Francuskiej zmieniałoby zarówno zakres geograficzny, jak i charakter porównania.
Włochy
Włochy mają najwyższą wartość w pokazanym zestawie porównawczym, obejmującym także Sycylię i Sardynię w agregacie bazy. Długi półwysep, wyspy i systemy górskie tworzą zróżnicowane warunki. Nie wynika z tego jednak, że przypadkowy włoski ogród zawiera najwięcej pająków w Europie. Dane odnoszą się do bogactwa całego wykazu, nie do liczebności lokalnej.
Hiszpania
W profilu Hiszpanii warto rozróżnić część kontynentalną i archipelagi. Wykorzystany agregat araneae obejmuje regiony dostępne w tej bazie, w tym Baleary; nie należy dopisywać do niego niezweryfikowanego zakresu Wysp Kanaryjskich. Suche środowiska, góry i lasy mają odmienne fauny, a szeroki zakres klimatyczny utrudnia sprowadzenie kraju do jednego typu siedliska.
Portugalia
Portugalia ilustruje potrzebę ostrożnego traktowania mniejszych wykazów. Niższa wartość nie dowodzi proporcjonalnie mniejszej rzeczywistej różnorodności; może być częściowo związana ze stanem dokumentacji. W tym opracowaniu użyto pozycji „Portugal” ze źródła. Nie dodano osobno skrajnie niepełnych wpisów dla Azorów i Madery, które nie tworzą wiarygodnego sumarycznego atlasu archipelagów.
Grecja
Grecja łączy środowiska kontynentalne, góry i liczne wyspy. Izolacja może sprzyjać lokalnej odrębności fauny, ale utrudnia kompletne rozpoznanie. Agregat bazy obejmuje między innymi Kretę. Nawet wysoka suma krajowa nie pokazuje, jaka część gatunków występuje na wielu wyspach, a jaka jest ograniczona do małego obszaru.
Zjednoczone Królestwo
Wykaz regionalny należy odróżniać od specjalistycznych list brytyjskich, które mogą osobno ujmować gatunki zadomowione, zawleczone i znajdowane w importowanych towarach. Aktualizowana lista British Arachnological Society jest przykładem takiego podejścia. Pojedyncze znalezienie egzotycznego pająka w przesyłce nie jest dowodem powstania populacji rozradzającej się w terenie. [48]
Norwegia
Norwegia pokazuje, że chłodny klimat nie wyklucza pająków. Sezon aktywności i warunki zimowania stają się jednak szczególnie ważne. W danych użyto agregatu bazy, a nie samej pozycji dla części kontynentalnej. Dokładny zakres geograficzny ma znaczenie przy zestawieniach uwzględniających wyspy arktyczne.
Szwecja i Finlandia
Oba kraje są przydatne do rozważań o faunie borealnej i północnych granicach zasięgów. Dla monitoringu ważne są stałe metody i powtarzanie prób w podobnych fazach sezonu. Wcześniejsze pojawienie się osobników dorosłych w cieplejszym roku może zmienić liczbę oznaczonych okazów bez równie dużej zmiany rzeczywistej liczebności.
Islandia
Niewielka liczba gatunków wykazanych dla Islandii ma sens dopiero w kontekście położenia wyspy, klimatu i historii kolonizacji. Wyspiarskość jest filtrem dla napływu gatunków, a przetrwanie po dotarciu stanowi kolejny etap. Porównywanie Islandii z Włochami bez uwzględnienia tych czynników byłoby porównywaniem bardzo różnych systemów przyrodniczych.
12 Obie Ameryki
Stany Zjednoczone
USA obejmują lasy strefy umiarkowanej, pustynie, prerie, góry, subtropiki i obszary arktyczne. Taka rozpiętość środowisk oznacza, że nie istnieje jeden reprezentatywny „pająk amerykański”. Fauna wilgotnego południowego wschodu różni się od tej na pustyniach i w lasach północnego zachodu.
W komunikacji zdrowotnej szczególną rolę odgrywają wdowy oraz pustelniki, ale ich znaczenie nie opisuje całej fauny. CDC zwraca uwagę na ryzyko kontaktu w pracach terenowych i w miejscach, gdzie pająki mogą być przypadkowo przyciśnięte. Świadomość siedliska i ostrożność podczas sięgania do kryjówek są bardziej użyteczne niż ocenianie zagrożenia na podstawie koloru. [34]
Kanada
Kanada ma dobrze udokumentowaną historię rozpoznawania fauny. Przegląd opublikowany w 2019 roku podawał 1477 gatunków według stanu inwentarza z 2018 roku. Nie jest to aktualizacja do roku 2026. Autorzy pokazali, że rozwój metod molekularnych i badania wcześniej słabo poznanych regionów ujawniają dalsze luki. [26]
Wartość tego przykładu polega na rozdzieleniu wzrostu listy od wzrostu populacji. Nowe rekordy mogą wynikać z lepszego rozpoznania istniejącej fauny. Arktyczna część kraju przypomina także, że „pająki nie występują w regionach polarnych” to nadmierne i błędne uogólnienie.
Meksyk
Meksyk jest miejscem spotkania wpływów faun północnoamerykańskich i neotropikalnych. Góry, obszary suche i lasy tropikalne oferują różne warunki życia. W opowieści o pająkach tego kraju szczególnie interesujący jest Bagheera kiplingi, którego badana dieta w dużej części opierała się na strukturach pokarmowych akacji. [17]
Ten przykład pokazuje, jak badanie jednego gatunku może zmienić rozumienie całej grupy. Jednocześnie nie uzasadnia szacowania udziału pająków roślinożernych w faunie Meksyku bez dodatkowych danych. Wyjątkowe zachowanie i jego częstotliwość są odrębnymi zagadnieniami.
Brazylia
Brazylia nie jest jednolitym lasem deszczowym: obejmuje również między innymi Cerrado, Mata Atlântica i obszary okresowo suche. Rozmieszczenie pająków należy rozpatrywać w odniesieniu do tych ekosystemów, ich historii i stopnia przekształcenia. Duże gatunki, w tym ptaszniki, stanowią tylko część bogactwa, które obejmuje liczne drobne pająki ściółki i roślinności.
Prace taksonomiczne nadal przynoszą opisy nowych form. Publikacja z 2024 roku dotycząca ptaszników plemienia Hapalopini jest konkretnym przykładem trwającego porządkowania tej fauny. Nie należy utożsamiać opisania nowych gatunków z nagłym pojawieniem się ich w przyrodzie. [33]
W Brazylii dyskusja o pająkach ma także istotny wymiar zdrowotny. W opisie fauny trzeba jednak oddzielać badania taksonomiczne od rejestrów medycznych. Gatunki obecne w katalogu nie przekładają się bezpośrednio na liczbę kontaktów ludzi z pająkami.
Kolumbia
Kolumbia łączy region karaibski, Andy i obszary amazońskie. Lokalne listy są niezwykle cenne, ale ich zasięg trzeba czytać dosłownie. Zestawienie kolekcji pająków z regionu karaibskiego, udostępnione przez Universidad del Atlántico, dotyczy określonej części kraju i zasobów muzealnych. Nie jest pełnym spisem fauny Kolumbii. [49]
To ważny model interpretacji dla całej Ameryki Południowej: dane z jednego lasu, parku lub kolekcji mogą dokumentować bardzo cenne rekordy, ale nie powinny zastępować krajowego inwentarza. Rzetelność polega czasem na pozostawieniu pustej komórki zamiast wpisania pozornie dokładnej liczby.
Panama i Peru
Badania pająków nadrzewnych z rodzaju Selenops w tych dwóch krajach pokazały, że część pająków potrafi kierować opadanie ku pniom. Projekt łączył obserwacje terenowe z analizą ruchu, stawiając konkretne pytanie o funkcjonowanie w trójwymiarowej przestrzeni koron drzew. [71]
Ten przykład uzupełnia krajowy atlas o warstwę, której nie widać w prostym spisie gatunków. Las nie jest pojedynczą powierzchnią: korona, pień i ściółka tworzą różne środowiska. Badanie skupione wyłącznie na poziomie gruntu pomijałoby zachowanie, które pozwala mieszkańcom koron unikać niekontrolowanego upadku. Nie oznacza to jednak, że cecha odkryta u wybranych Selenops jest właściwa całej faunie Panamy lub Peru.
13 Afryka i Madagaskar
Republika Południowej Afryki
RPA jest ważnym ośrodkiem badań dzięki programowi SANSA, czyli South African National Survey of Arachnida. Opracowanie z 2013 roku podawało 2028 gatunków, 471 rodzajów i 71 rodzin po zakończeniu odpowiedniego etapu programu. To punkt historyczny, a nie bieżąca suma. Wartość programu obejmuje również mapowanie stanowisk, analizę endemizmu i tworzenie podstaw ochrony. [28]
Kraj pokazuje znaczenie zróżnicowania krajobrazu: obszary suche, sawanny, lasy i roślinność regionu przylądkowego nie stanowią wymiennych środowisk. Wyników z jednego parku nie należy automatycznie przenosić na cały obszar. Skoordynowane badania terenowe pomagają połączyć lokalne listy w szerszy obraz.
Madagaskar
Madagaskar jest szczególnie interesujący ze względu na izolację i endemizm. Badania Wood i Scharffa nad pająkami pelikanowymi obejmowały 26 gatunków, z których 18 opisano jako nowe. Zwierzęta te mają niezwykle wydłużone elementy aparatu łownego i polują na inne pająki. Odkrycia powiązano z potrzebą ochrony pozostałości lasów wyspy. [24]
Drugim znanym przykładem jest Caerostris darwini, budujący sieci nad wodą i wytwarzający nici o wyjątkowych właściwościach mechanicznych. Wyspa łączy więc znaczenie dla systematyki, ekologii i badań materiałowych. Równocześnie pojedyncze spektakularne gatunki nie reprezentują wszystkich potrzeb ochronnych drobnej fauny. [15]
Maroko
Maroko warto analizować na styku obszarów śródziemnomorskich, górskich i suchych. Wysokie zróżnicowanie warunków utrudnia uogólnienia o „pająkach pustynnych”. Nawet w krajobrazie suchym lokalna dostępność cienia, wilgotniejszych szczelin i sezonowo aktywnej roślinności może zmieniać skład fauny. Baza araneae obejmuje także dane z Afryki Północnej, lecz mapa europejska w tym opracowaniu nie rozszerza automatycznie na nie zakresu porównania. [3]
Egipt
W Egipcie szczególnie ważne jest rozdzielenie środowisk pustynnych, doliny Nilu i zabudowy. Informacja o znalezieniu gatunku w kraju nie dowodzi, że występuje on w każdym z tych środowisk. Z punktu widzenia praktyki terenowej warto opisywać mikrosiedlisko: brzeg nawadnianego pola, ścianę budynku, rumowisko lub naturalną pustynię. Taki zapis bywa biologicznie bardziej informacyjny niż sama nazwa państwa.
Tanzania
Góry Udzungwa były miejscem terenowego sprawdzenia protokołu COBRA-TF, służącego ustandaryzowanemu badaniu bogatych zespołów pająków. Próby terenowe prowadzono na dwóch powierzchniach leśnych na wysokości 650 i 850 m n.p.m. [76]
Wartość tego przypadku polega na rozwoju metody, którą można stosować porównawczo. Lista gatunków z jednego stanowiska jest ważna sama w sobie, lecz dopiero znajomość sposobu jej uzyskania umożliwia zestawienie z innym lasem. Profil Tanzanii przypomina więc, że kraje uczestniczą w rozwoju arachnologii nie tylko przez dostarczanie nowych nazw gatunkowych, ale również przez badania organizacji i pomiaru całych zespołów.
Afryka równikowa
W wielu regionach kontynentu rozpoznanie fauny pozostaje nierówne. Obszary słabo reprezentowane w katalogach mogą zawierać bogate zespoły pająków, zwłaszcza w trudno dostępnych warstwach lasu i ściółce. Nie należy przedstawiać mapy liczby publikacji jako mapy rzeczywistej różnorodności. Współpraca z lokalnymi instytucjami i rozwój kolekcji referencyjnych są warunkiem trwałej poprawy wiedzy.
14 Azja
Chiny
Jednym z ważnych przykładów badań zachowania jest praca nad Toxeus magnus, w której analizowano długotrwałe dostarczanie młodym odżywczej wydzieliny i rolę opieki samicy. [40] Takie doświadczenie wnosi wiedzę o mechanizmie, której nie dostarcza sama lista krajowa. Pokazuje także, że nawet w dobrze rozpoznawalnej rodzinie skakunowatych mogą pozostawać niezbadane elementy życia społecznego.
Chiny zajmują ważne miejsce we współczesnej taksonomii pająków. Analiza historii opisów opublikowana w 2025 roku wskazała na bardzo duży udział azjatyckich odkryć i rosnącą rolę chińskich badaczy. Autorzy analizowali działalność taksonomiczną, co nie jest tym samym co kompletny współczesny spis występowania gatunków we wszystkich krajach. [5]
Rozległość kraju, różnice wysokościowe i mozaika klimatów tworzą wiele możliwości specjalizacji. Szczególne znaczenie mogą mieć środowiska górskie i krasowe. Jednocześnie wzrost liczby opisów wynika również z inwestycji w badania, dostępu do materiału i pracy specjalistów; nie można przypisać całego zjawiska wyłącznie samej przyrodzie.
Indie
W krajowej liście Zoological Survey of India z 2024 roku podano 1971 gatunków w 500 rodzajach i 61 rodzinach. Dane te mają jasno określony kontekst czasowy i nie powinny być przedstawiane jako stan na koniec 2026 roku. [27]
Indie obejmują Himalaje, równiny, obszary suche i wilgotne lasy tropikalne. Krajowy wykaz nie ujawnia automatycznie, jaka część fauny jest ograniczona do niewielkich regionów. Dla ochrony równie ważne jak suma gatunków są lokalne zasięgi i ciągłość siedlisk. Nowy rekord z jednego stanu nie musi oznaczać nowości dla całego kraju.
Japonia
Japonia ma rozbudowaną tradycję badań i aktualizowane krajowe zestawienia. Dostępny katalog umożliwia rozróżnienie informacji o gatunkach i liczbie rekordów, co dobrze pokazuje różnicę między bogactwem fauny a intensywnością dokumentowania. [29]
Wyspy rozciągnięte na dużej długości geograficznej i szerokości geograficznej tworzą zróżnicowane warunki. Nawet w dobrze badanym kraju pozostają luki: praca z 2026 roku poświęcona jaskiniowym osnuwikowatym zawierała nowe gatunki i nowe informacje o rozmieszczeniu. Rozwój katalogu nie jest więc wyłącznie domeną słabo poznanych tropików. [50]
Indonezja
Indonezja wymaga szczególnej uwagi przy definiowaniu obszaru zestawienia. Publikacje mogą łączyć Indonezję i Nową Gwineę, a Nowa Gwinea nie mieści się w granicach jednego państwa. Wykazu o takim tytule nie można bez sprawdzenia przepisać jako krajowej liczby gatunków Indonezji. Zestaw zasobów Asian Society of Arachnology dobrze ilustruje zróżnicowanie dostępnych list regionalnych. [44]
Archipelag składa się z wysp o odmiennej historii geologicznej i biogeograficznej. Izolacja, kolonizacja i wymiana fauny nie pokrywają się tu z prostym podziałem administracyjnym. Dla małych pająków ściółkowych morze może być silną barierą, podczas gdy część form zdolnych do dyspersji powietrznej przekracza ją łatwiej.
Malezja
Malezję tworzą obszary na Półwyspie Malajskim i Borneo, których nie należy traktować jako jednorodnego fragmentu lasu. W kontekście ewolucji szczególnie interesujący jest rodzaj Liphistius, reprezentujący Mesothelae. Badania rewizyjne wykazują złożone zróżnicowanie i rozmieszczenie gatunków w regionie. [30]
Pająki norowe pokazują, jak mały obszar odpowiedniego podłoża może mieć duże znaczenie dla przetrwania populacji. Obecność lasu na mapie satelitarnej nie mówi jeszcze wszystkiego o strukturze gleby, wilgotności i stopniu naruszania powierzchni gruntu.
Tajlandia
Tajlandia jest kolejnym ważnym obszarem badań Liphistius. Taksonomia tych pająków wymaga dokładnych porównań, ponieważ powierzchownie podobne osobniki mogą reprezentować różne gatunki. Pojedyncze rozpoznawalne wieczko nory nie wystarcza do wiarygodnego oznaczenia jej mieszkańca. Badania muszą łączyć dokumentację terenową z analizą morfologiczną, a często także molekularną. [30]
Laos
Laos jest znany między innymi z Heteropoda maxima, dużego przedstawiciela Sparassidae. WSC wskazuje Laos jako obszar występowania gatunku. Rozpiętość nóg przyciąga uwagę, lecz nie jest tożsama z masą ciała ani znaczeniem medycznym. Porównanie z ciężkimi ptasznikami pokazuje, dlaczego pytanie o „największego pająka” wymaga określenia sposobu pomiaru. [31, 38]
Rosja
Rosja obejmuje obszary europejskie i azjatyckie, dlatego regionalny wykaz europejski nie może służyć jako pełna liczba krajowa. W bazie araneae znajdują się pozycje dla różnych części Rosji oraz agregat w zakresie tej bazy. W tym artykule celowo nie użyto go do pokolorowania całego terytorium państwa. Rozciągnięcie danych regionalnych na całą Rosję sugerowałoby kompletność, której źródło nie zapewnia. [3]
15 Australia i Oceania
Australia
Australian Museum podaje orientacyjnie około 3600 gatunków pająków. Jest to zaokrąglona liczba informacyjna, odmienna metodologicznie od dokładnego eksportu krajowej listy. Nie zestawiono jej na jednej skali rankingowej z historycznymi listami Indii, Kanady i RPA. [47]
Australijska fauna obejmuje wiele pająków norowych, spachaczy, skakunów i pająków sieciowych. Pająki pawie, w tym Maratus volans, są znanym przykładem rozbudowanych sygnałów godowych. Dla tego konkretnego gatunku WSC podaje występowanie w Queensland, Nowej Południowej Walii i Wiktorii. Nie oznacza to identycznego zasięgu wszystkich gatunków rodzaju. [32]
Australia ma również pająki o istotnym znaczeniu medycznym. Ważne jest jednak rozróżnienie grup: zalecenia pierwszej pomocy dla podejrzenia ukąszenia przez funnel-web nie są identyczne z zaleceniami dla redbacka. Wielkość pająka ani jego potoczna nazwa nie powinny zastępować lokalnych wytycznych medycznych. [36, 37]
Nowa Zelandia
Nowa Zelandia łączy rodzimą faunę o własnej historii z gatunkami, które dotarły dzięki naturalnemu rozprzestrzenianiu lub transportowi przez człowieka. Katipō, Latrodectus katipo, jest związany z nadmorskimi środowiskami i stanowi rozpoznawalny element krajowej przyrody. Te Papa wyjaśnia, że czarna forma dawniej traktowana jako osobny gatunek jest obecnie ujmowana razem z formą posiadającą czerwony pas. [25]
To dobry przykład, jak zmiana interpretacji taksonomicznej wpływa na nazwy bez koniecznej zmiany liczby zwierząt. W ochronie wybrzeża ważne są warunki mikrosiedliskowe, a w ocenie zawleczeń trzeba odróżniać pojedyncze wykrycia od utrwalonych populacji. Te Papa dokumentuje także gatunki związane z transportem i zabudową. [51]
Wyspy Pacyfiku
Na wyspach nawet mały geograficznie obszar może mieć dużą wartość ewolucyjną. Gatunek endemiczny nie jest „mniej ważny” dlatego, że występuje na niewielkiej wyspie i nie podnosi wysoko globalnej sumy. Izolacja może sprzyjać odrębności, a zarazem ograniczać możliwość naturalnej odbudowy po utracie siedliska.
W atlasie wyspiarskim niezbędne są dokładne granice zasięgu. Określenie „Oceania” może obejmować różne zestawy wysp i obszarów w zależności od publikacji. Bez sprawdzenia definicji regionu porównanie dwóch zestawień kontynentalnych może być pozorne.
16 Siedliska od ściółki po wodę
Las jako układ wielu pięter
Las nie jest jednym siedliskiem. Korony drzew, szczeliny kory, podszyt, martwe drewno i ściółka tworzą odmienne warunki. Pająk żyjący kilka centymetrów pod powierzchnią liści może doświadczać bardziej stabilnej wilgotności niż osobnik na odsłoniętej gałęzi. Z tego powodu badanie wyłącznie roślinności na wysokości człowieka pomija znaczną część fauny.
Pozostawianie martwego drewna i warstwy ściółki zachowuje strukturę środowiska. Nie chodzi tylko o bezpośrednie kryjówki pająków, ale również o warunki życia ich ofiar i organizmów, które same żywią się pająkami. Uproszczenie podłoża zmienia zatem cały układ zależności.
Łąki i krajobraz rolniczy
W otwartych środowiskach ważne są wysokość roślinności, częstotliwość zabiegów i obecność miejsc schronienia. Koszenie może bezpośrednio usuwać sieci, lecz jego znaczenie zależy od terminu, intensywności i dostępności sąsiednich fragmentów. Nie istnieje jedna uniwersalna wysokość trawy korzystna dla wszystkich pająków: gatunki związane z nagrzewającą się powierzchnią gruntu mają inne potrzeby niż te budujące sieci w wysokich źdźbłach.
Na polach uprawnych znaczenie ma możliwość ponownego zasiedlania po zabiegach. Miedze, zarośla i inne elementy krajobrazu mogą działać jako miejsca przetrwania. Ochrona zespołów drapieżców jest zatem zagadnieniem przestrzennym, a nie tylko pytaniem o liczbę pająków w jednym kwadracie pola. [8]
Pustynie i obszary suche
Suchy krajobraz nie oznacza całkowitego braku pająków. Nory, szczeliny i aktywność w chłodniejszych porach ograniczają ekspozycję na niekorzystne warunki. Dla wielu gatunków istotne mogą być krótkie okresy zwiększonej dostępności pokarmu. W ocenie siedliska trzeba więc uwzględniać rytm sezonowy, a nie wyłącznie wygląd terenu podczas jednego pobytu.
Jaskinie
Jaskinie i inne środowiska podziemne mogą sprzyjać wyspecjalizowanym gatunkom o małych zasięgach. Ograniczenie lub utrata oczu nie jest oznaką „gorszego” organizmu, lecz wynikiem odmiennego kontekstu selekcji. Nie wszystkie pająki znajdowane w jaskini są jednak jej stałymi mieszkańcami: część zajmuje wyłącznie strefę wejściową albo pojawia się tam przypadkowo. [38, 50]
Mokradła i pająk topik
Argyroneta aquatica, czyli topik, spędza znaczną część życia pod wodą, korzystając z dzwonu powietrznego utrzymywanego przez jedwab. Badanie Seymoura i Hetza wykazało, że dzwon może pobierać tlen rozpuszczony w wodzie i działać jak fizyczne skrzele. Pająk nadal oddycha powietrzem; nie staje się zwierzęciem wyposażonym w skrzela. [16]
Nie wszystkie pająki przy wodzie żyją w taki sposób. Część poluje na powierzchni lub przy brzegu, inne budują sieci chwytające owady związane z wodą. Ochrona mokradła powinna uwzględniać nie tylko sam zbiornik, lecz również roślinność brzegową i jego otoczenie.
Miasto i budynki
Zabudowa tworzy ciepłe, osłonięte miejsca, pionowe powierzchnie i liczne szczeliny. Niektóre pająki doskonale wykorzystują te warunki. Światło przyciągające owady może miejscowo zwiększać dostępność ofiar, ale równocześnie zmienia naturalną strukturę aktywności. Duża liczba pająków przy jednej lampie nie oznacza, że cała miejska fauna ma się dobrze.
Pająki domowe nie są jednolitą grupą. Część regularnie żyje w budynkach, inne trafiają tam podczas wędrówki. Wielki osobnik zauważony jesienią może być samcem poszukującym partnerki, a nie oznaką „plagi” lub gwałtownego wzrostu liczby pająków. [46]
17 Atlas wybranych rodzajów
Poniższa tabela odpowiada na pytanie o rodzaje w ścisłym sensie systematycznym. Zasięgi podano szeroko i opisowo, bez sugerowania obecności każdego gatunku w całym regionie. Rodzaj może obejmować gatunki o odmiennych wymaganiach ekologicznych. Aktualną przynależność konkretnego gatunku należy sprawdzać w katalogu. Zestawienie syntetyzuje także informacje o biologii opisane we wcześniejszych rozdziałach. [1, 13, 16–20, 25, 30–32, 40, 42, 43, 45, 46, 52, 56]
| Rodzaj | Rodzina | Gdzie jest szczególnie znany i czym się wyróżnia |
|---|---|---|
| Araneus | Araneidae | Wiele regionów świata; liczne gatunki budują sieci koliste; obejmuje europejskiego krzyżaka ogrodowego |
| Argiope | Araneidae | Liczne regiony ciepłe i umiarkowane; kontrastowe samice, często wyraźny dymorfizm płciowy |
| Caerostris | Araneidae | Tropiki; madagaskarski C. darwini jest przedmiotem badań mechaniki jedwabiu |
| Salticus | Salticidae | Skakuny rozpoznawalne w Europie między innymi na ścianach i korze; polowanie z wykorzystaniem wzroku |
| Maratus | Salticidae | Szczególnie znany z Australii; u wielu gatunków efektowne sygnały godowe samców |
| Bagheera | Salticidae | Ameryki; B. kiplingi wyróżnia się dużym udziałem pokarmu roślinnego |
| Toxeus | Salticidae | Między innymi Azja; u T. magnus opisano karmienie młodych wydzieliną |
| Pardosa | Lycosidae | Liczne naziemne pająki wielu regionów; identyfikacja wielu gatunków wymaga szczegółowej analizy |
| Misumena | Thomisidae | Znana między innymi z pająków zasadzających się w roślinności i na kwiatach |
| Pholcus | Pholcidae | Obejmuje gatunki związane z budynkami, ale także liczne inne formy; długie nogi nie czynią ich kosarzami |
| Eratigena | Agelenidae | Kątniaki znane z Europy i części obszarów introdukcji; sieć z płachtą i kryjówką |
| Latrodectus | Theridiidae | Wdowy z wielu regionów świata; znaczenie medyczne wymaga oceny gatunku i miejsca |
| Steatoda | Theridiidae | Często określane jako fałszywe wdowy; podobna nazwa nie oznacza identycznego obrazu klinicznego |
| Heteropoda | Sparassidae | Liczne formy azjatyckie i tropikalne; H. maxima jest znany z Laosu |
| Dolomedes | Dolomedidae | Wiele gatunków związanych z wodą i roślinnością brzegową; rodzina zmieniona względem starszych źródeł |
| Argyroneta | Argyronetidae | Topik i jego podwodny dzwon powietrzny; w starszych opracowaniach inna przynależność rodzinna |
| Liphistius | Liphistiidae | Azja Południowo-Wschodnia; pająki norowe z linii Mesothelae |
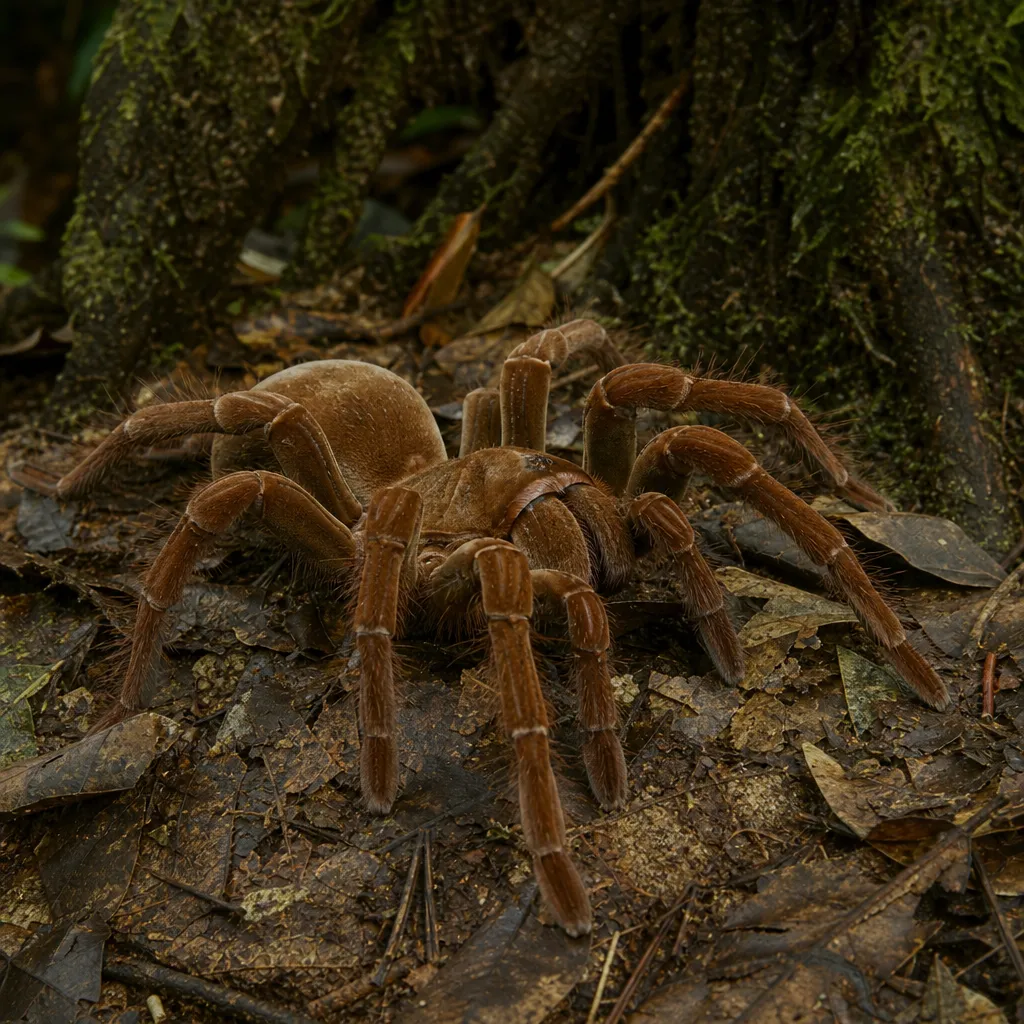
| Theraphosa | Theraphosidae | Północna część Ameryki Południowej; masywne ptaszniki znane z dużych rozmiarów |
| Phoneutria | Ctenidae | Ameryka tropikalna i subtropikalna; część gatunków ma istotne znaczenie medyczne |
| Loxosceles | Sicariidae | Różne regiony, w tym obszary zawleczeń; część ukąszeń może powodować uszkodzenia tkanek |
Nazwy potoczne bywają wieloznaczne. „Pająk bananowy” może oznaczać w różnych krajach zupełnie różne zwierzęta. „Czarna wdowa” również nie zawsze odnosi się do jednego gatunku. W profesjonalnym tekście najbezpieczniej podać nazwę naukową, a nazwę potoczną traktować jako pomocniczą.
18 Znaczenie ekologiczne i gospodarcze
Ile ofiar zabijają pająki
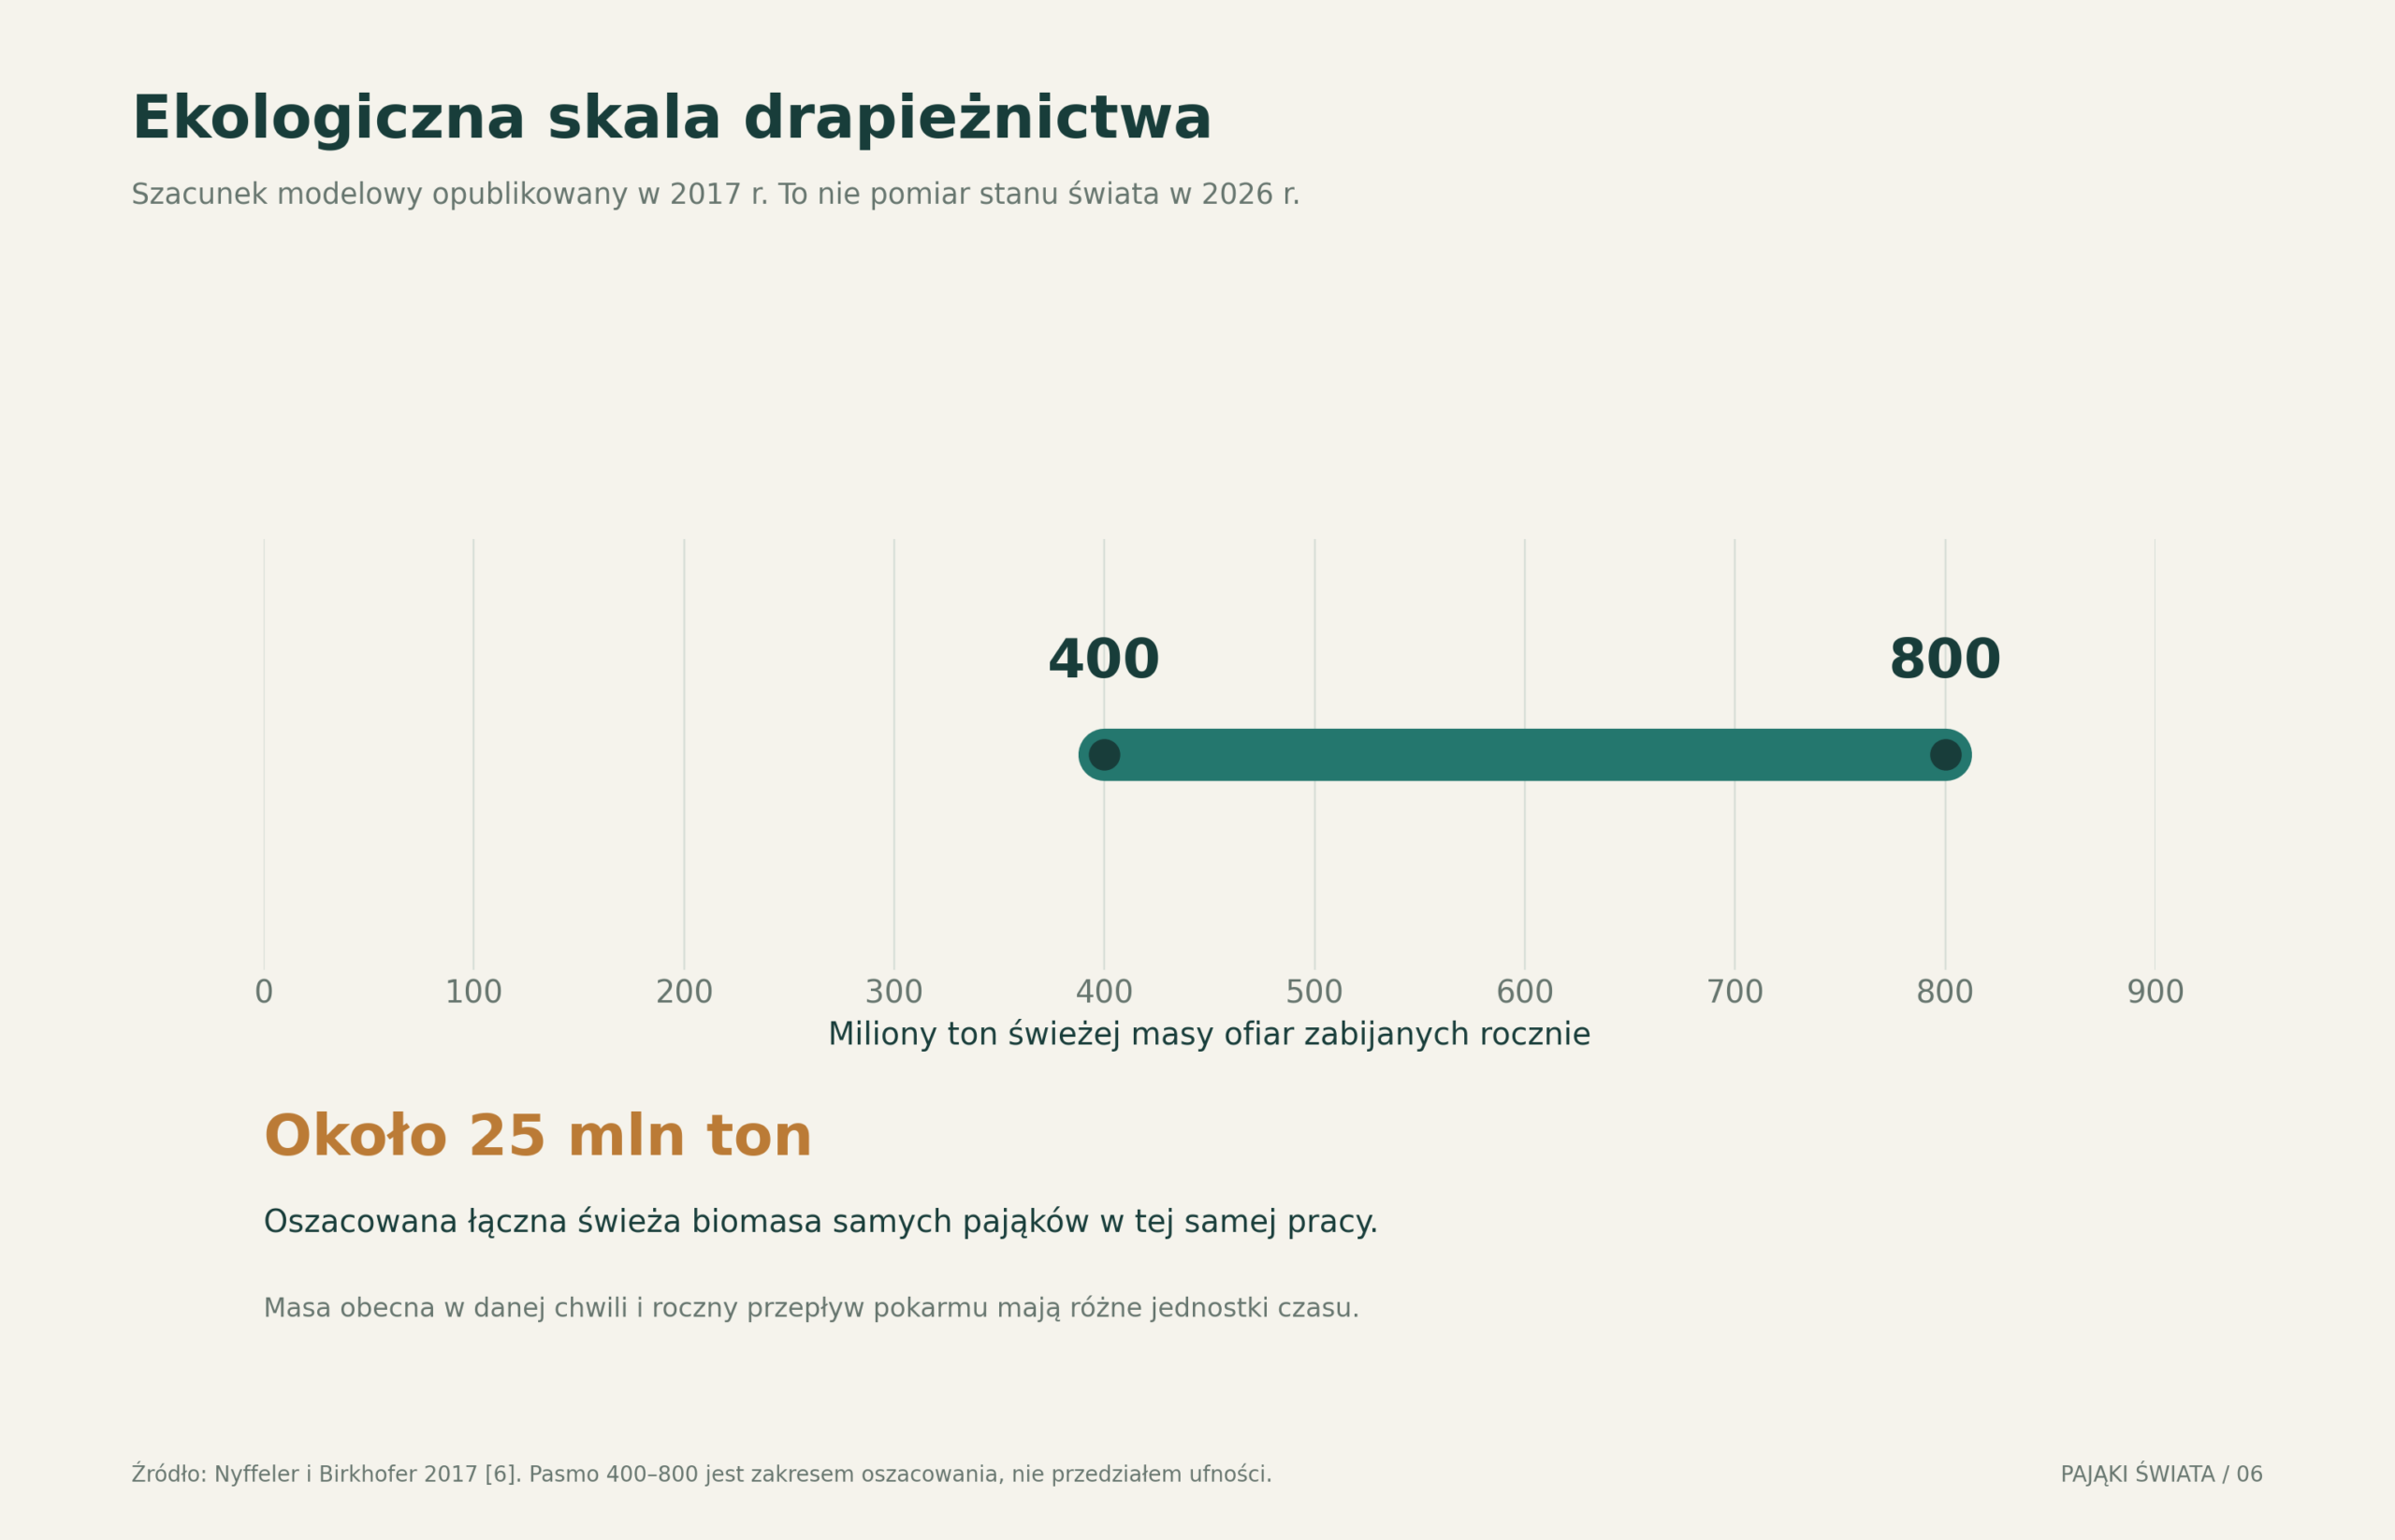
Nyffeler i Birkhofer oszacowali globalną roczną masę ofiar zabijanych przez pająki na 400–800 milionów ton świeżej masy. W tej samej pracy stojącą biomasę pająków oszacowano na około 25 milionów ton. Są to wyniki ekstrapolacji opublikowanej w 2017 roku, opartej na danych z różnych środowisk, a nie coroczny światowy spis. [6]
Zakres 400–800 milionów ton nie jest przedstawiony jako formalny 95-procentowy przedział ufności. Nie należy wybierać wyłącznie jego górnej granicy ani nazywać jej dokładną konsumpcją wszystkich pająków. Ponadto masa zabitych ofiar i masa pokarmu rzeczywiście przyswojonego przez drapieżnika to różne wielkości.
Dane wskazują na bardzo dużą rolę pająków w przepływie energii przez ekosystemy. Nie uprawniają natomiast do twierdzenia, że pająki samodzielnie kontrolują wszystkie populacje owadów albo że ich całkowity brak dałoby się opisać prostym mnożnikiem liczebności szkodników.
Pająki w ochronie upraw
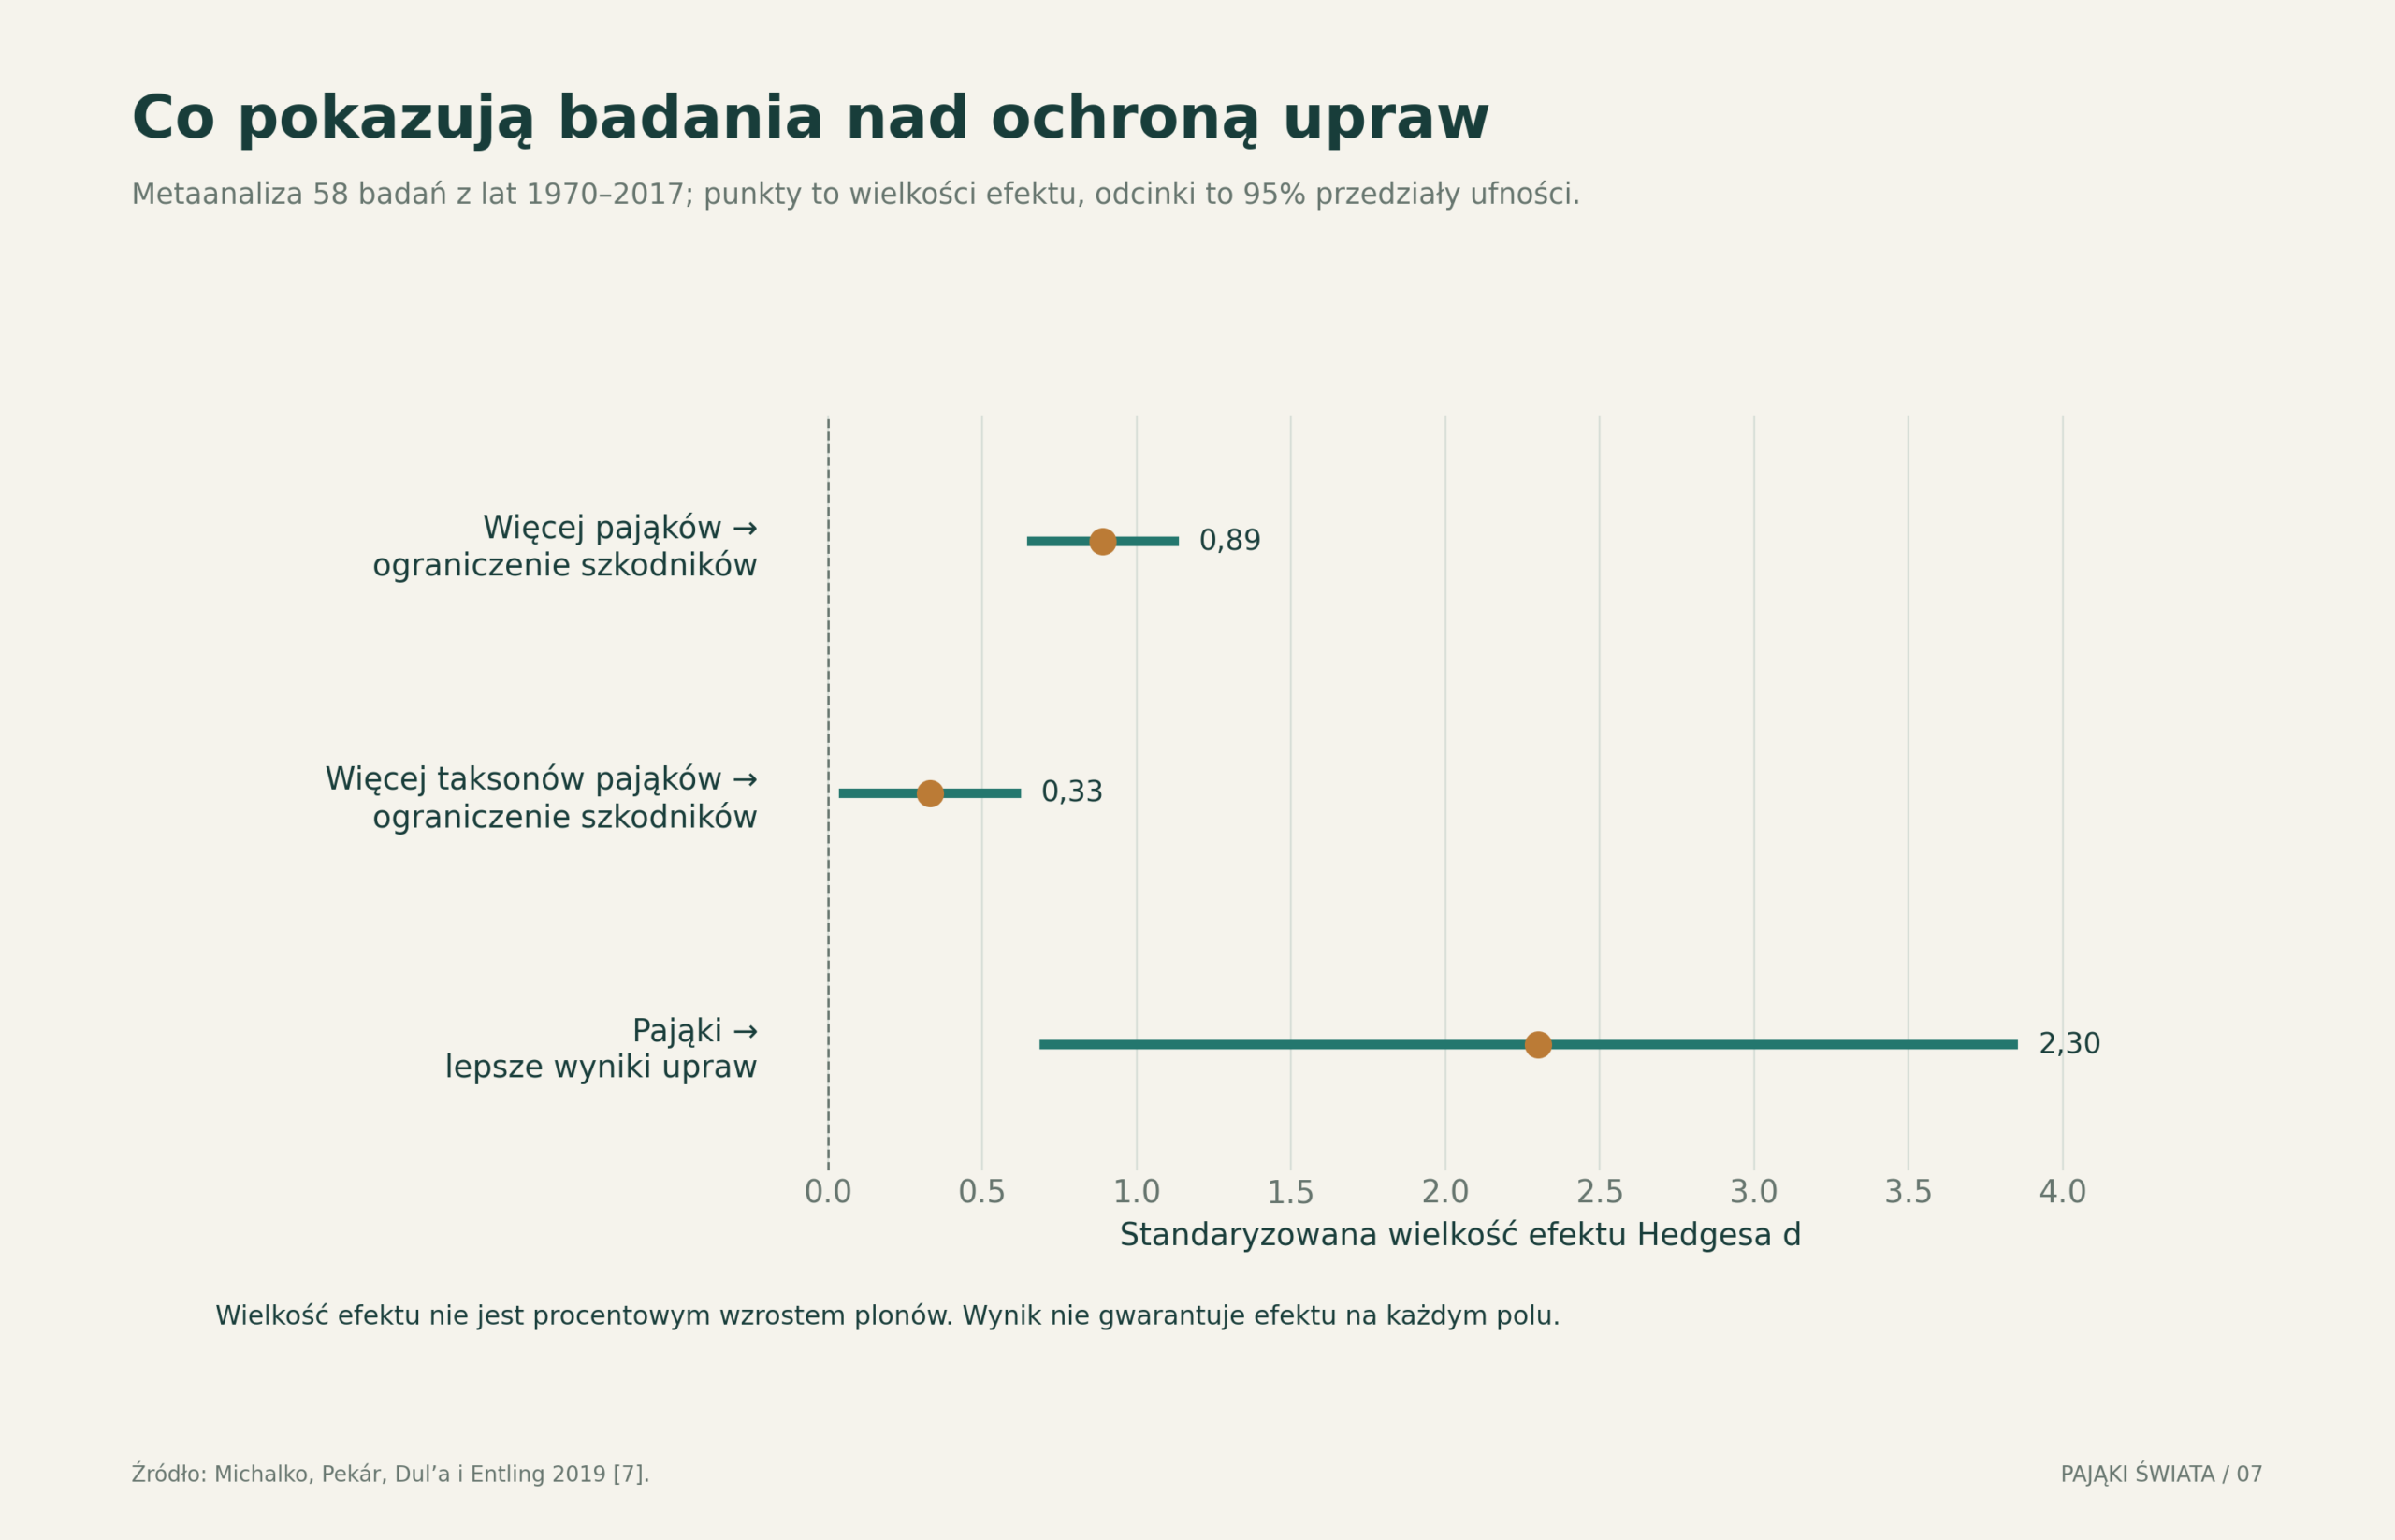
Metaanaliza 58 badań z lat 1970–2017 wykazała ograniczanie szkodników w 79% analizowanych przypadków. Autorzy stwierdzili dodatni średni wpływ pająków na kontrolę szkodników i wyniki upraw. Na wykresie przedstawiono standaryzowane wielkości efektów wraz z przedziałami ufności. Wartości te nie są procentowymi zmianami plonu. [7]
Znaczenie praktyczne polega na uznaniu pająków za część zespołu naturalnych wrogów szkodników. Efekt zależy od struktury siedliska, rodzaju uprawy, ofiar i pozostałych drapieżców. Pająki mogą także zjadać inne organizmy pożyteczne albo siebie nawzajem. Z tego powodu najlepszą jednostką zarządzania jest cały zespół i krajobraz, a nie jeden „idealny” gatunek. [8]
Dla gospodarstwa rolnego rozsądny kierunek to ocena, czy sposób prowadzenia zabiegów zachowuje refugia i ciągłość zasiedlania. Nie oznacza to automatycznego zalecenia zaniechania każdej interwencji. Skuteczność działań należy sprawdzać na podstawie lokalnych danych o szkodnikach, uszkodzeniach i produkcji.
Pająki same są pokarmem
Pająki pozostają ogniwem sieci pokarmowej, a nie jej końcowym punktem. Padają ofiarą ptaków, innych stawonogów i kręgowców. Ich kokony mogą być atakowane przez pasożyty i parazytoidy. Dlatego spadek dostępności pająków może oddziaływać również na organizmy, które korzystają z nich jako zasobu, a nie tylko na ofiary przez nie zjadane. [11, 19]
Przy ocenie roli gatunku warto unikać dzielenia przyrody na bezwzględnie „pożyteczną” i „szkodliwą”. Pająk może ograniczać owada niszczącego plony, a w innym miejscu chwytać zapylacza. Funkcja zależy od kontekstu, zaś ochrona różnorodności wykracza poza bezpośrednią użyteczność gospodarczą.
19 Tempo odkryć i warsztat arachnologii
Dlaczego nadal opisuje się nowe gatunki
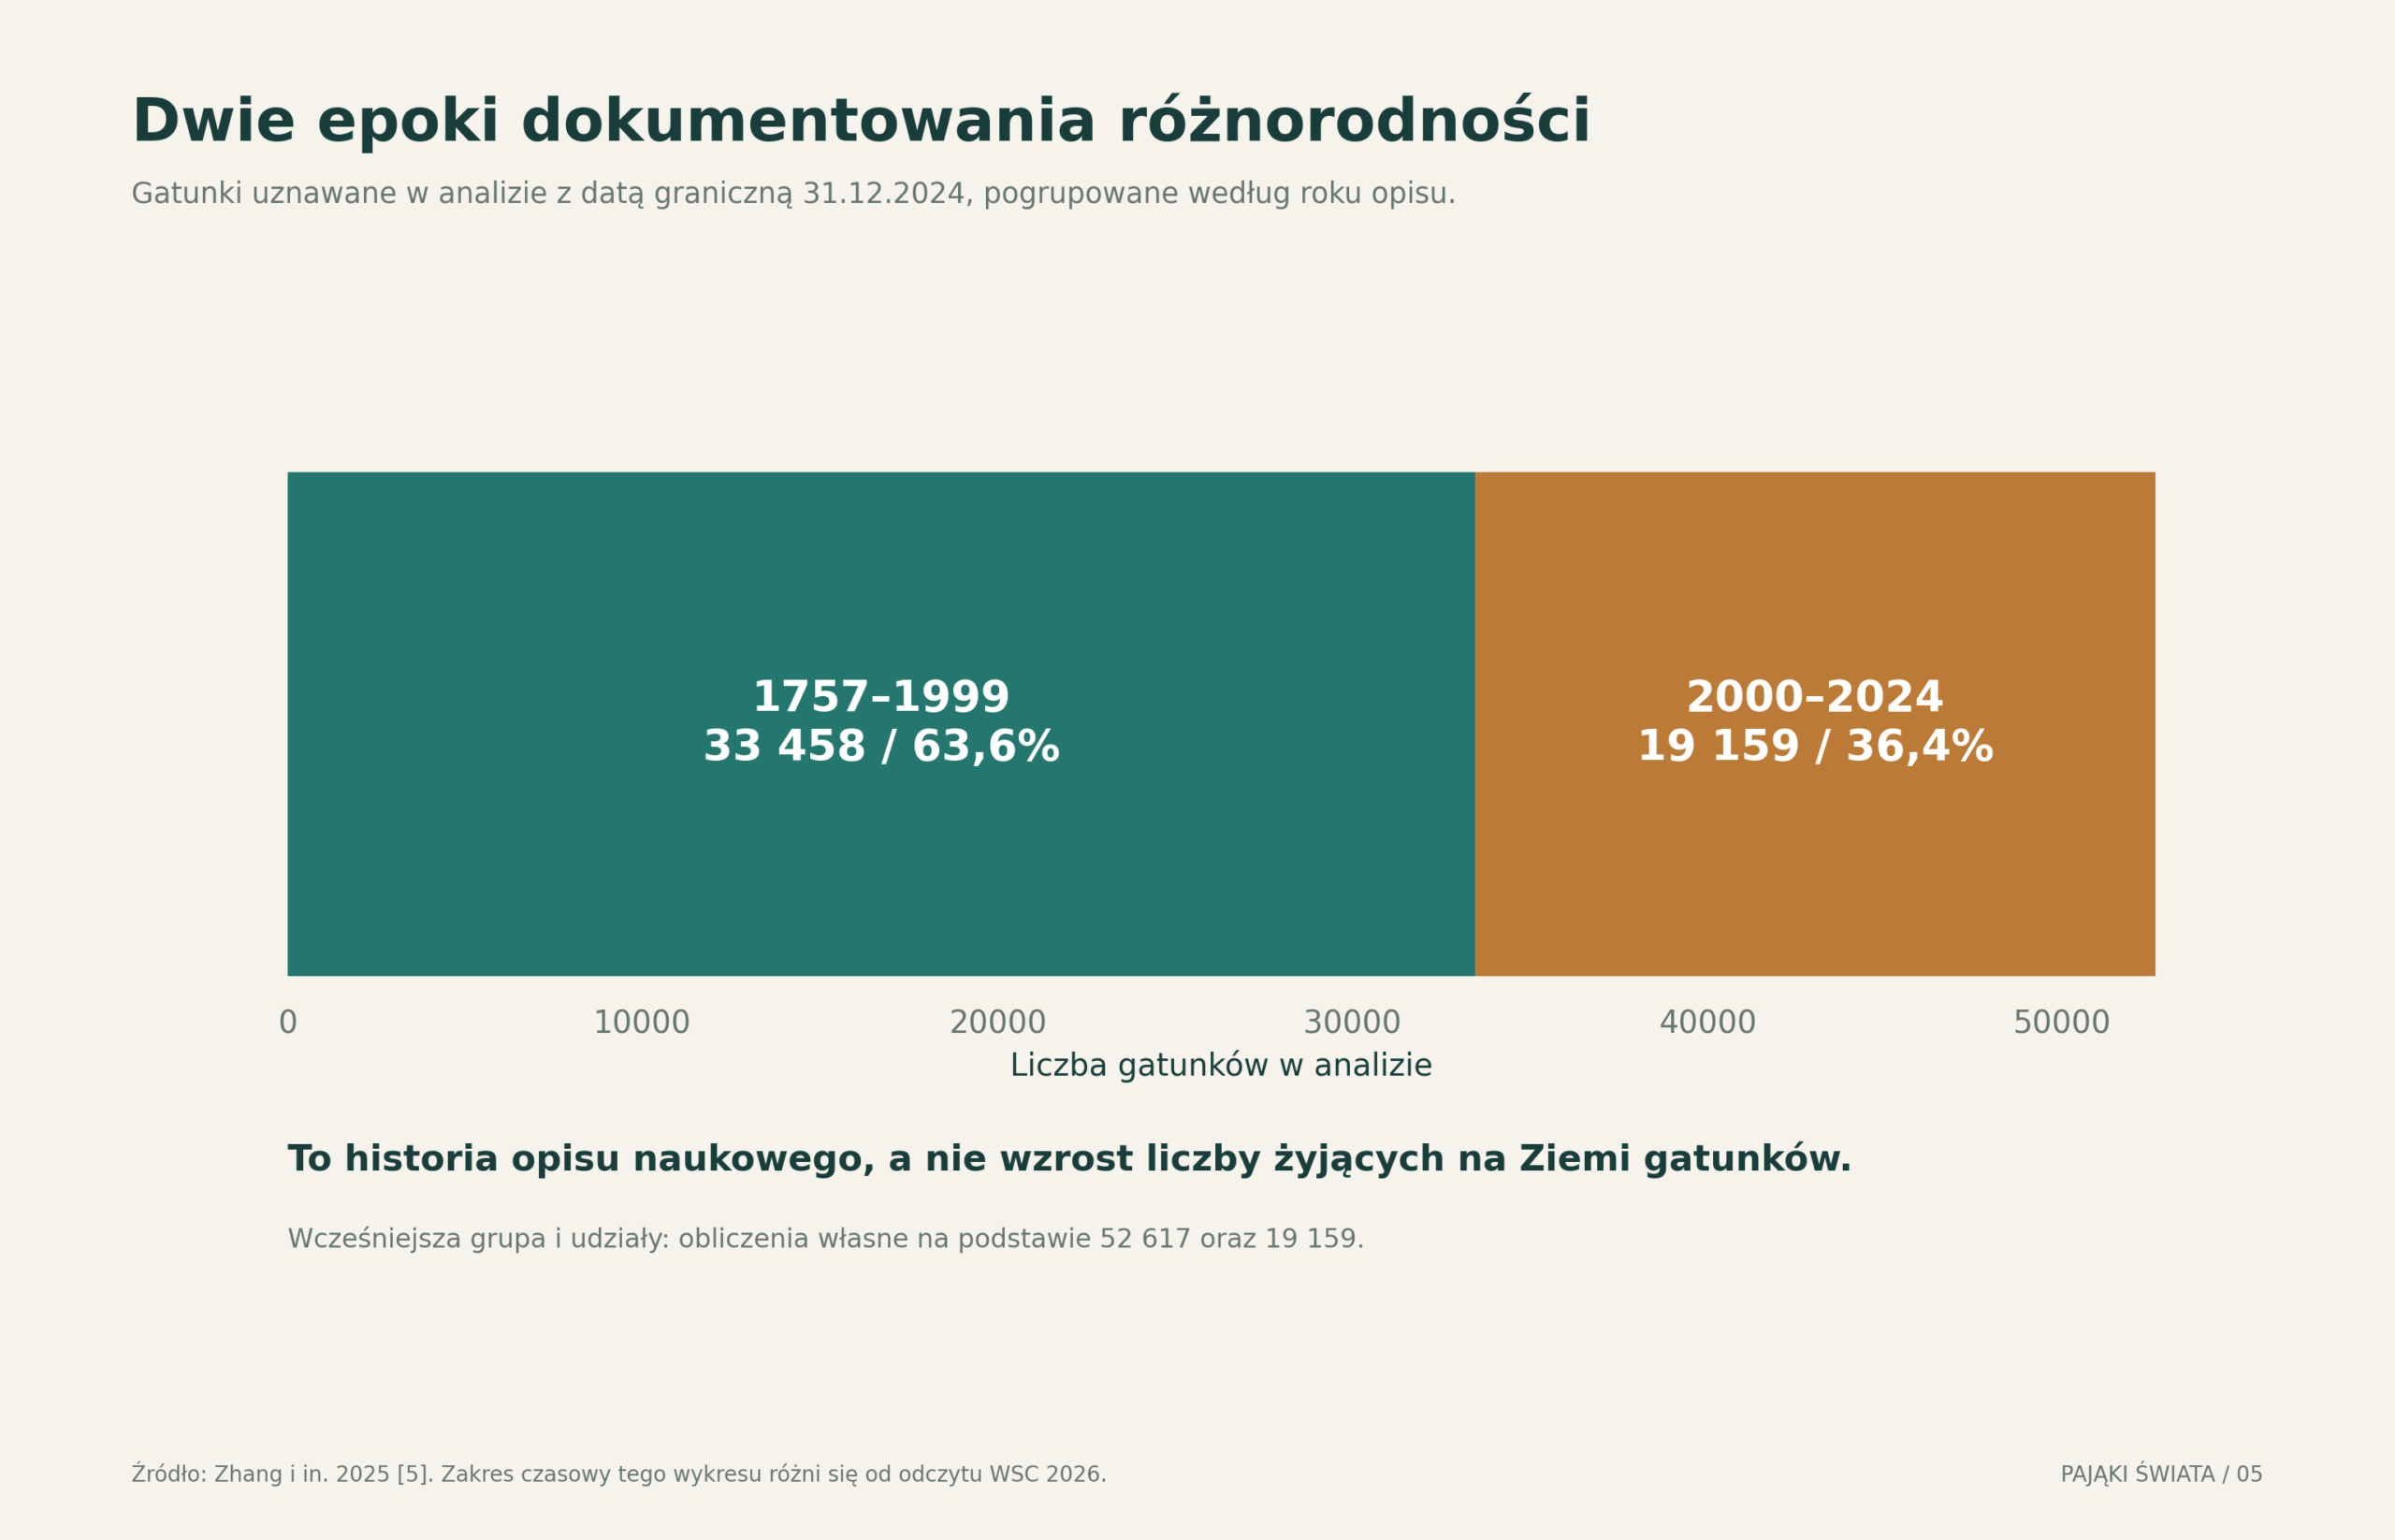
W analizie Zhang i współautorów materiał obejmował 52 617 gatunków z datą graniczną 31 grudnia 2024 roku. Spośród nich 19 159 opisano w latach 2000–2024. Odpowiada to około 36,4% badanego zbioru, według obliczenia na tych dwóch wartościach. Nie jest to odsetek wszystkich gatunków, które żyją na planecie, ani odsetek wyliczony z późniejszej sumy WSC z 2026 roku. [5]
Nowe opisy wynikają zarówno z wypraw terenowych, jak i badania dawnych zbiorów. Okaz może przez wiele lat pozostawać w muzeum, zanim trafi do specjalisty znającego daną grupę. Bibliografia, typy nomenklatoryczne i dobre fotografie struktur są równie ważne jak samo znalezienie zwierzęcia.
Jak rozpoznaje się gatunek
Fotografia może wystarczyć dla części charakterystycznych form, lecz wiele oznaczeń wymaga dojrzałych osobników i analizy narządów rozrodczych. Ubarwienie zmienia się wraz z wiekiem, płcią, warunkami i stanem zachowania okazu. Zbyt pewna identyfikacja młodego pająka na podstawie ogólnego podobieństwa jest częstym źródłem błędów.
DNA wspomaga rozpoznawanie, wykrywa ukryte zróżnicowanie i łączy stadia rozwojowe. Nie jest jednak samoczynną maszyną nadającą nazwy. Grupa sekwencji wyodrębniona algorytmem wymaga interpretacji taksonomicznej. Przegląd kanadyjski pokazał, że liczba jednostek kodów kreskowych DNA może być większa od liczby formalnie rozpoznanych gatunków. [26]
Jak bada się zespół pająków
Różne metody obejmują odmienne fragmenty fauny. Przesiewanie ściółki, otrząsanie roślinności, obserwacje nocne i poszukiwanie sieci nie są zamienne. Pułapki gruntowe odzwierciedlają również aktywność przemieszczających się osobników, więc sam odłów nie jest czystym pomiarem ich zagęszczenia.
Dobry projekt opisuje powierzchnię, termin, czas pracy, metodę i sposób oznaczania. Powtarzalność jest ważniejsza niż efektowna pojedyncza liczba. Bez niej trudno rozróżnić zmianę przyrody od zmiany sposobu jej obserwowania.
20 Pająki i zdrowie człowieka
Jad nie oznacza automatycznie dużego ryzyka
Zdecydowana większość spotkań z pająkami nie kończy się poważnym zatruciem. Jad służy przede wszystkim biologii drapieżnictwa i obrony. Znaczenie medyczne zależy od gatunku, ilości wprowadzonego jadu, okoliczności i stanu poszkodowanego. Rozpiętość nóg, owłosienie czy atrakcyjność medialna nie są wiarygodnymi miarami ryzyka.
W materiałach zdrowotnych szczególnie często omawia się Latrodectus, Loxosceles, Phoneutria oraz australijskie Atracidae. Nie oznacza to, że wszystkie ukąszenia tych pająków przebiegają jednakowo lub że można zbudować jeden obiektywny ranking „najgroźniejszych”. Badania toksyczności laboratoryjnej i rzeczywiste ryzyko dla podróżnego opisują odmienne zjawiska. [34, 37, 52]
Nie każda zmiana skórna jest ukąszeniem
Bolesny, zaczerwieniony lub martwiczy obszar skóry nie potwierdza sam w sobie kontaktu z pająkiem. Mayo Clinic wskazuje, że podobny obraz mogą dawać inne ukąszenia, infekcje i choroby skóry. Bez obserwowanego zdarzenia i wiarygodnego oznaczenia sprawcy przypisanie konkretnego gatunku może być nieuzasadnione. [35]
To ważne również statystycznie. Rejestr podejrzeń ukąszenia nie jest równoważny zbiorowi przypadków potwierdzonych identyfikacją pająka. Różnice między krajami mogą wynikać z procedur zgłaszania, dostępności opieki i praktyki diagnostycznej. Dlatego w opracowaniu nie zestawiono nieporównywalnych zgłoszeń w globalny ranking niebezpieczeństwa.
Kiedy potrzebna jest pomoc
Duszność, omdlenie, nasilone objawy ogólne lub szybko pogarszający się stan wymagają pilnej pomocy medycznej. W Polsce w nagłym zagrożeniu życia należy dzwonić pod 112. Narastający ból, gorączka, rozległe zmiany skóry i podejrzenie kontaktu z gatunkiem istotnym medycznie również uzasadniają kontakt z personelem medycznym. Nie należy próbować rozpoznawać ciężkości zatrucia wyłącznie ze zdjęć internetowych. [34, 35]
Ogólne zasady obejmują ograniczenie dalszego kontaktu, zachowanie spokoju i stosowanie lokalnych wytycznych. Nie nacina się rany, nie wysysa jadu i nie podejmuje niebezpiecznej próby chwytania pająka. Zdjęcie wykonane bez zbliżania się może pomóc, ale nie powinno opóźniać uzyskania pomocy.
Istotny wyjątek geograficzny: w Australii podejrzenie ukąszenia przez funnel-web lub mouse spider wymaga postępowania według lokalnych zasad, obejmujących uciskowe unieruchomienie i pilną pomoc. Tej techniki nie zaleca się rutynowo dla redbacka ani wszystkich innych ukąszeń. Nie należy zatem przenosić jednej instrukcji na każdą sytuację na świecie. [36, 37]
Zapobieganie przypadkowym kontaktom
W miejscach występowania gatunków istotnych medycznie warto sprawdzać długo nieużywaną odzież i obuwie, zakładać rękawice do prac z materiałami składowanymi na zewnątrz i nie wkładać dłoni w niewidoczne szczeliny. Celem jest uniknięcie przyciśnięcia zwierzęcia. Podróżny powinien znać lokalny numer alarmowy i zasady postępowania właściwe dla regionu. [34]
21 Zagrożenia i ochrona
Utrata siedlisk
Gatunki o wąskim zasięgu mogą być szczególnie wrażliwe na przekształcenie niewielkiego obszaru. Dla pająka zależnego od konkretnej jaskini, torfowiska lub fragmentu lasu ogólna obecność zieleni w regionie nie jest wystarczającym zabezpieczeniem. Siedlisko musi zachować właściwe warunki, strukturę i połączenia z innymi odpowiednimi miejscami.
W globalnej ocenie eksperckiej za ważne zagrożenia uznano między innymi sposób użytkowania gruntów, zmiany klimatu, urbanizację i zanieczyszczenia, w tym pestycydy. Badanie stanowiło ocenę ekspertów, nie bezpośredni pomiar jednolitego tempa spadku wszystkich światowych populacji. Autorzy podkreślili znaczenie ochrony obszarów oraz edukacji. [22]
Dlaczego nie podajemy jednego światowego procentu zaniku
Nie istnieje w wykorzystanych źródłach kompletny, porównywalny monitoring każdego gatunku. Dane o lokalnym spadku liczebności nie mogą być bez dodatkowej analizy przedstawiane jako procentowy ubytek wszystkich pająków świata. Brak oceny zagrożenia w bazie nie oznacza też, że gatunek jest bezpieczny.
Status czerwonej listy ma datę, kryteria i skalę geograficzną. Gatunek może być rzadki w jednym kraju, a szeroko rozmieszczony poza nim. Odkrycie nowych stanowisk może zmienić ocenę, ale nie musi usuwać zagrożeń na dawnych stanowiskach. British Arachnological Society opisuje takie różnice i potrzebę aktualizacji ocen. [23]
Co można poprawić w praktyce
Dla ogrodu lub terenu zieleni sensowne jest zachowanie mozaiki struktur: części wyższej roślinności, ściółki, drewna, kamieni i miejsc mniej intensywnie użytkowanych. Takie działania tworzą różne mikrohabitaty. Nie należy jednak przedstawiać jednego uniwersalnego przepisu jako optymalnego dla wszystkich gatunków.
W skali krajobrazu istotne są ciągłość siedlisk, jakość wód i ograniczanie niepotrzebnego niszczenia miejsc rozrodu. W ochronie mało znanych grup trzeba również wspierać badania: bez identyfikacji gatunków i mapowania zasięgów trudno określić priorytety. Kolekcja referencyjna i dobrze opisany monitoring mogą mieć równie praktyczne znaczenie jak efektowna kampania informacyjna.
22 Atlas gatunków: szesnaście portretów biologicznych
Rodzina pomaga umiejscowić pająka w drzewie pokrewieństwa, ale dopiero gatunek pozwala zadać konkretne pytania o rozmiary, siedlisko i zachowanie. Poniższy atlas łączy gatunki możliwe do zaobserwowania w Europie z przykładami ważnymi dla badań prowadzonych na innych kontynentach. Dobór pokazuje różne rozwiązania tych samych problemów: zdobywania pokarmu, rozrodu, przemieszczania się i przetrwania zmian środowiska.
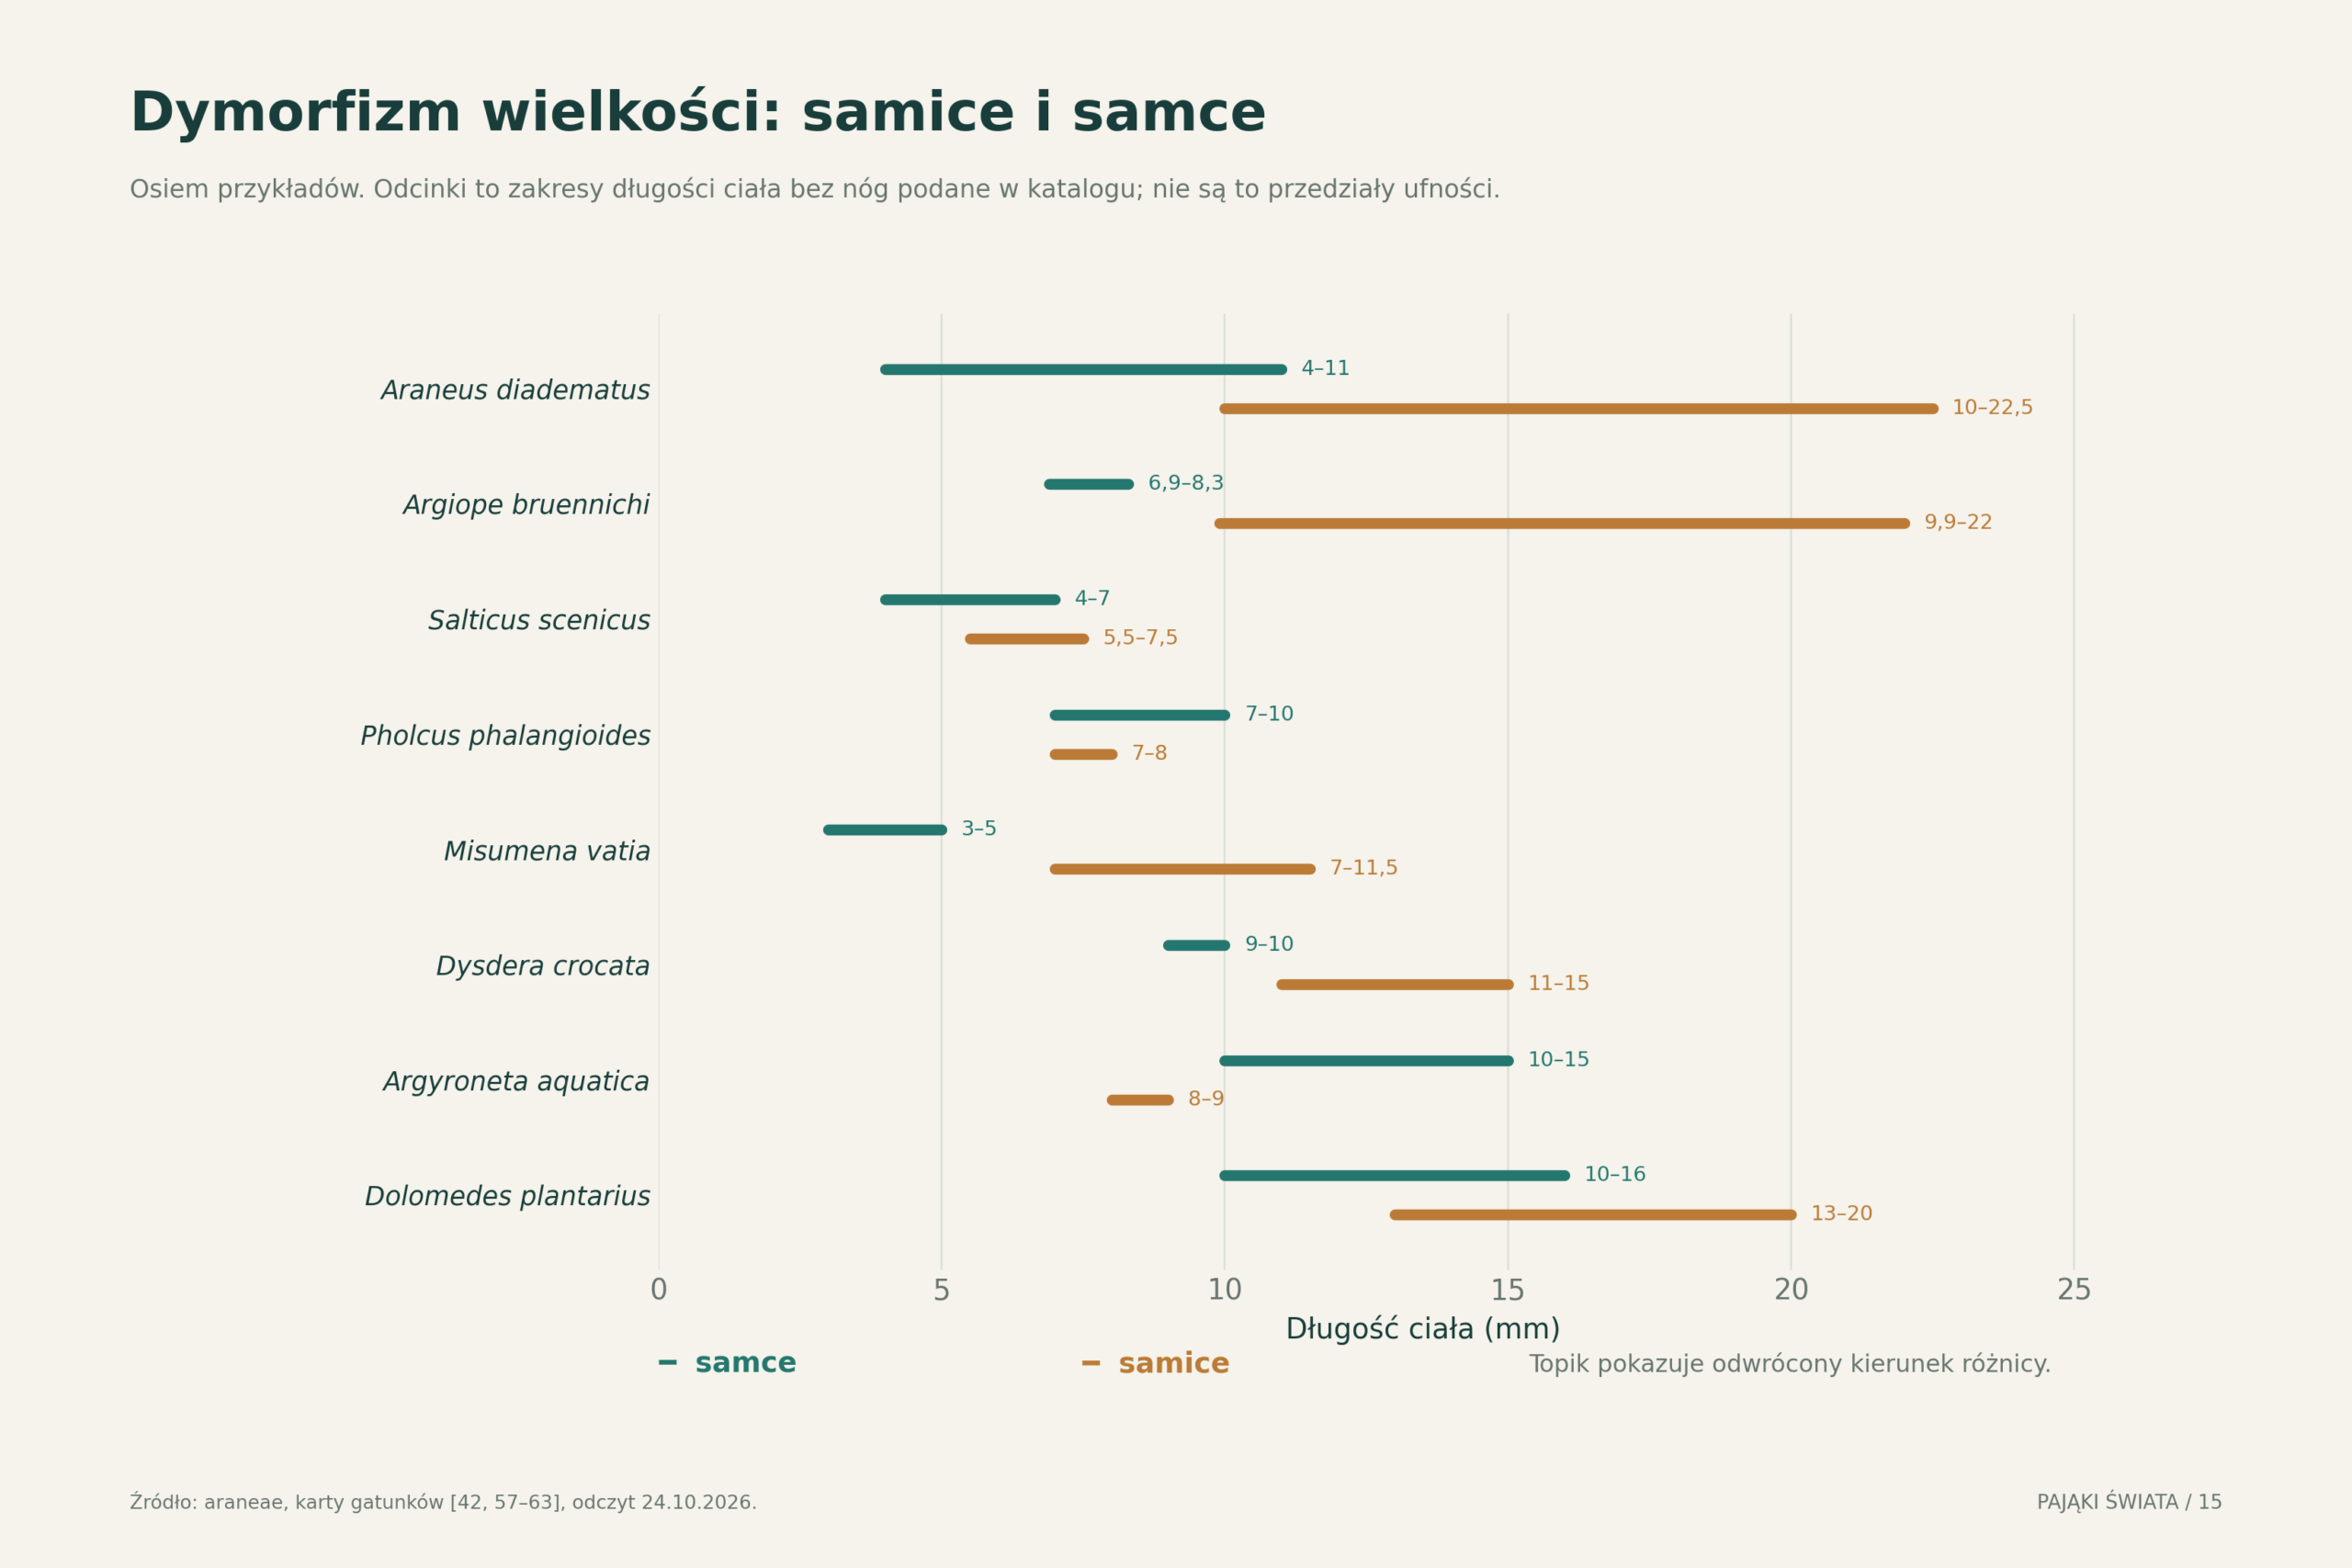
Przy podawaniu rozmiarów chodzi o długość ciała bez nóg, chyba że wyraźnie zaznaczono inaczej. Zakres katalogowy nie jest średnią ani przedziałem ufności. Nie oznacza też, że wszystkie osobniki z każdej populacji muszą mieścić się dokładnie w podanych granicach. Płeć, dojrzałość i sposób pomiaru są niezbędne do interpretacji liczb.
Krzyżak ogrodowy — Araneus diadematus
Karta gatunku w atlasie: Araneus diadematus
Rodzina: Araneidae. W bazie araneae samice mają 10,0–22,5 mm długości ciała, a samce 4,0–11,0 mm. Jasny wzór przypominający krzyż jest charakterystyczny, lecz barwa tła bywa żółtawa, brunatna, czerwonawa lub bardzo ciemna. Gatunek występuje na roślinach zielnych i krzewach, na skrajach lasów, w ogrodach i przy budynkach. Jego rozległy zasięg obejmuje znaczną część Eurazji; w Ameryce Północnej jest gatunkiem introdukowanym. [57]
To dobry przykład do obserwowania zależności między konstrukcją a miejscem jej zawieszenia. Zamiast ograniczać dokumentację do zdjęcia odwłoka, warto utrwalić całą sieć i jej punkty mocowania. Taka para fotografii odpowiada na dwa różne pytania: jak wygląda zwierzę i w jakiej przestrzeni funkcjonuje jego pułapka.
Tygrzyk paskowany — Argiope bruennichi
Karta gatunku w atlasie: Argiope bruennichi
Rodzina: Araneidae. Samice są wyraźnie większe od samców i mają kontrastowy wzór odwłoka. Katalogowe zakresy długości ciała wynoszą odpowiednio 9,9–22,0 mm oraz 6,9–8,3 mm. Gatunek zajmuje szeroki obszar od Europy i północnej Afryki po wschodnią Azję. [42]
Znaczenie tygrzyka wykracza poza rozpoznawalny wygląd. Jego ekspansja w Europie jest modelem do badania zależności między klimatem, przemieszczaniem się osobników i zmianami genetycznymi. Nie każde nowe zdjęcie stanowi jednak dowód rozszerzenia zasięgu: znaczenie ma porównanie z dokumentacją historyczną. Rozdział 27 pokazuje, jak do takiego pytania podchodzono eksperymentalnie. [73]
Skakun arlekinowy — Salticus scenicus
Karta gatunku w atlasie: Salticus scenicus
Rodzina: Salticidae. Niewielki mieszkaniec nasłonecznionych murów i skał ma kontrastowe jasne pasy na ciemnym ciele. Samice osiągają według araneae 5,5–7,5 mm, samce 4,0–7,0 mm. Gatunek jest znany z Ameryki Północnej, Europy i części Azji. [58]
Jego obserwacja uczy oddzielania ruchu lokomocyjnego od orientacji. Zatrzymanie się i zwrócenie przedniej części ciała ku obiektowi może być częścią oglądania otoczenia. Do dokumentacji zachowania bardziej przydatna od pojedynczej efektownej klatki jest krótka sekwencja pokazująca to, co działo się przed skokiem. Rozpoznanie skakuna nie uprawnia natomiast do przypisywania mu wszystkich zdolności wykazanych u innych przedstawicieli tej dużej rodziny.
Nasosznik trzęś — Pholcus phalangioides
Karta gatunku w atlasie: Pholcus phalangioides
Rodzina: Pholcidae. Długie, cienkie nogi sprawiają, że rozpiętość zwierzęcia znacznie przewyższa długość ciała. W wykorzystanym katalogu ciało samca ma 7–10 mm, a samicy 7–8 mm. Pająk wisi od spodu w nieregularnej sieci. Jest częsty w budynkach; jego pierwotny zasięg wiąże się z zachodnią Azją, a obecność na wielu kontynentach wynika z introdukcji. [59]
Nasosznik jest też dobrym przykładem pułapki językowej. Potoczne nazwy przypominające „długonogiego pająka” bywają odnoszone do kosarzy, które należą do innego rzędu pajęczaków. W dokumentacji należy więc zapisywać nazwę naukową albo pozostawić oznaczenie na wyższym poziomie, jeśli fotografia nie pozwala na pewną identyfikację.
Kwietnik — Misumena vatia
Karta gatunku w atlasie: Misumena vatia
Rodzina: Thomisidae. Samice mają 7,0–11,5 mm długości ciała, samce 3,0–5,0 mm. Kwietnik poluje z zasadzki na kwiatach, gdzie może chwytać odwiedzające je owady. Zmiana barwy u dorosłych osobników następuje w ciągu dni, nie jest natychmiastowym „przebieraniem się” przy każdym przemieszczeniu na inny płatek. [60]
Kwietnik przypomina, że kategorie „pożyteczny” i „szkodliwy” zależą od pytania stawianego przez człowieka. Drapieżnik na kwiecie może zjadać również zapylacze. Obserwacja jednego takiego zdarzenia nie wystarcza do policzenia skutków dla całej łąki: potrzebne byłyby dane o częstości polowań, ofiarach i odpowiedzi roślin.
Dysdera crocata — przykład gatunku przenoszonego przez człowieka
Karta gatunku w atlasie: Dysdera crocata
Rodzina: Dysderidae. Czerwono-brunatny głowotułów i wyraźne szczękoczułki odróżniają ten typ sylwetki od wielu pospolitych pająków sieciowych. Katalog podaje 9–10 mm dla samców i 11–15 mm dla samic. Gatunek spotyka się między innymi pod kamieniami i drewnem, w ściółce, ogrodach i wilgotnych piwnicach. Obszar pierwotnego występowania należy odróżniać od licznych introdukcji, m.in. do obu Ameryk, południowej Afryki, Australii i Nowej Zelandii. [63]
Sam wygląd szczękoczułków nie stanowi miary zagrożenia medycznego. W atlasie cecha ta służy opisowi budowy; ocena ukąszenia jest odrębnym zagadnieniem. Dla biogeografii ważniejsze jest tutaj to, czy zapis dotyczy trwałej populacji, czy pojedynczego zawleczonego osobnika.
Topik — Argyroneta aquatica
Karta gatunku w atlasie: Argyroneta aquatica
Rodzina: Argyronetidae w zastosowanym ujęciu WSC. Topik żyje w wodzie, wykorzystując powietrze utrzymywane przy ciele i w jedwabnym dzwonie. W zestawieniu araneae samce mają 10–15 mm, samice 8–9 mm długości ciała. Jest więc przykładem, dla którego proste hasło „samica pająka zawsze jest większa” nie działa. Zasięg obejmuje Europę i rozległą część Azji. [56, 61]
Srebrzysty wygląd zanurzonego osobnika wynika z warstwy powietrza. Dzwon jest zarówno schronieniem, jak i elementem układu oddechowego: może pobierać rozpuszczony tlen z wody przez dyfuzję do zgromadzonego gazu. Nie produkuje jednak tlenu. Znaczenie temperatury, natlenienia i uzupełniania powietrza opisano przy rycinie w rozdziale 25. [16]
Bagnik nadwodny — Dolomedes plantarius
Karta gatunku w atlasie: Dolomedes plantarius
Rodzina: Dolomedidae w zastosowanym ujęciu WSC. Samice mają w katalogu 13–20 mm długości ciała, a samce 10–16 mm. Zasięg obejmuje Europę oraz część zachodniej i środkowej Azji. [43, 62]
Ten duży pająk mokradeł jest szczególnie ważny dla ochrony przyrody. Brytyjski program pokazuje, że liczenie widocznych osobników to tylko część pracy: trzeba też zabezpieczyć wodę, roślinność wynurzoną, łączność siedlisk i trwałość zarządzania terenem. Dolomedes nie należy utożsamiać z topikiem. Oba są związane z wodą, lecz korzystają z niej w odmienny sposób. [80–82]
Caerostris darwini — jedwab nad rzeką
Rodzina: Araneidae. Region: Madagaskar. Gatunek zwrócił uwagę badaczy dużymi sieciami rozpiętymi nad wodą i właściwościami nici nośnych. W słynnej pracy z 2010 roku badano energię pochłanianą przez materiał do zerwania; jest to inna właściwość niż samo maksymalne naprężenie. [15]
Późniejsze doświadczenie, opublikowane w 2025 roku, wykazało, że wyjątkowe właściwości jedwabiu w badanych Caerostris nie są jednakowo rozwinięte u wszystkich osobników. Szczególnie wyróżniały się duże dorosłe samice. Portret gatunku powinien więc uwzględniać również płeć i stadium rozwoju producenta włókna. [85]
Maratus volans — zaloty jako sygnał
Karta gatunku w atlasie: Maratus volans
Rodzina: Salticidae. Region: Australia. Maratus należy do skakunów znanych z kontrastowych ornamentów i widowiskowych zachowań godowych. Samo określenie „pawi pająk” nie oznacza jednego gatunku; nazwa naukowa jest konieczna, aby powiązać fotografię z konkretnym taksonem. M. volans jest jednym z takich gatunków katalogowanych przez WSC. [32]
W opisie zachowania trzeba rozdzielać cechę samca od cechy całego gatunku. Zdjęcie prezentującego ornament dorosłego samca nie pokazuje wyglądu samicy ani młodych osobników. Ten sam problem powraca w atlasach ptaków i motyli: najbardziej widowiskowy przedstawiciel bywa najmniej reprezentatywny dla pełnej zmienności populacji.
Heteropoda maxima — rozpiętość a wielkość ciała
Rodzina: Sparassidae. Region: Laos. Gatunek bywa przywoływany w zestawieniach rekordów dzięki rozpiętości nóg dochodzącej w opisach do około 30 cm. Taka liczba dotyczy wymiaru obejmującego odnóża; nie jest długością odwłoka ani całego ciała mierzonego bez nóg. [31, 38]
Rekordy należy więc dzielić przynajmniej na długość ciała, rozpiętość nóg i masę. Nie istnieje jedna obiektywna lista „największych pająków”, jeśli autorzy używają różnych kryteriów. Równie ważne jest odróżnienie maksymalnego opisanego rozmiaru od typowego rozmiaru dorosłego osobnika.
Gaius villosus — 43 lata obserwowanego życia
Rodzina: Idiopidae. Region: południowo-zachodnia Australia. W pracy z 2018 roku opisano samicę, której wiek oceniono na 43 lata w ramach wieloletniego monitoringu terenowego. Badanie rozpoczęła Barbara York Main w 1974 roku w North Bungulla Reserve w pobliżu Tammin. [79]
To udokumentowana historia konkretnego osobnika, a nie przewidywana długość życia każdego przedstawiciela gatunku. Znaczenie tego przypadku polega również na długości samego badania. Krótkie projekty łatwo pomijają procesy, które u osiadłych, długowiecznych bezkręgowców rozgrywają się przez dziesięciolecia. Ochrona małego fragmentu podłoża może w takim przypadku oznaczać ochronę zwierzęcia, które korzysta z niego przez znaczną część ludzkiego pokolenia.
Katipō — Latrodectus katipo
Rodzina: Theridiidae. Region: Nowa Zelandia. Katipō jest związany z nadmorskimi siedliskami wydmowymi. Materiały Te Papa podkreślają jego lokalny kontekst przyrodniczy i kulturowy. Czarna forma dawniej wyodrębniana pod inną nazwą jest obecnie ujmowana w obrębie L. katipo. [25]
Gatunek ten pokazuje, dlaczego profil krajowy powinien obejmować więcej niż jad. Wąskie wymagania siedliskowe i zmiany wybrzeża mogą być dla trwałości populacji ważniejsze niż rozpoznawalność w mediach. Słowo „wdowa” określa pokrewieństwo, ale nie zastępuje opisu lokalnej ekologii i rzeczywistej częstości kontaktów z ludźmi.
Portia africana — wybór trasy
Rodzina: Salticidae. Kontekst: eksperymenty nad polowaniem na inne pająki. W doświadczeniu z 2019 roku porównywano zachowanie wobec dostępnej drogi bezpośredniej i drogi okrężnej. Przynęta była widoczna na początku próby, a później znikała z pola widzenia. Wyniki wskazały, że wybór trasy zależał od sytuacji oraz rodzaju widzianego obiektu. [67]
Nie trzeba przypisywać zwierzęciu ludzkiego sposobu myślenia, aby docenić wagę takiego wyniku. Eksperyment pokazuje elastyczność zachowania w określonym zadaniu. Odpowiedź na pytanie o mechanizm tej elastyczności wymaga kolejnych prób, które rozdzielają wpływ pamięci, orientacji przestrzennej i prostszych reguł reakcji.
Evarcha culicivora — specjalizacja w wyborze ofiary
Rodzina: Salticidae. Region: wschodnia Afryka. W doświadczeniach gatunek preferował samice komarów, które wcześniej pobrały krew. Potrafił rozróżniać preferowaną zdobycz na podstawie bodźców wzrokowych i zapachowych. Pająk uzyskuje w ten sposób składniki krwi pośrednio, zjadając owada; sam nie nakłuwa skóry kręgowców w celu krwiopijnego żerowania. [87]
To szczególnie dobry przykład różnicy między ciekawym mechanizmem biologicznym a gotową metodą zwalczania chorób. Wybór ofiary w laboratorium nie określa jeszcze wpływu drapieżnika na liczebność komarów ani na transmisję patogenów w terenie. Do takich wniosków potrzebny jest odrębny zestaw badań populacyjnych i epidemiologicznych.
Hortophora biapicata — pająk w eksperymencie ze światłem
Rodzina: Araneidae. Region: Australia. W publikacji z 2018 roku gatunek występuje pod nazwą Eriophora biapicata, obecnie jest klasyfikowany jako Hortophora biapicata. Zmiana rodzaju nie oznacza, że porównujemy dwa różne organizmy. [75, 83]
W badaniu kontrolowano oświetlenie podczas rozwoju młodych. Osobniki doświadczające nocnego światła dojrzewały wcześniej i przy mniejszych rozmiarach. Ten przypadek nadaje się do nauki czytania eksperymentów: trzeba znać warunki ekspozycji i sposób liczenia wyniku, zanim porówna się go z obserwacją pająka przy ulicznej lampie. Wykres w rozdziale 27 przedstawia średnie wieku dojrzałości z rozdzieleniem płci.
23 Zmysły, uwaga i zachowanie: co naprawdę pokazują doświadczenia
Osiem oczu nie daje ośmiu jednakowych obrazów
Badania skakunów pokazują, że różne pary oczu mogą pełnić odmienne funkcje. W doświadczeniu Bruce i współautorów śledzono kierunek patrzenia oczu głównych, podczas gdy bodziec rozpraszający pojawiał się w polu widzenia oczu przednio-bocznych. To, czy pająk przekierowywał uwagę, zależało od właściwości oglądanych obiektów. Nie był to zatem wyłącznie sztywny odruch wywoływany każdym ruchem. [64]
Warto zwrócić uwagę na samą konstrukcję doświadczenia. Zamiast oceniać „uważność” zwierzęcia na podstawie jego podobieństwa do ludzkiej twarzy, badacze mierzyli położenie struktur oka. Oddzielenie źródeł bodźców pozwala sprawdzić, która część układu sensorycznego odpowiada za reakcję. To przykład, jak precyzyjne pytanie prowadzi do mocniejszego wniosku niż ogólne przypisywanie pająkowi inteligencji.
Dźwięk, drganie podłoża i drganie sieci
W potocznym opisie wszystkie te bodźce bywają określane jako „słyszenie”. Fizycznie są jednak przenoszone różnymi drogami. Ruch owada po nici wprawia w drgania konstrukcję łowną. Fala dźwiękowa w powietrzu może oddziaływać na wyspecjalizowane struktury mechanorecepcyjne albo na samą sieć. Sposób odbioru sygnału należy więc opisać, zamiast zakładać obecność ucha podobnego do naszego.
W badaniach pająków zarzucających sieć wykazano reakcje na dźwięki związane z wykrywaniem zdobyczy w powietrzu. Reakcja łowiecka nie występowała jednak identycznie dla wszystkich badanych częstotliwości. [65] Osobne doświadczenia z pająkiem budującym sieć kolistą pokazały, że pajęczyna może działać jako rozległy odbiornik ruchu powietrza. Dla takiego zwierzęcia granica między „ciałem” a „narzędziem zmysłu” staje się funkcjonalnie mniej oczywista. [66]
Co wolno powiedzieć o śnie pająków
U młodych Evarcha arcuata, których oskórek jest jeszcze dostatecznie przezroczysty, zaobserwowano okresowe ruchy siatkówek podczas nocnego spoczynku. Towarzyszyły im charakterystyczne ruchy kończyn. Autorzy opisali stan przypominający sen REM, a nie bezpośredni dowód marzeń sennych. [68]
Rozróżnienie jest zasadnicze. Nagranie pokazuje zachowanie i ruch struktur anatomicznych. Treść ewentualnego doświadczenia wewnętrznego pozostaje niedostępna. Z tego samego powodu nieruchomy pająk nie jest automatycznie śpiącym pająkiem: do pełnego rozpoznania stanu spoczynku potrzebne są odpowiednie kryteria fizjologiczne i behawioralne. To obszar, w którym ostrożny język wzmacnia przekaz, ponieważ wyraźnie wskazuje granicę między obserwacją a interpretacją.
Nie ma jednej skali „inteligencji pająków”
Wybór objazdu, śledzenie poruszającego się obiektu i rozpoznawanie zapachu ofiary są odmiennymi zadaniami. Sukces w jednym nie dowodzi równie dobrego wyniku w pozostałych. Sensowniejsze od tworzenia rankingu rodzin jest pytanie, do jakiego problemu ekologicznego dopasowany jest dany mechanizm. Drapieżnik wchodzący na cudzą sieć mierzy się z innym układem ryzyka niż pająk czekający w norze.
Praktyczną zasadą czytania publikacji jest sprawdzenie trzech rzeczy: co dokładnie zmieniano w doświadczeniu, co mierzono oraz jakie alternatywne wyjaśnienie wykluczono. Jeśli badacz porównuje przynętę imitującą ofiarę z fragmentem liścia, kontroluje inne pytanie niż wtedy, gdy porównuje dwa jednakowe obiekty w różnych miejscach. Ten sam efekt końcowy — pająk wybiera jedną trasę — może mieć różną siłę dowodową.
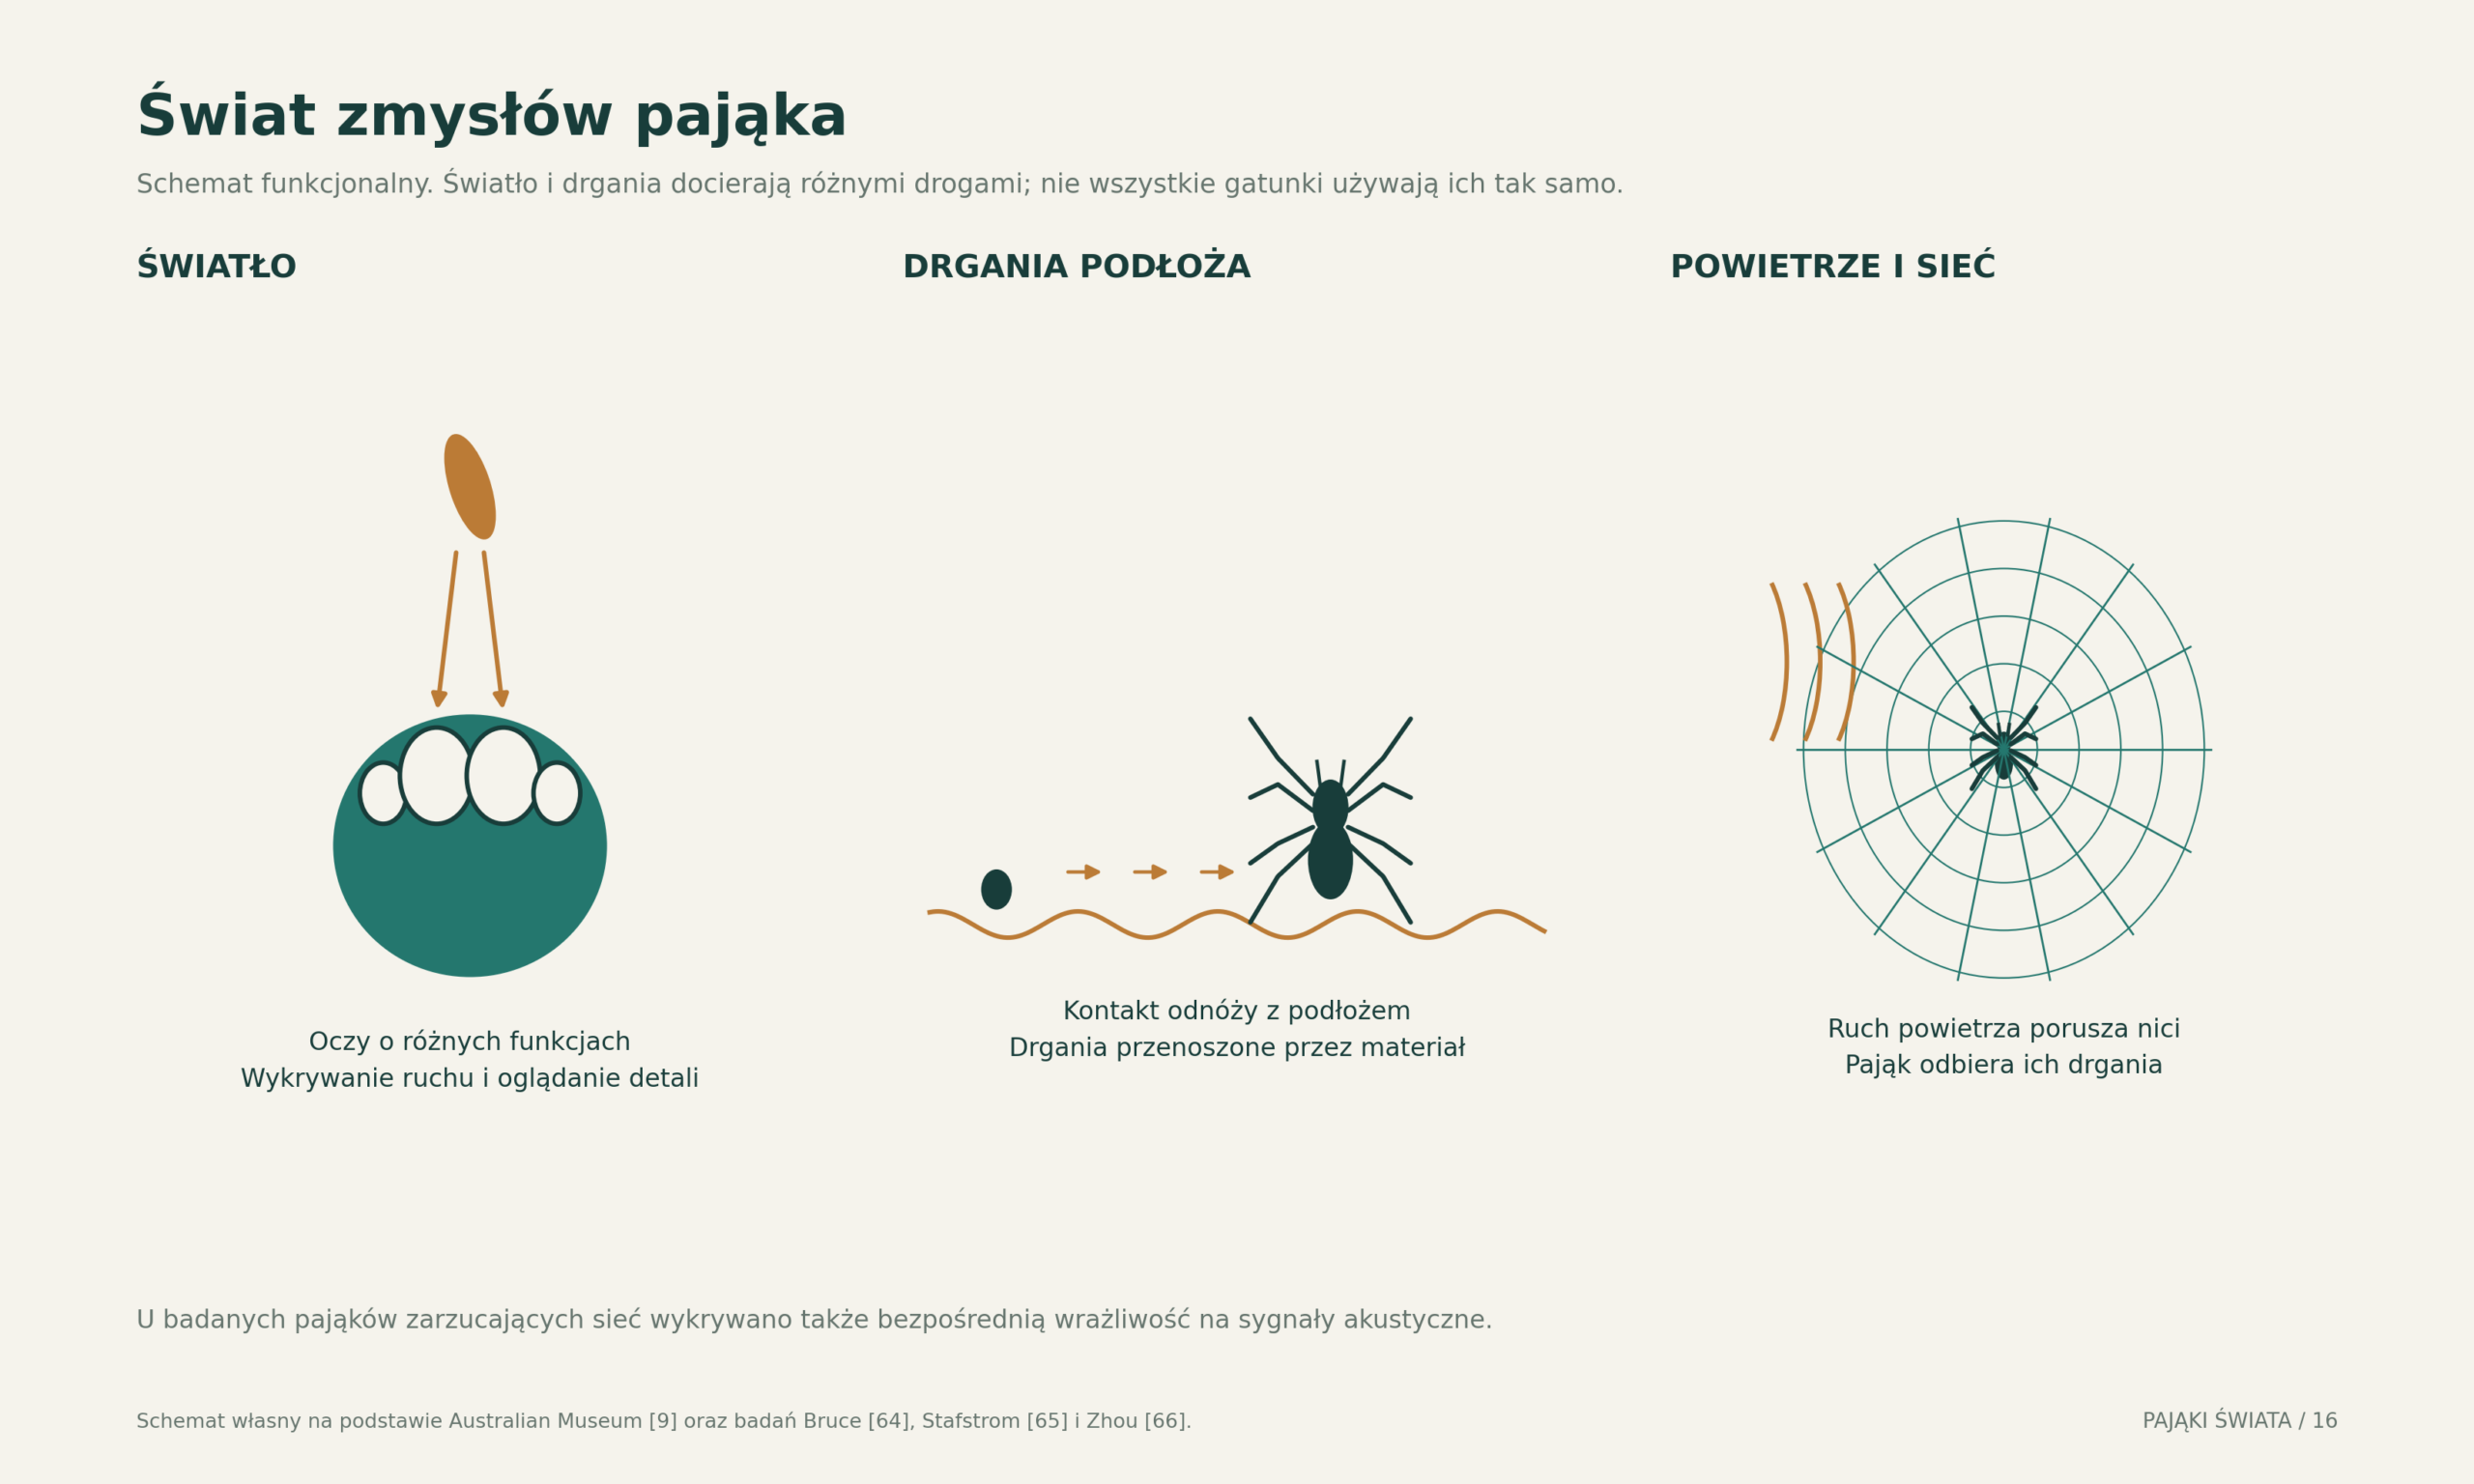
24 Polowanie jako zestaw rozwiązań ewolucyjnych
Podstęp chemiczny Mastophora
U części pająków z rodzaju Mastophora dorosłe samice używają nici zakończonej kroplą lepkiej substancji. To tzw. bolas. W badaniach M. cornigera zidentyfikowano w emitowanych substancjach składniki feromonów płciowych motyli będących ofiarami pająka. Drapieżnik wykorzystuje więc sygnał, który u odbiorcy normalnie pomaga odnaleźć partnerkę. [70]
Takiej strategii nie należy bezrefleksyjnie przypisywać wszystkim stadiom życia. Obserwacje M. hutchinsoni w Kentucky wykazały, że świeżo wyklute pająki nie używały bolas, lecz chwytały drobne stawonogi przy brzegach liści. W badanej populacji duże młode samice i samice dorosłe polowały inaczej niż najmniejsze osobniki. [69] Nazwa gatunku pozostaje ta sama, ale jego nisza pokarmowa może zmieniać się podczas rozwoju.
Sieć, która magazynuje energię
Hyptiotes cavatus napina trójkątną sieć, wykonując serię ruchów odnóży. Zgromadzona energia sprężysta zostaje szybko uwolniona po kontakcie owada z konstrukcją. Ruch sieci pomaga owinąć zdobycz dodatkowymi nićmi. Badanie z 2019 roku analizowało to zjawisko jako zewnętrzne wzmacnianie mocy: energia gromadzi się stopniowo, a jest oddawana w krótkim czasie. [86]
Kluczowa jest różnica między energią a mocą. Mechanizm nie wytwarza dodatkowej energii z niczego. Zmienia czas jej uwalniania. Analogia do naciągania łuku jest użyteczna właśnie na tym poziomie; nie oznacza, że pająk konstruuje narzędzie według świadomego projektu. Opis mechaniczny i interpretacja poznawcza odpowiadają na dwa różne pytania.
Pościg, zasadzka i przechwytywanie
Porównując strategie, najlepiej śledzić kolejne etapy: wykrycie potencjalnej ofiary, zmniejszenie odległości, pierwszy kontakt, unieruchomienie i pobranie pokarmu. Sieć może zastąpić część pościgu, ale nie eliminuje konieczności rozpoznania zdobyczy i reakcji na jej ruch. Pająk aktywnie polujący także może używać jedwabiu, tylko nie jako rozległej powierzchni przechwytującej.
Macierz strategii na rycinie wskazuje przykłady, a nie niezmienne właściwości całych rodzin. Skakun z rodzaju Portia specjalizujący się w atakowaniu innych pająków nie jest po prostu mniejszą wersją krzyżaka. Z kolei pająk wykorzystujący sygnał chemiczny i lepką kroplę łączy wabienie z mechaniką chwytania. Uporządkowanie według etapów łowów wyjaśnia różnorodność lepiej niż prosty podział na zwierzęta „z pajęczyną” i „bez pajęczyny”.
Dieta nie jest listą wszystkich możliwych ofiar
Zdjęcie pająka z nietypową zdobyczą potwierdza pojedyncze zdarzenie. Nie ustala częstości tego pokarmu ani jego udziału w bilansie energetycznym. Aby opisać dietę populacji, potrzebna jest seria obserwacji z rozpoznanym wysiłkiem badawczym. Duże, efektowne ofiary są chętniej fotografowane niż drobne muchówki, co dodatkowo zniekształca obraz internetowych galerii.
Należy też oddzielać preferencję od dostępności. Pająk może często zjadać określony owad dlatego, że ten dominuje w otoczeniu, a nie dlatego, że jest aktywnie wybierany. Doświadczenia z Evarcha culicivora są wartościowe właśnie dlatego, że porównywano różne kategorie zdobyczy w kontrolowanych warunkach. [87] Ocena naturalnej diety wymaga następnie sprawdzenia, jak takie wybory działają w rzeczywistym środowisku.
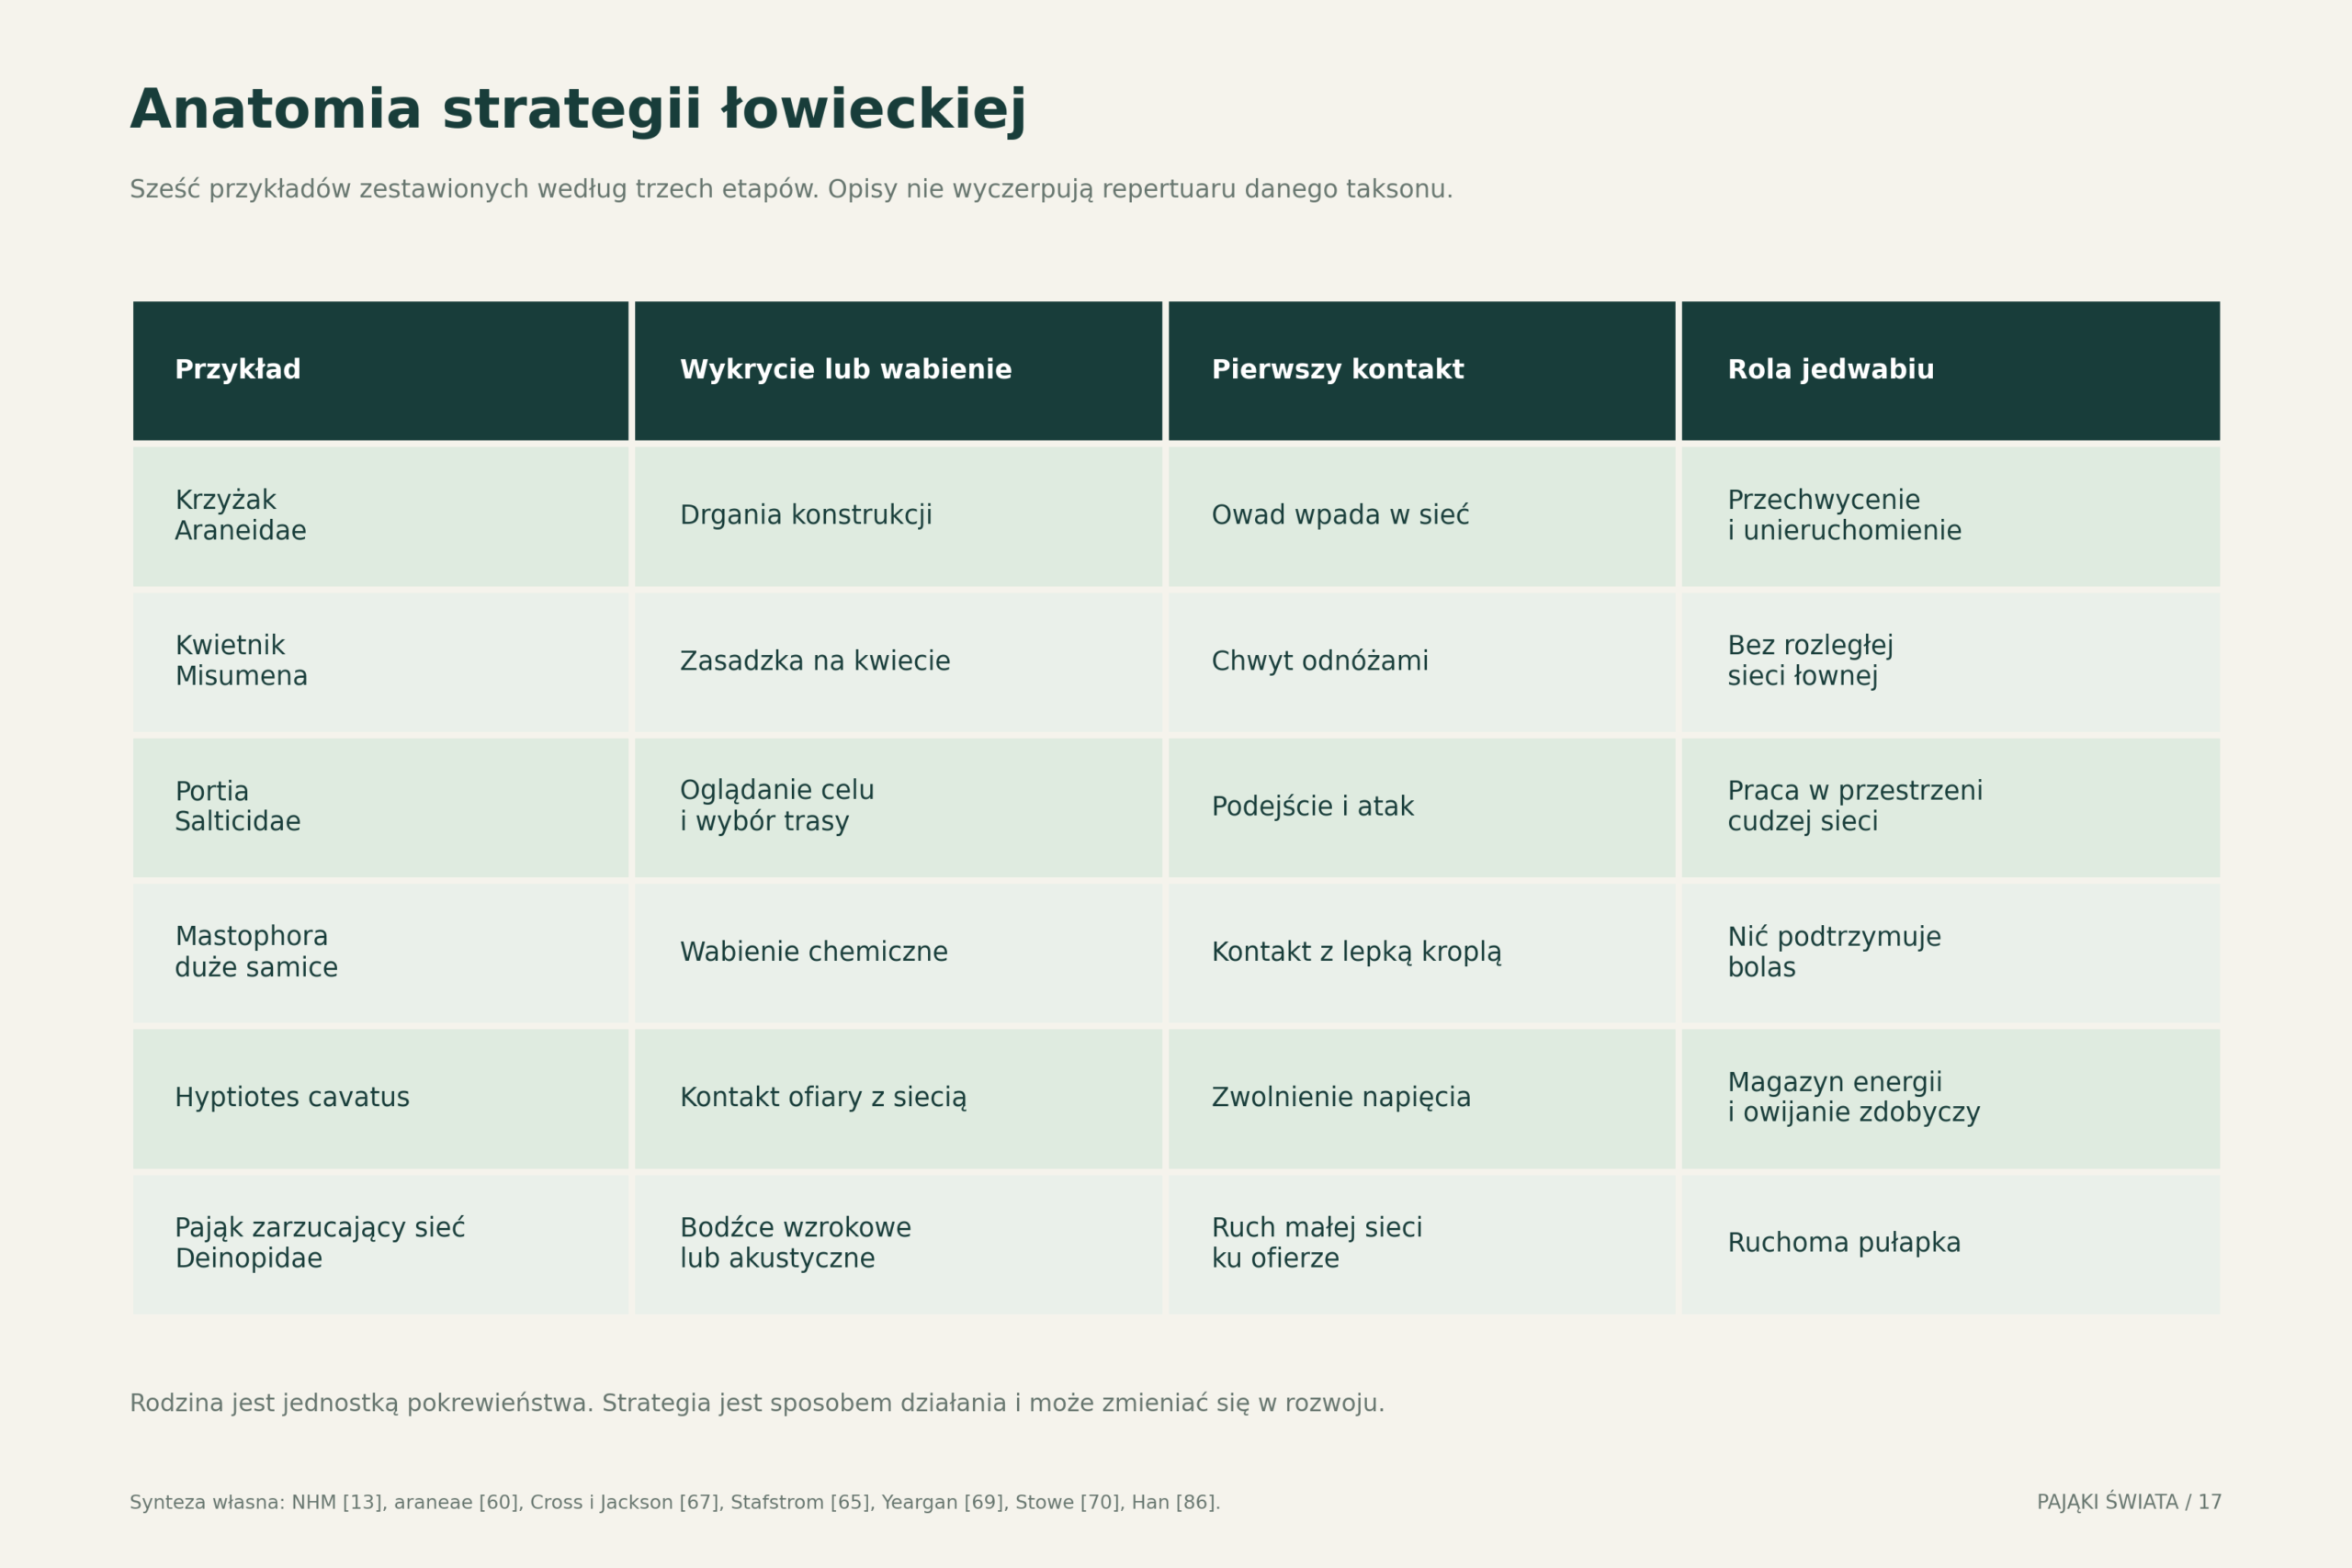
25 Bioinżynieria pająków: materiał, konstrukcja i środowisko
Jak czytać badanie włókna
Właściwości mechaniczne jedwabiu zależą od tego, co mierzymy. Sztywność opisuje opór przeciw odkształceniu. Wytrzymałość na rozciąganie dotyczy naprężenia, przy którym materiał ulega zniszczeniu. Rozciągliwość mówi, jak bardzo włókno może się wydłużyć. Energia pochłaniana do zerwania zależy od przebiegu całego procesu obciążania, a nie od jednej wartości maksymalnej.
Dlatego porównanie „mocniejszy od stali” jest bezwartościowe bez definicji właściwości, sposobu odniesienia do masy lub przekroju oraz warunków doświadczenia. Duża rozciągliwość może pomagać pochłaniać energię uderzenia, lecz konstrukcja musi też zachować kształt i nie dopuścić, aby zdobycz uwolniła się przed reakcją drapieżnika. O użyteczności materiału decyduje jego współpraca z geometrią sieci.
Ten sam gatunek, różny jedwab
W pracy Gregoriča i współautorów porównano nici nośne dwóch gatunków Caerostris w różnych stadiach rozwoju i u obu płci. Mediany energii pochłanianej do zerwania w grupach dorosłych samic wynosiły 284 MJ/m³ dla C. darwini i 315 MJ/m³ dla C. kuntneri. Pozostałe badane grupy miały niższe mediany. Rycina zachowuje także podane w tabeli minima, maksima i liczebności prób. [85]
To zestawienie nie powinno być łączone w jedną serię czasową z wynikami z 2010 roku. Inna próbka, zestaw osobników i procedura analityczna mogą prowadzić do innych wartości. Wykres nie przedstawia „pogarszania się” ani „ulepszania” jedwabiu na Madagaskarze w kolejnych latach. Pokazuje zróżnicowanie wewnątrz dwóch gatunków w jednym konkretnym doświadczeniu.
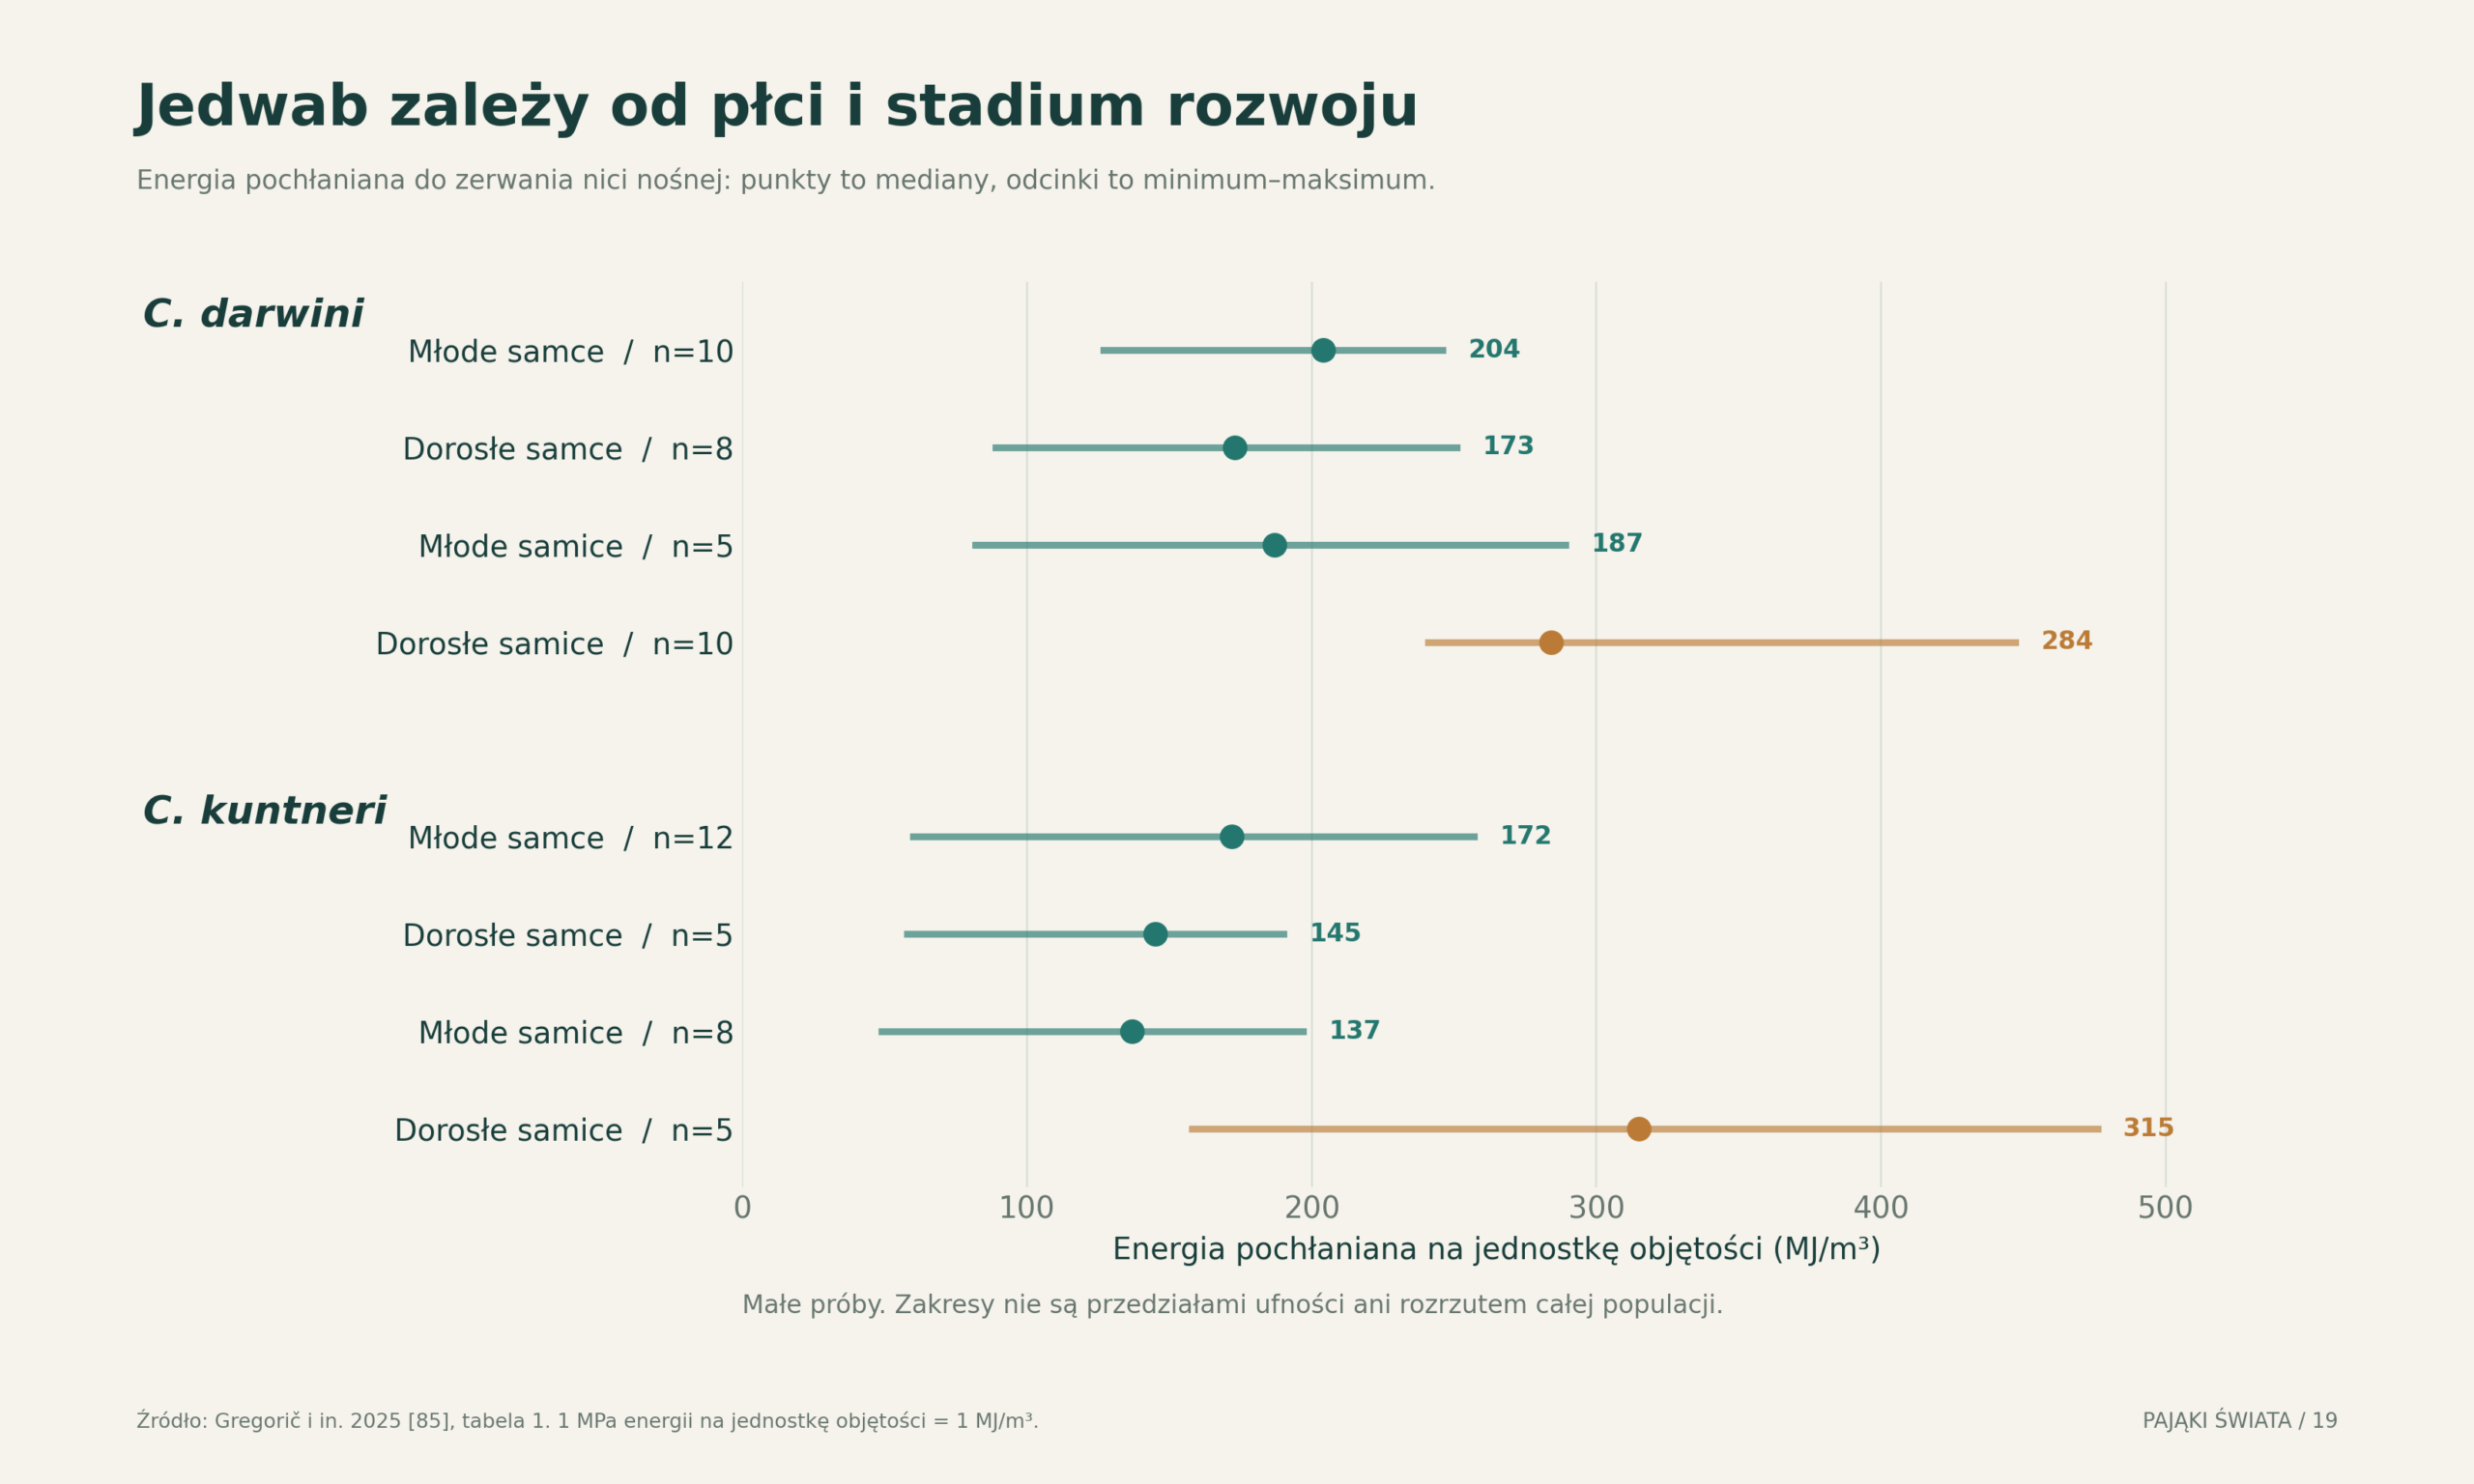
Dzwon topika jako fizyczne skrzele
Jedwab może pomagać rozwiązać problem oddychania pod wodą. Topik transportuje powietrze do konstrukcji przymocowanej do roślinności. Gdy tlen jest zużywany, jego ciśnienie cząstkowe wewnątrz dzwonu spada i tlen rozpuszczony w wodzie może dyfundować do pęcherza gazowego. W badaniach mierzono warunki takiej wymiany oraz zapotrzebowanie metaboliczne zwierzęcia. [16]
Dzwon nie jest jednak zbiornikiem o niezmiennej objętości. Skład gazu zmienia się, a utrata azotu może przyczyniać się do jego kurczenia. Pająk okresowo uzupełnia zapas z powierzchni. Zależność od otaczającej wody sprawia, że „życie pod wodą” nie oznacza uniezależnienia od jej parametrów. Schemat rozdziela transport powietrza przez zwierzę od dyfuzji gazów; bez tego łatwo błędnie wyobrazić sobie, że tlen powstaje wewnątrz jedwabnej konstrukcji.
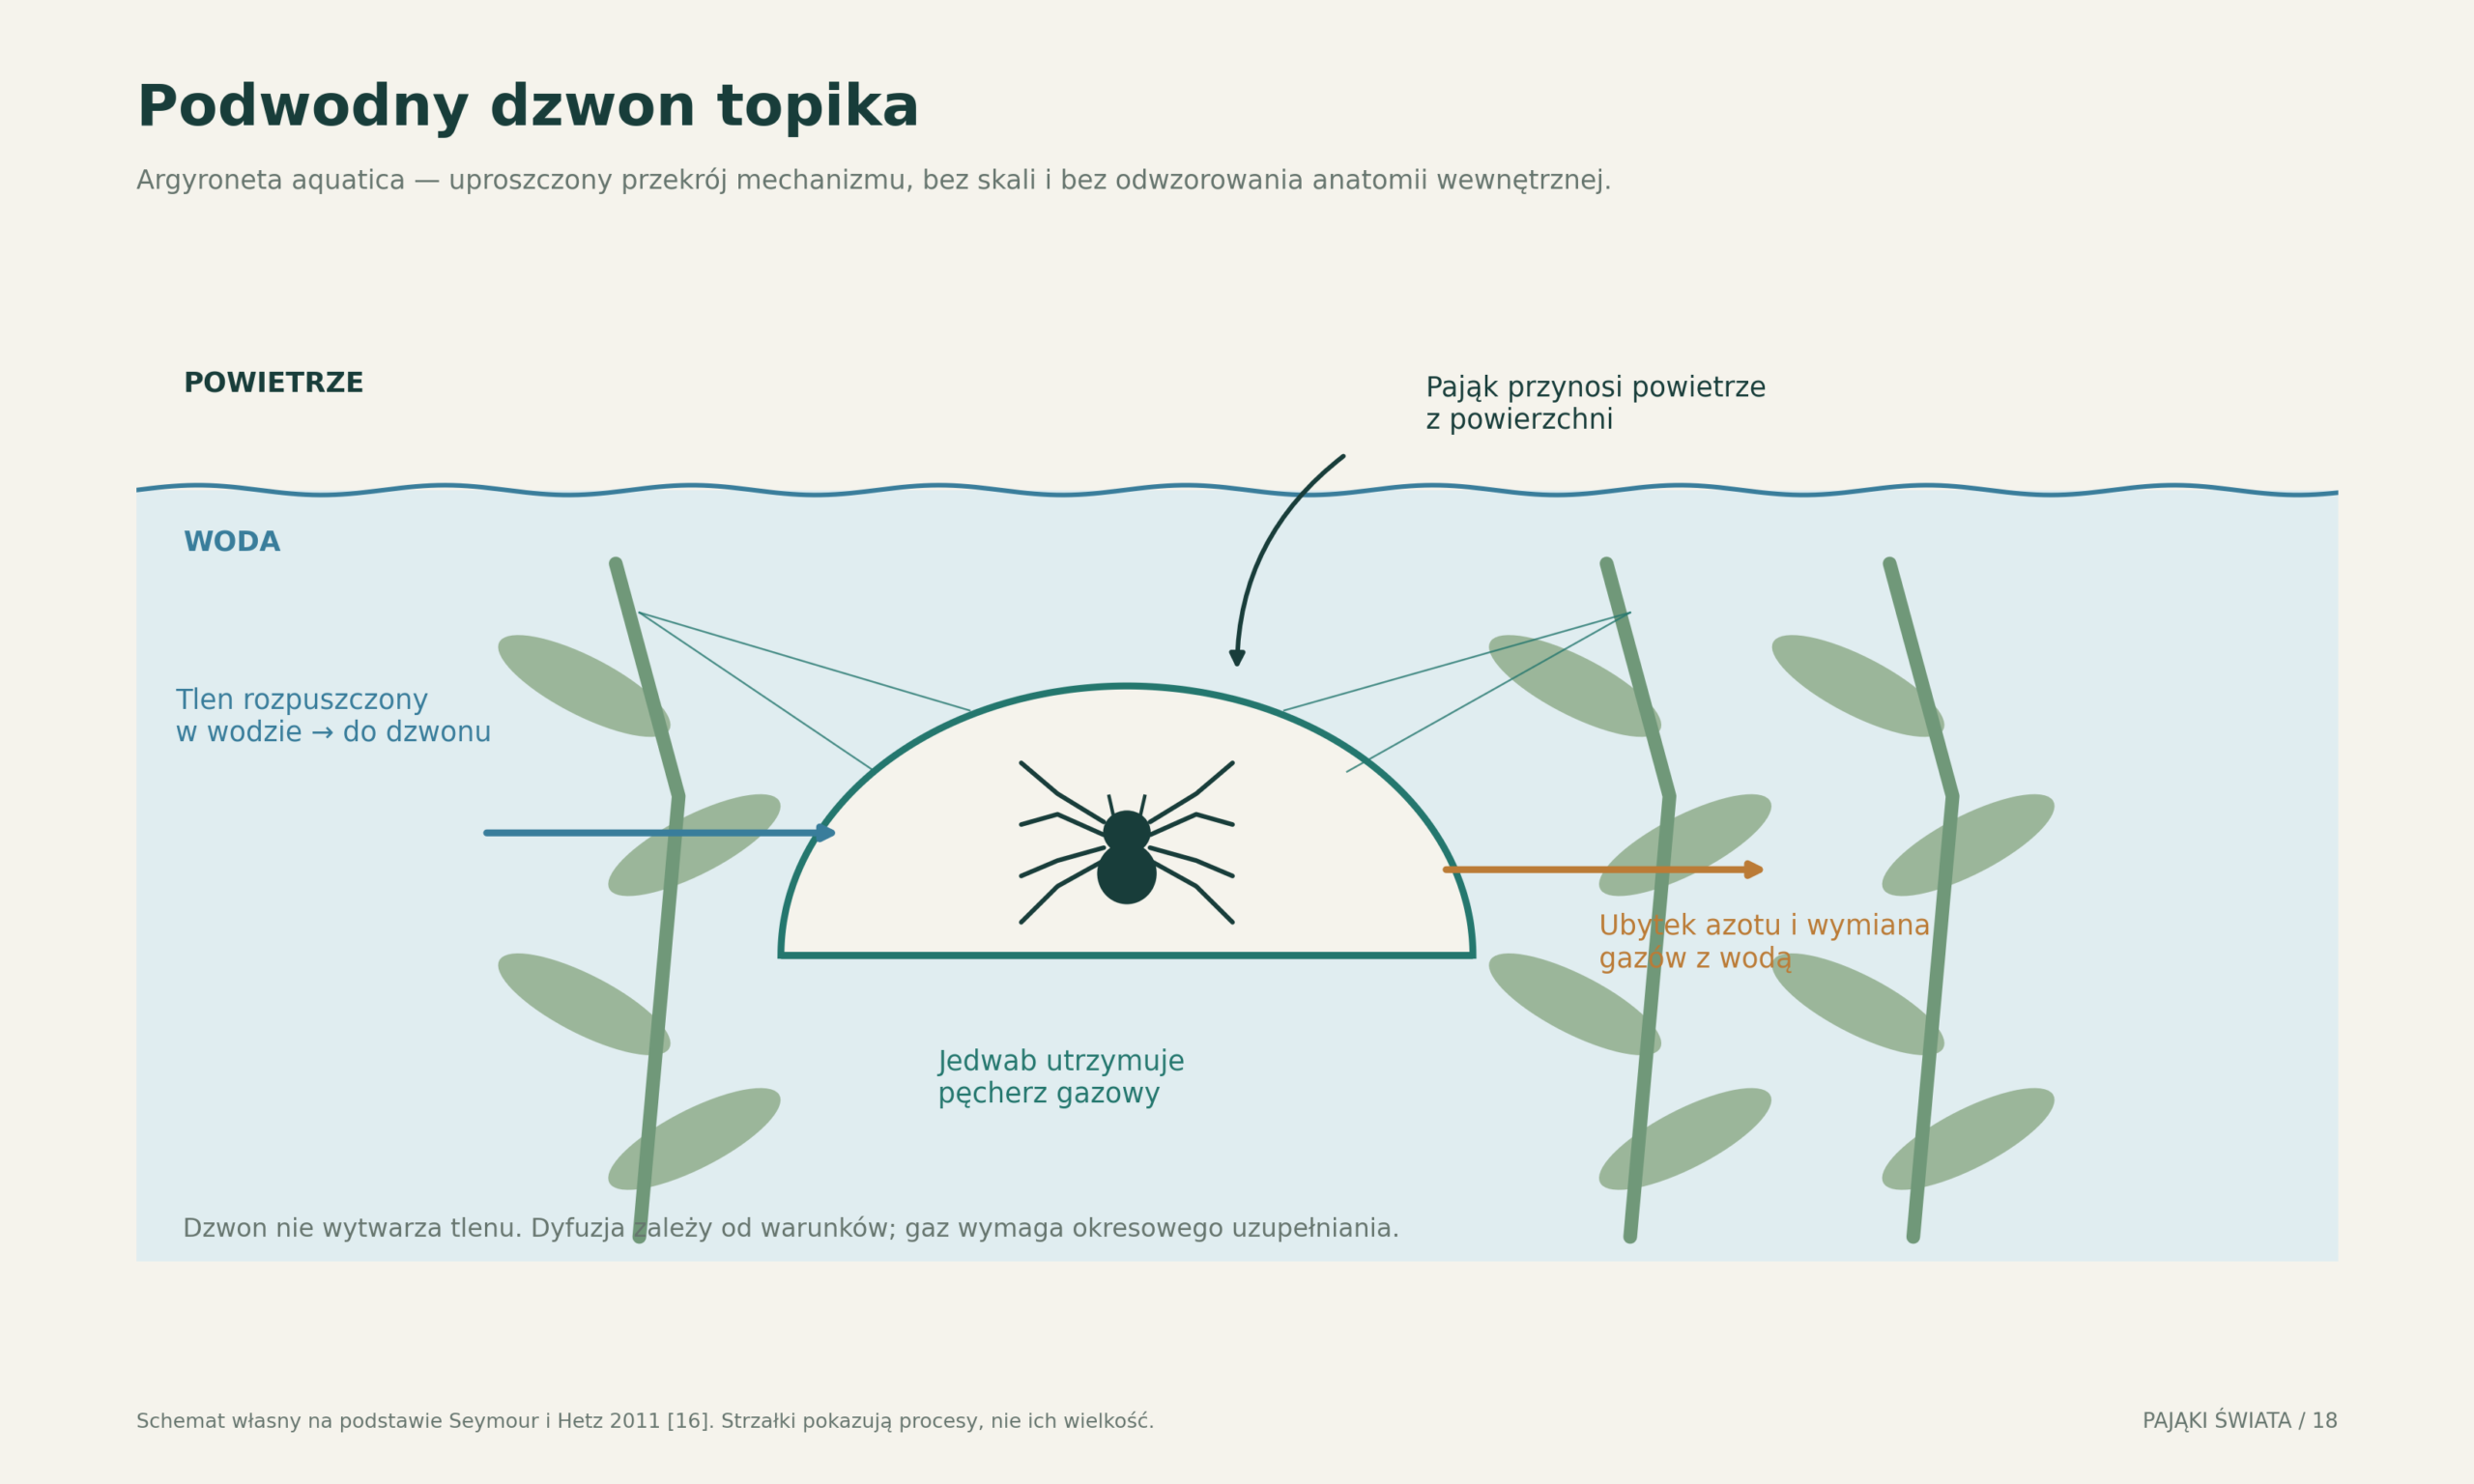
Od biologii do materiału wytwarzanego w laboratorium
W pracy Andersson i współautorów zaprezentowano rekombinowane białko jedwabiu i sposób przędzenia wykorzystujący środowisko wodne, siły ścinające oraz obniżenie pH. Znaczenie tego podejścia polega na odtwarzaniu wybranych warunków procesu biologicznego, a nie tylko na kopiowaniu składu gotowego włókna. [77]
Przeniesienie rozwiązania do zastosowań wymaga jednak osobnego zestawu kryteriów: powtarzalności właściwości, kosztu, skali produkcji, trwałości podczas przechowywania i zgodności z konkretnym przeznaczeniem. W przypadku biomateriału medycznego dochodzą badania bezpieczeństwa i działania w organizmie. Ciekawy wynik laboratoryjny jest początkiem oceny technologii; nie dowodzi, że każdy przyszły produkt przewyższy istniejące tworzywa.
26 Różne tempa życia i sposoby przemieszczania
Rozwój nie jest jedną uniwersalną sekwencją dat
Wspólny schemat jajo–młode stadia–dorosły osobnik ukrywa ogromną zmienność. Dla badania populacji trzeba ustalić, kiedy pojawiają się poszczególne stadia, ile czasu zajmuje rozwój i jaka część osobników przeżywa do rozrodu. Liczba linień nie daje automatycznie wieku w dniach. Podobnie pojawienie się dorosłych samców nie oznacza, że w tym samym momencie wszystkie samice osiągnęły dojrzałość.
Opis populacji Mastophora hutchinsoni z Kentucky pokazuje, jak fenologia porządkuje obserwacje terenowe: inaczej wyglądają łowy małych młodych, inaczej dużych samic. [69] Wydłużone życie samicy Gaius villosus pokazuje z kolei, dlaczego nie można przenosić krótkiego cyklu pająka ogrodowego na wszystkie Mygalomorphae. [79] Są to różne strategie rozkładania kosztów wzrostu i rozrodu w czasie.
Transport z jedwabiem i opadanie bez jedwabiu
Ballooning wykorzystuje wypuszczone nici, które oddziałują z otoczeniem fizycznym. Badania nad polem elektrycznym wykazały, że może ono wpływać na zachowania poprzedzające start i unoszenie pająków. [14] Nie oznacza to, że wiatr przestaje mieć znaczenie, ani że każdy lot ma ten sam mechanizm i zasięg.
Inne zjawisko opisano u nadrzewnych Selenops. Podczas prób w Panamie i Peru badano 59 osobników; około 93% kierowało opadanie ku pobliskim pniom i na nich lądowało. Zwierzęta sterowały położeniem ciała i odnóży, bez używania skrzydeł. [71] To kontrolowane opadanie, a nie dowód, że wszystkie pająki mogą aktywnie latać. Zestawienie obu mechanizmów pomaga zrozumieć, dlaczego podobny obraz — pająk w powietrzu — może mieć różne przyczyny.
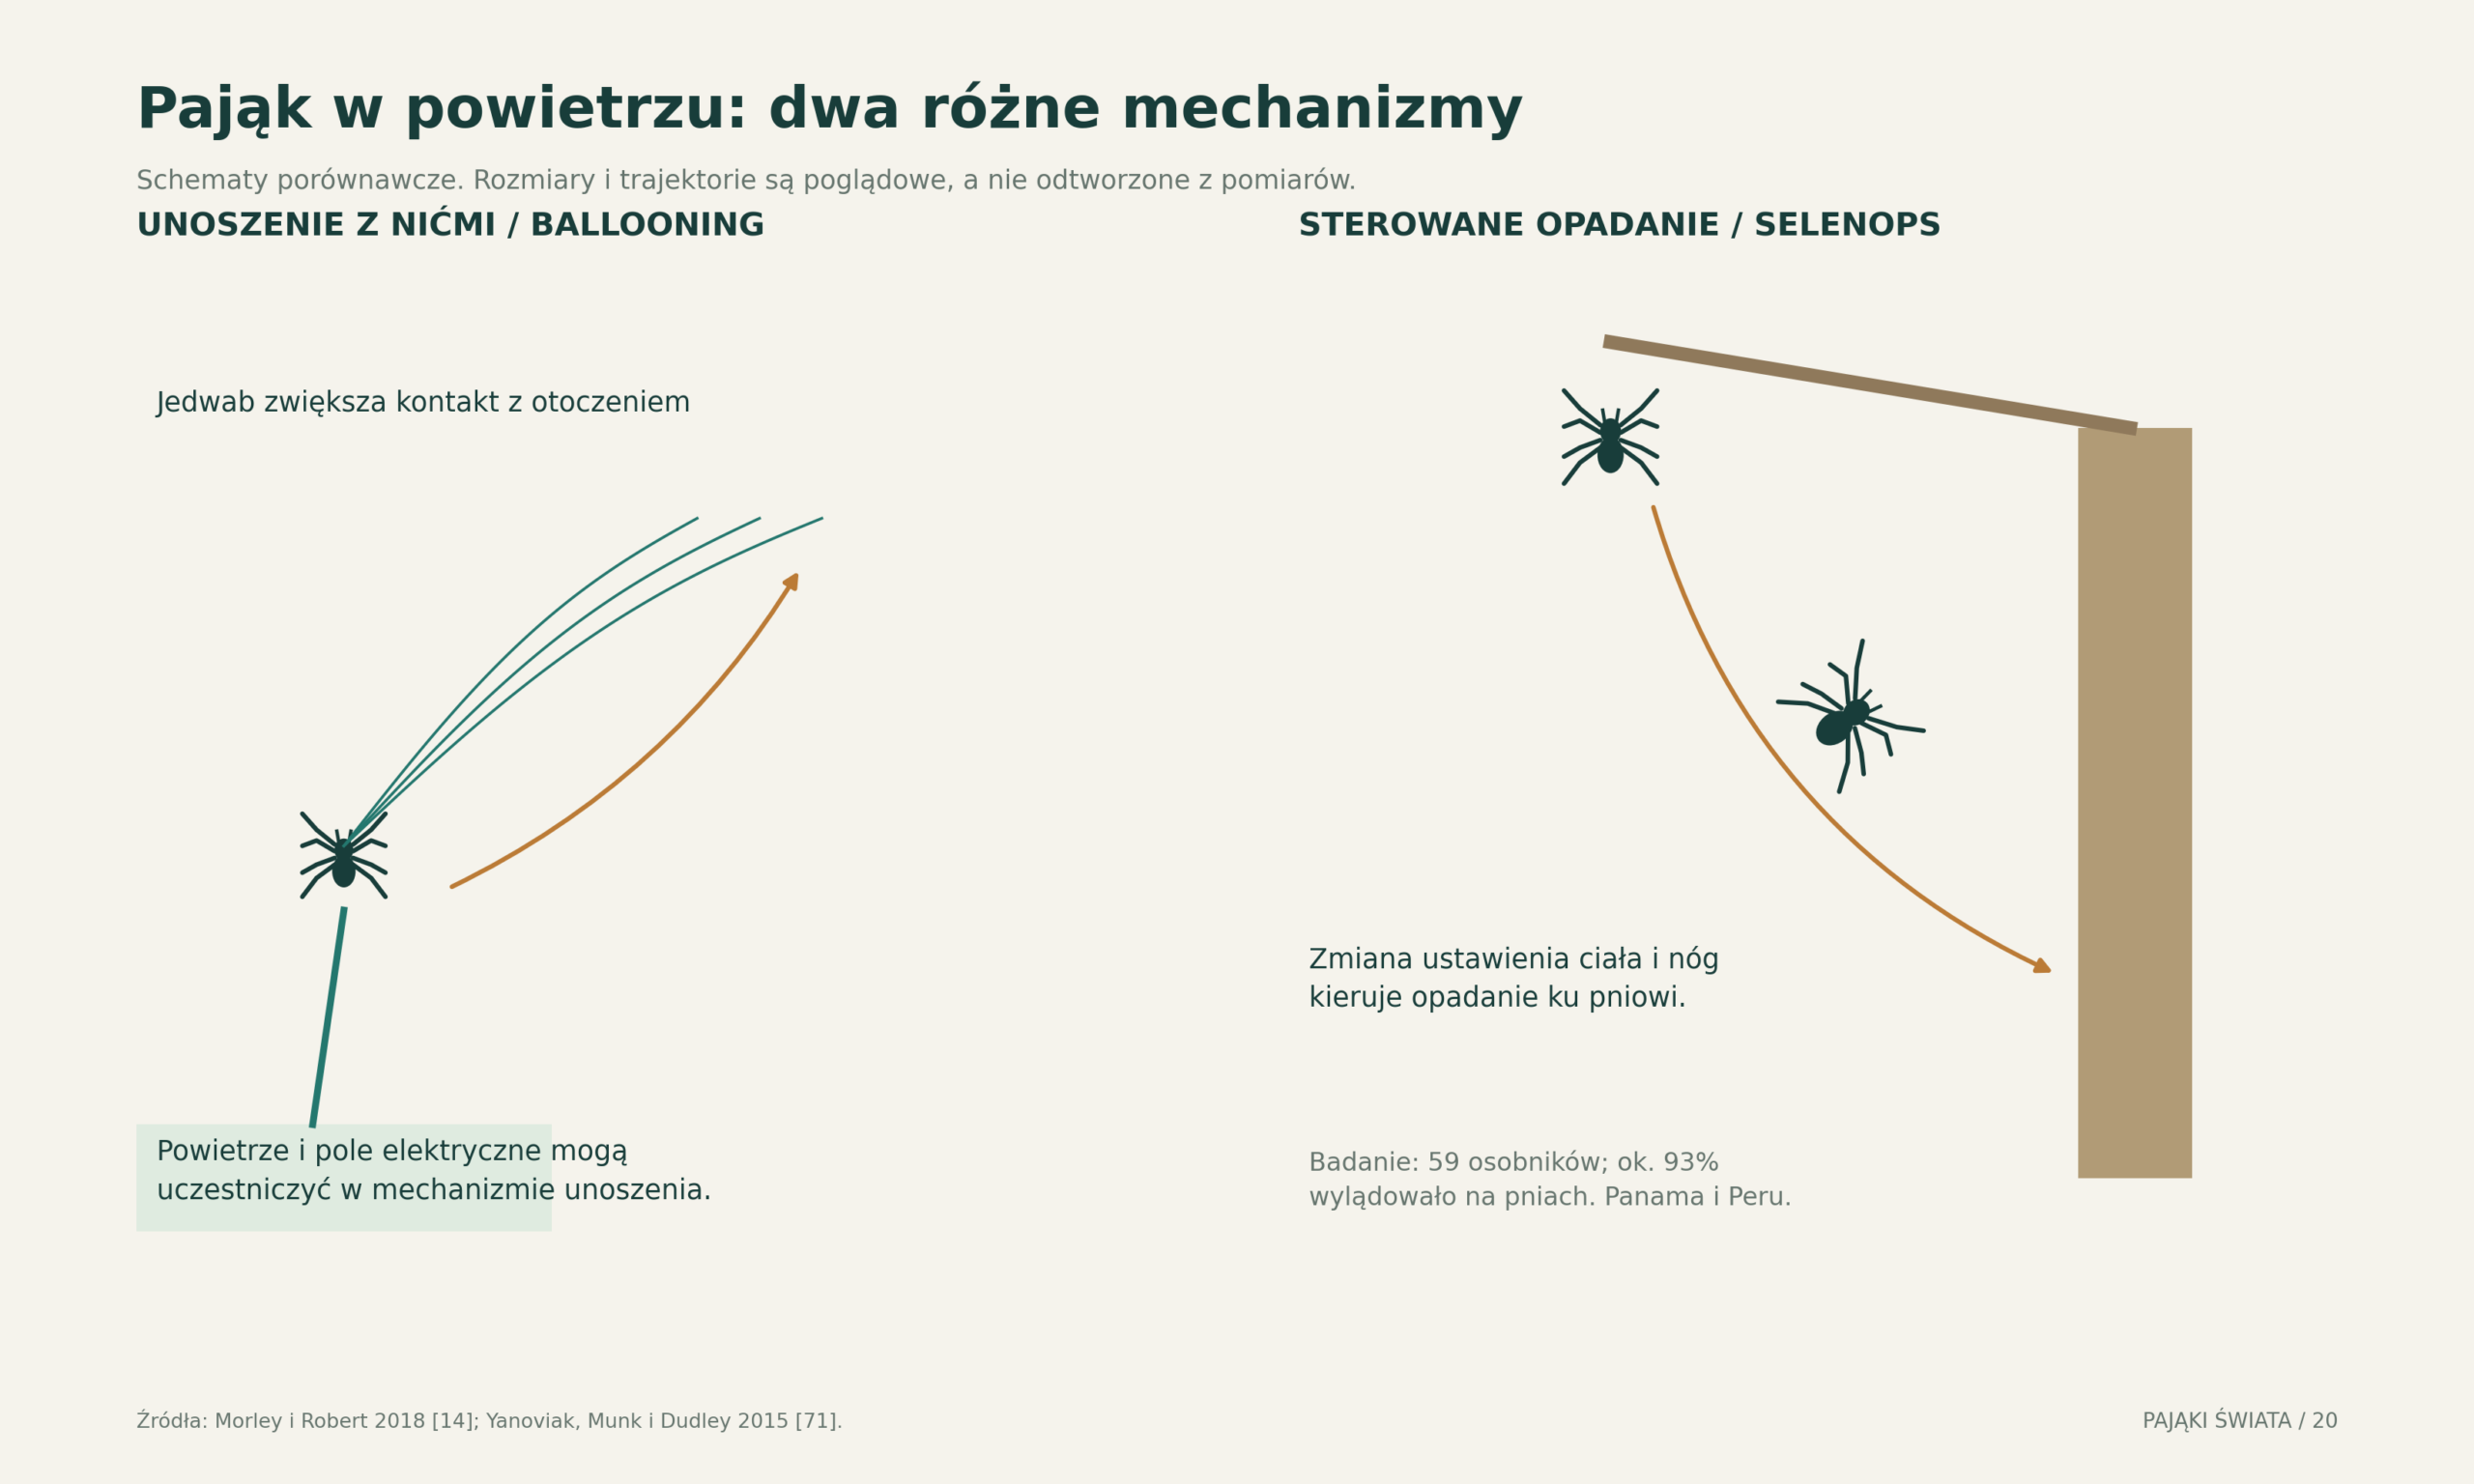
Wspólna sieć i wspólne decyzje
U społecznego Anelosimus eximius badano synchronizację ruchów podczas zbliżania się grupy do zdobyczy. Pająki przeplatają fazy ruchu i zatrzymania; interpretacja eksperymentów wiąże koordynację z odbieraniem drgań pochodzących od ofiary i innych członków grupy. Model zachowania pokazuje, jak uporządkowane działanie zbiorowe może wynikać z lokalnych reguł. [88]
Nie jest do tego konieczny osobnik „dowodzący” całą kolonią. Dla czytelnika to ważny przykład samoorganizacji. Jednocześnie wspólne polowanie nie oznacza, że każdy pająk korzysta identycznie z każdej zdobyczy. Pytania o podział korzyści, rozmnażanie i trwałość kolonii wymagają innych pomiarów niż film dokumentujący zsynchronizowany atak.
Opieka nad młodymi jako inwestycja
U pająków spotyka się noszenie kokonu, pilnowanie młodych i bardziej złożone formy dostarczania im pokarmu. Badanie Toxeus magnus wykazało karmienie potomstwa wydzieliną samicy i znaczenie opieki po wyjściu młodych z jaj. [40] Słowo „mleko” opisuje tutaj podobieństwo funkcjonalne; nie oznacza gruczołów mlekowych ani przynależności do ssaków.
Z punktu widzenia ekologii najważniejsze jest to, co ta inwestycja zmienia: przeżycie, tempo wzrostu i moment samodzielnego żerowania. Obecność matki i dostęp do wydzieliny mogą być rozdzielane w doświadczeniach, aby sprawdzić, który składnik opieki odpowiada za wynik. Takie podejście pozwala wyjść poza zachwyt nad niezwykłością zachowania i przejść do mierzalnego pytania o jego funkcję.
27 Klimat, urbanizacja i nocne światło
Rozszerzanie zasięgu tygrzyka
Historia Argiope bruennichi w Europie nie sprowadza się do przesuwania jednej linii na mapie. Krehenwinkel i Tautz połączyli współczesne próbki, okazy muzealne i doświadczenia dotyczące tolerancji temperatur. W rozszerzających zasięg populacjach wykryto zwiększoną różnorodność genetyczną związaną z mieszaniem dawniej odseparowanych linii. Wyniki wskazywały również na zróżnicowanie cech termicznych. [73]
W kolejnych badaniach porównywano populacje z południowej Francji i krajów bałtyckich w kontrolowanych warunkach. Taki układ pomaga oddzielić pochodzenie osobników od warunków, w których są hodowane. [74] Użycie słowa „ekspansja” jest tu uzasadnione przez połączenie linii dowodowych; pojedyncza mapa aktualnych obserwacji nie dostarczyłaby równoważnej informacji.
Miasto nie działa jednakowo na wszystkie gatunki
W badaniu przeprowadzonym w Sydney zebrano 222 dorosłe samice z 20 stanowisk i analizowano cechy ciała oraz otoczenia na kilku skalach. U badanego pająka większe rozmiary wiązały się z niektórymi wskaźnikami urbanizacji. W oryginalnej pracy użyto nazwy Nephila plumipes; aktualna kombinacja to Trichonephila plumipes. [72, 84]
Jest to wynik obserwacyjny dotyczący konkretnego gatunku. Nie uzasadnia hasła, że miasta są korzystne dla wszystkich pająków. Gatunek wykorzystujący miejskie struktury może odnosić lokalny sukces równocześnie z zanikiem wyspecjalizowanej fauny dawnego siedliska. Również korelacja z zabudową nie wskazuje automatycznie jednej przyczyny: temperatura, pokarm i struktura roślinności mogą zmieniać się jednocześnie.
Eksperyment ze sztucznym światłem
Willmott i współautorzy hodowali młode Hortophora biapicata przy 12-godzinnym dniu i nocy, która była ciemna albo oświetlona na poziomie około 20 luksów. Badano potomstwo 18 samic. W grupie z nocnym światłem średni wiek osiągnięcia dojrzałości był niższy u obu płci. Dla samic wynosił około 272 dni wobec 335 dni w ciemności; dla samców około 262 wobec 300 dni. [75]
Rycina przedstawia średnie z tabeli publikacji. Nie pokazuje całego rozrzutu indywidualnych wyników, a liczby nie są naturalną długością rozwoju wszystkich populacji tego gatunku. Warunki laboratoryjne stanowią część definicji wyniku. Przyspieszenie dojrzewania nie musi być korzyścią: w tej samej pracy towarzyszyły mu mniejsze rozmiary i zmniejszona liczba jaj u samic. [75]
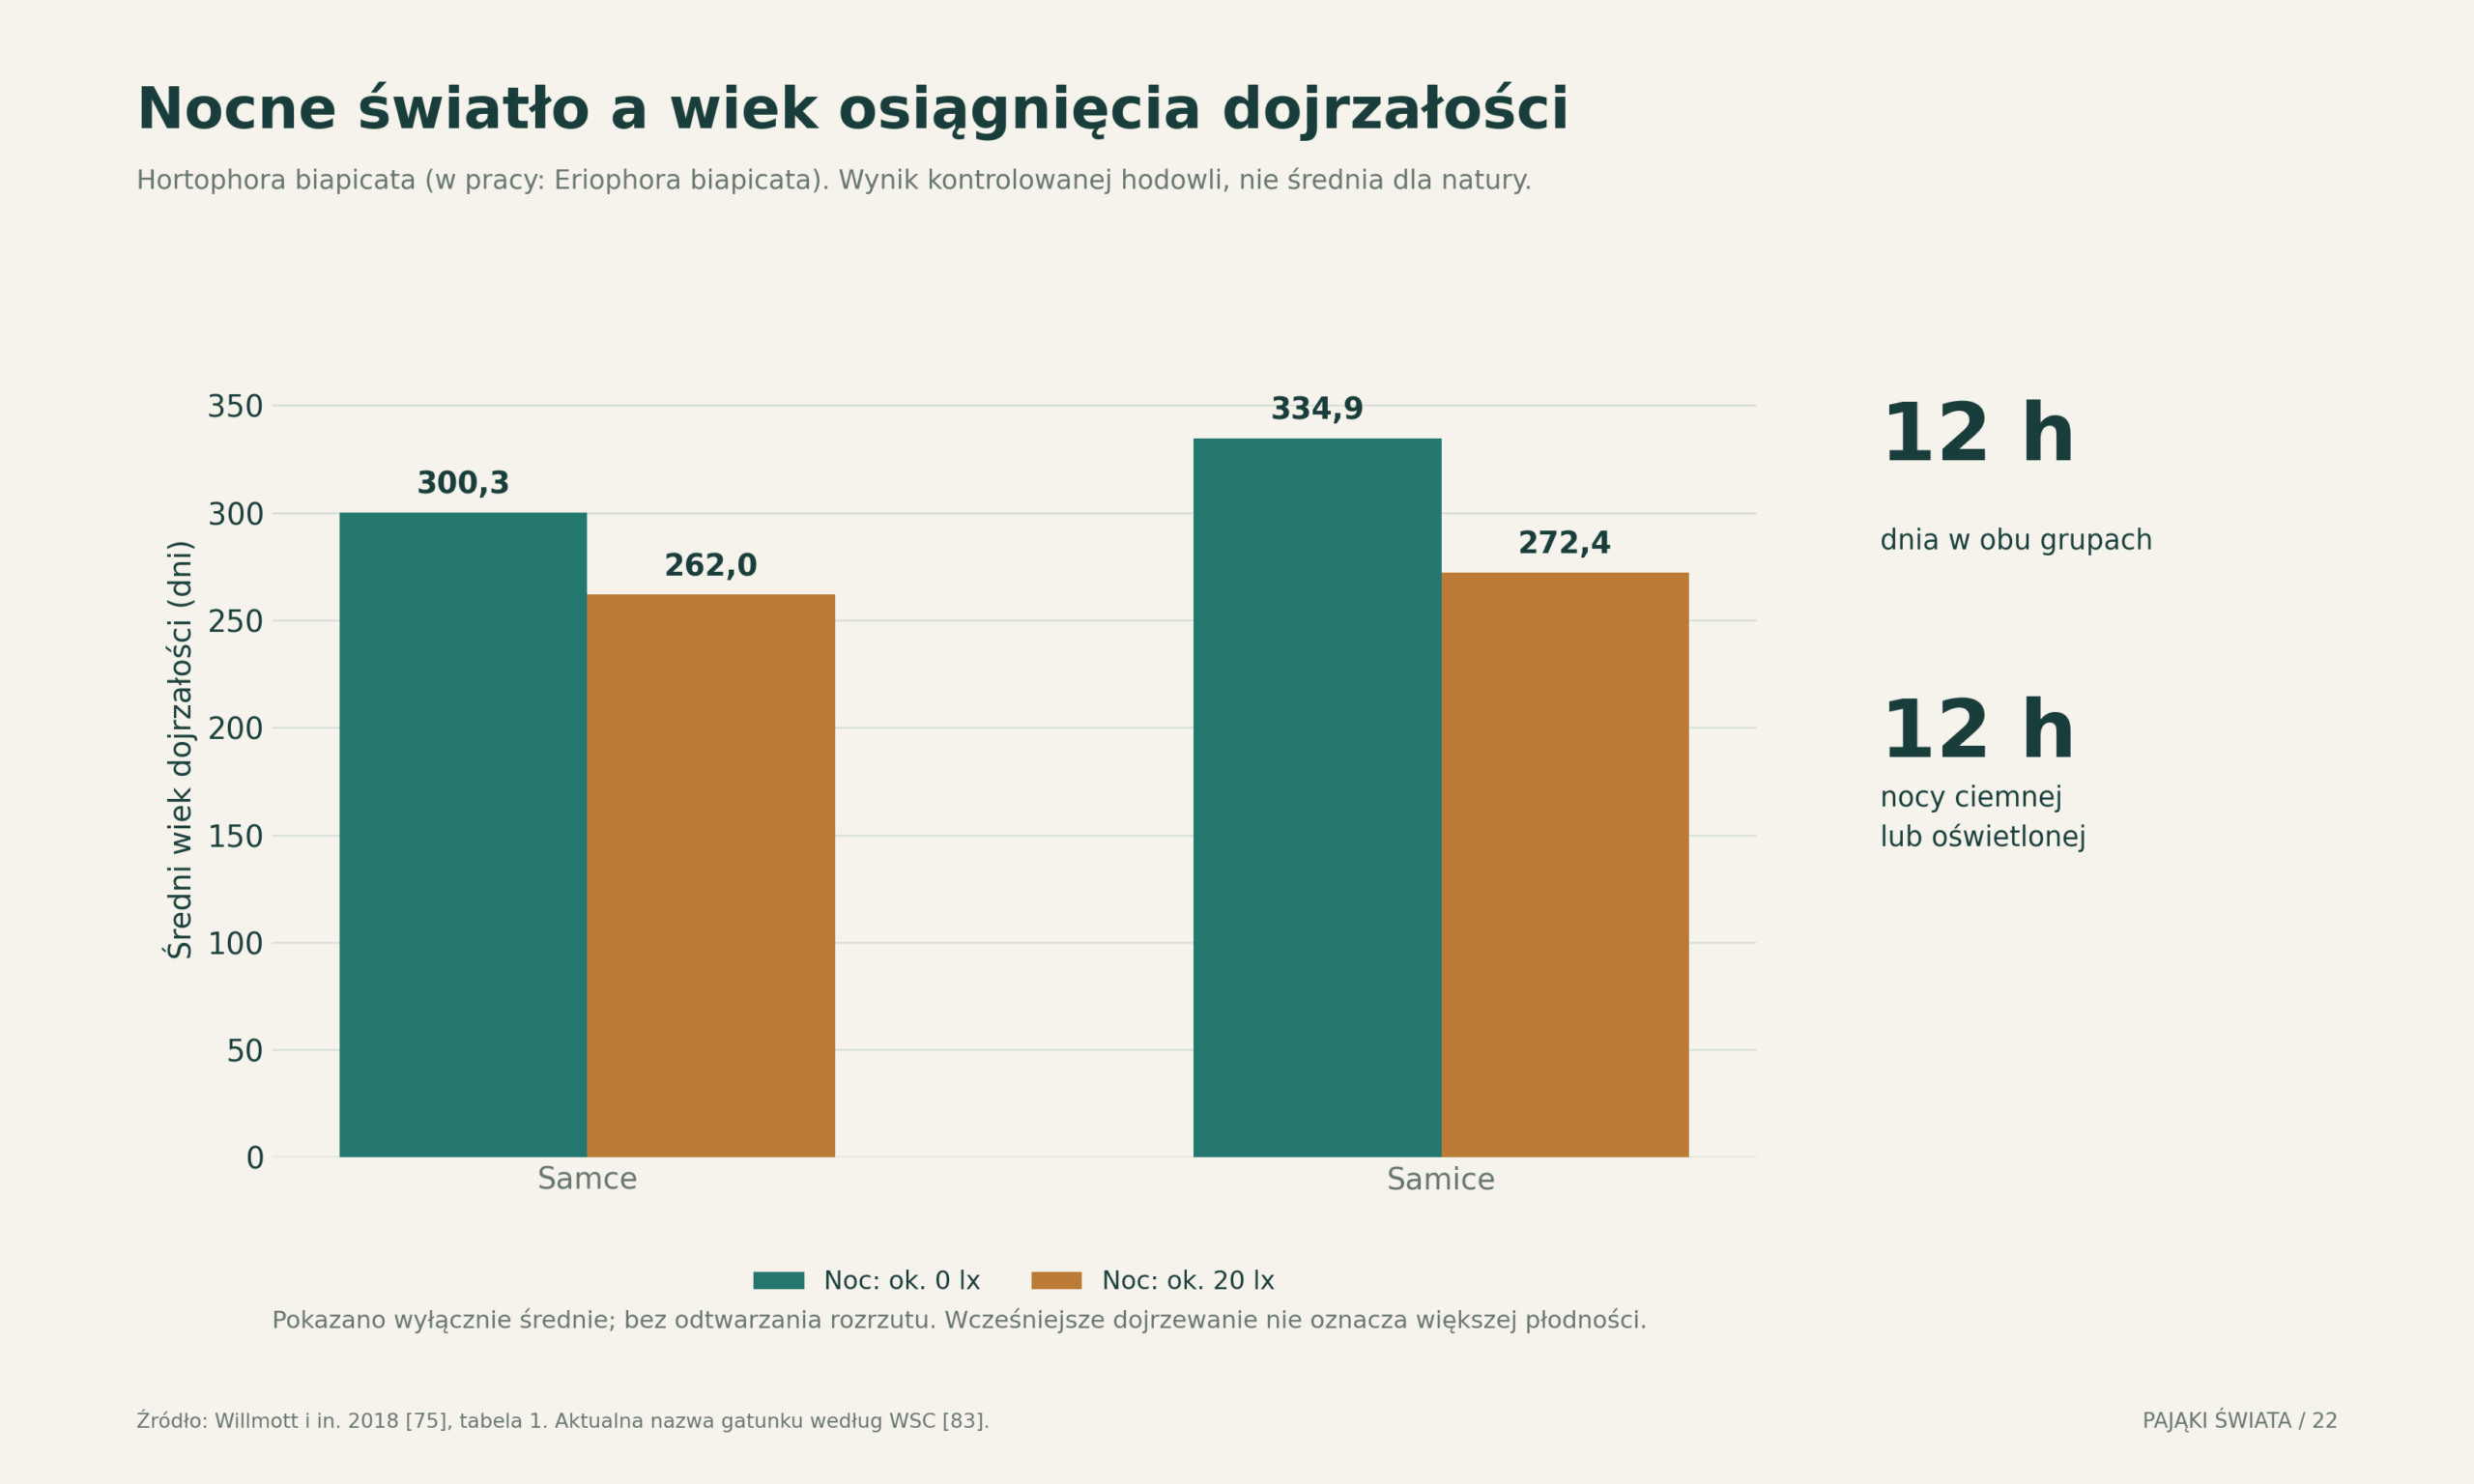
Jak uniknąć pozornego trendu
Większa liczba zgłoszeń w ciepłym roku może oznaczać większą aktywność pająków, dłuższą aktywność obserwatorów albo zmianę popularności aplikacji do oznaczania gatunków. Żeby sprawdzić zmianę populacji, potrzebny jest plan monitoringu pozwalający rozdzielić te możliwości. Dobrym punktem wyjścia są stałe stanowiska, powtarzalne terminy i zapis czasu poszukiwań.
Podobnie wcześniejsze pierwsze zdjęcie w sezonie nie wystarcza do wykazania przyspieszenia fenologii. Skrajna obserwacja jest silnie zależna od liczby poszukujących osób. Rozkład wielu dat i porównywalna metoda dostarczają mocniejszej podstawy. Dla profesjonalnego artykułu ta uwaga jest równie ważna jak efektowna mapa: chroni przed opowiadaniem o zmianie przyrody tam, gdzie zmienił się głównie sposób jej rejestrowania.
28 Ochrona w praktyce: od nory do krajobrazu mokradeł
Dolomedes plantarius jako studium programu ochronnego
Brytyjski program dotyczący bagnika łączy odtwarzanie siedlisk, monitoring, badania i przenoszenie osobników na starannie wybrane stanowiska. Po przygotowaniach prowadzonych w latach 2007–2010 introdukcje wykonano w czterech miejscach na obszarze Norfolk i Suffolk Broads w latach 2010–2015. [80] Materiał IUCN UK Peatland Programme opisuje siedem grup populacji: trzy naturalne i cztery utworzone w ramach programu. To liczba grup stanowisk, nie liczba pojedynczych pająków. [82]
Założenie nowej populacji nie jest tożsame z rozwiązaniem problemu na zawsze. O skuteczności decyduje utrzymanie rozrodu i siedliska w kolejnych latach. W przypadku mokradeł podstawowe znaczenie ma hydrologia. Historia Redgrave and Lopham Fen ilustruje, jak zmiany zaopatrzenia w wodę mogą ograniczyć populację i jak powolne bywa późniejsze odtwarzanie jej zasięgu. [81]
Co trzeba zmierzyć, żeby mówić o sukcesie
W profesjonalnej ocenie należy odróżnić nakład działania od jego rezultatu. Liczba wypuszczonych młodych opisuje wykonany zabieg. Obecność rozrodu po kilku sezonach mówi więcej o utworzeniu populacji. Zajmowany obszar, liczba stanowisk i połączenia między nimi pomagają ocenić odporność na lokalne zdarzenia, takie jak susza. Żadna z tych miar nie jest pełnym zamiennikiem pozostałych.
Rycina przedstawia logikę programu, a nie instrukcję samodzielnego przesiedlania zwierząt. Przenoszenie osobników bez rozpoznania pochodzenia, siedliska i przyczyn zaniku może nie przynieść trwałej korzyści. Znaczenie przykładu bagnika polega właśnie na połączeniu działań z wcześniejszą diagnozą i późniejszym sprawdzaniem wyniku. [80–82]
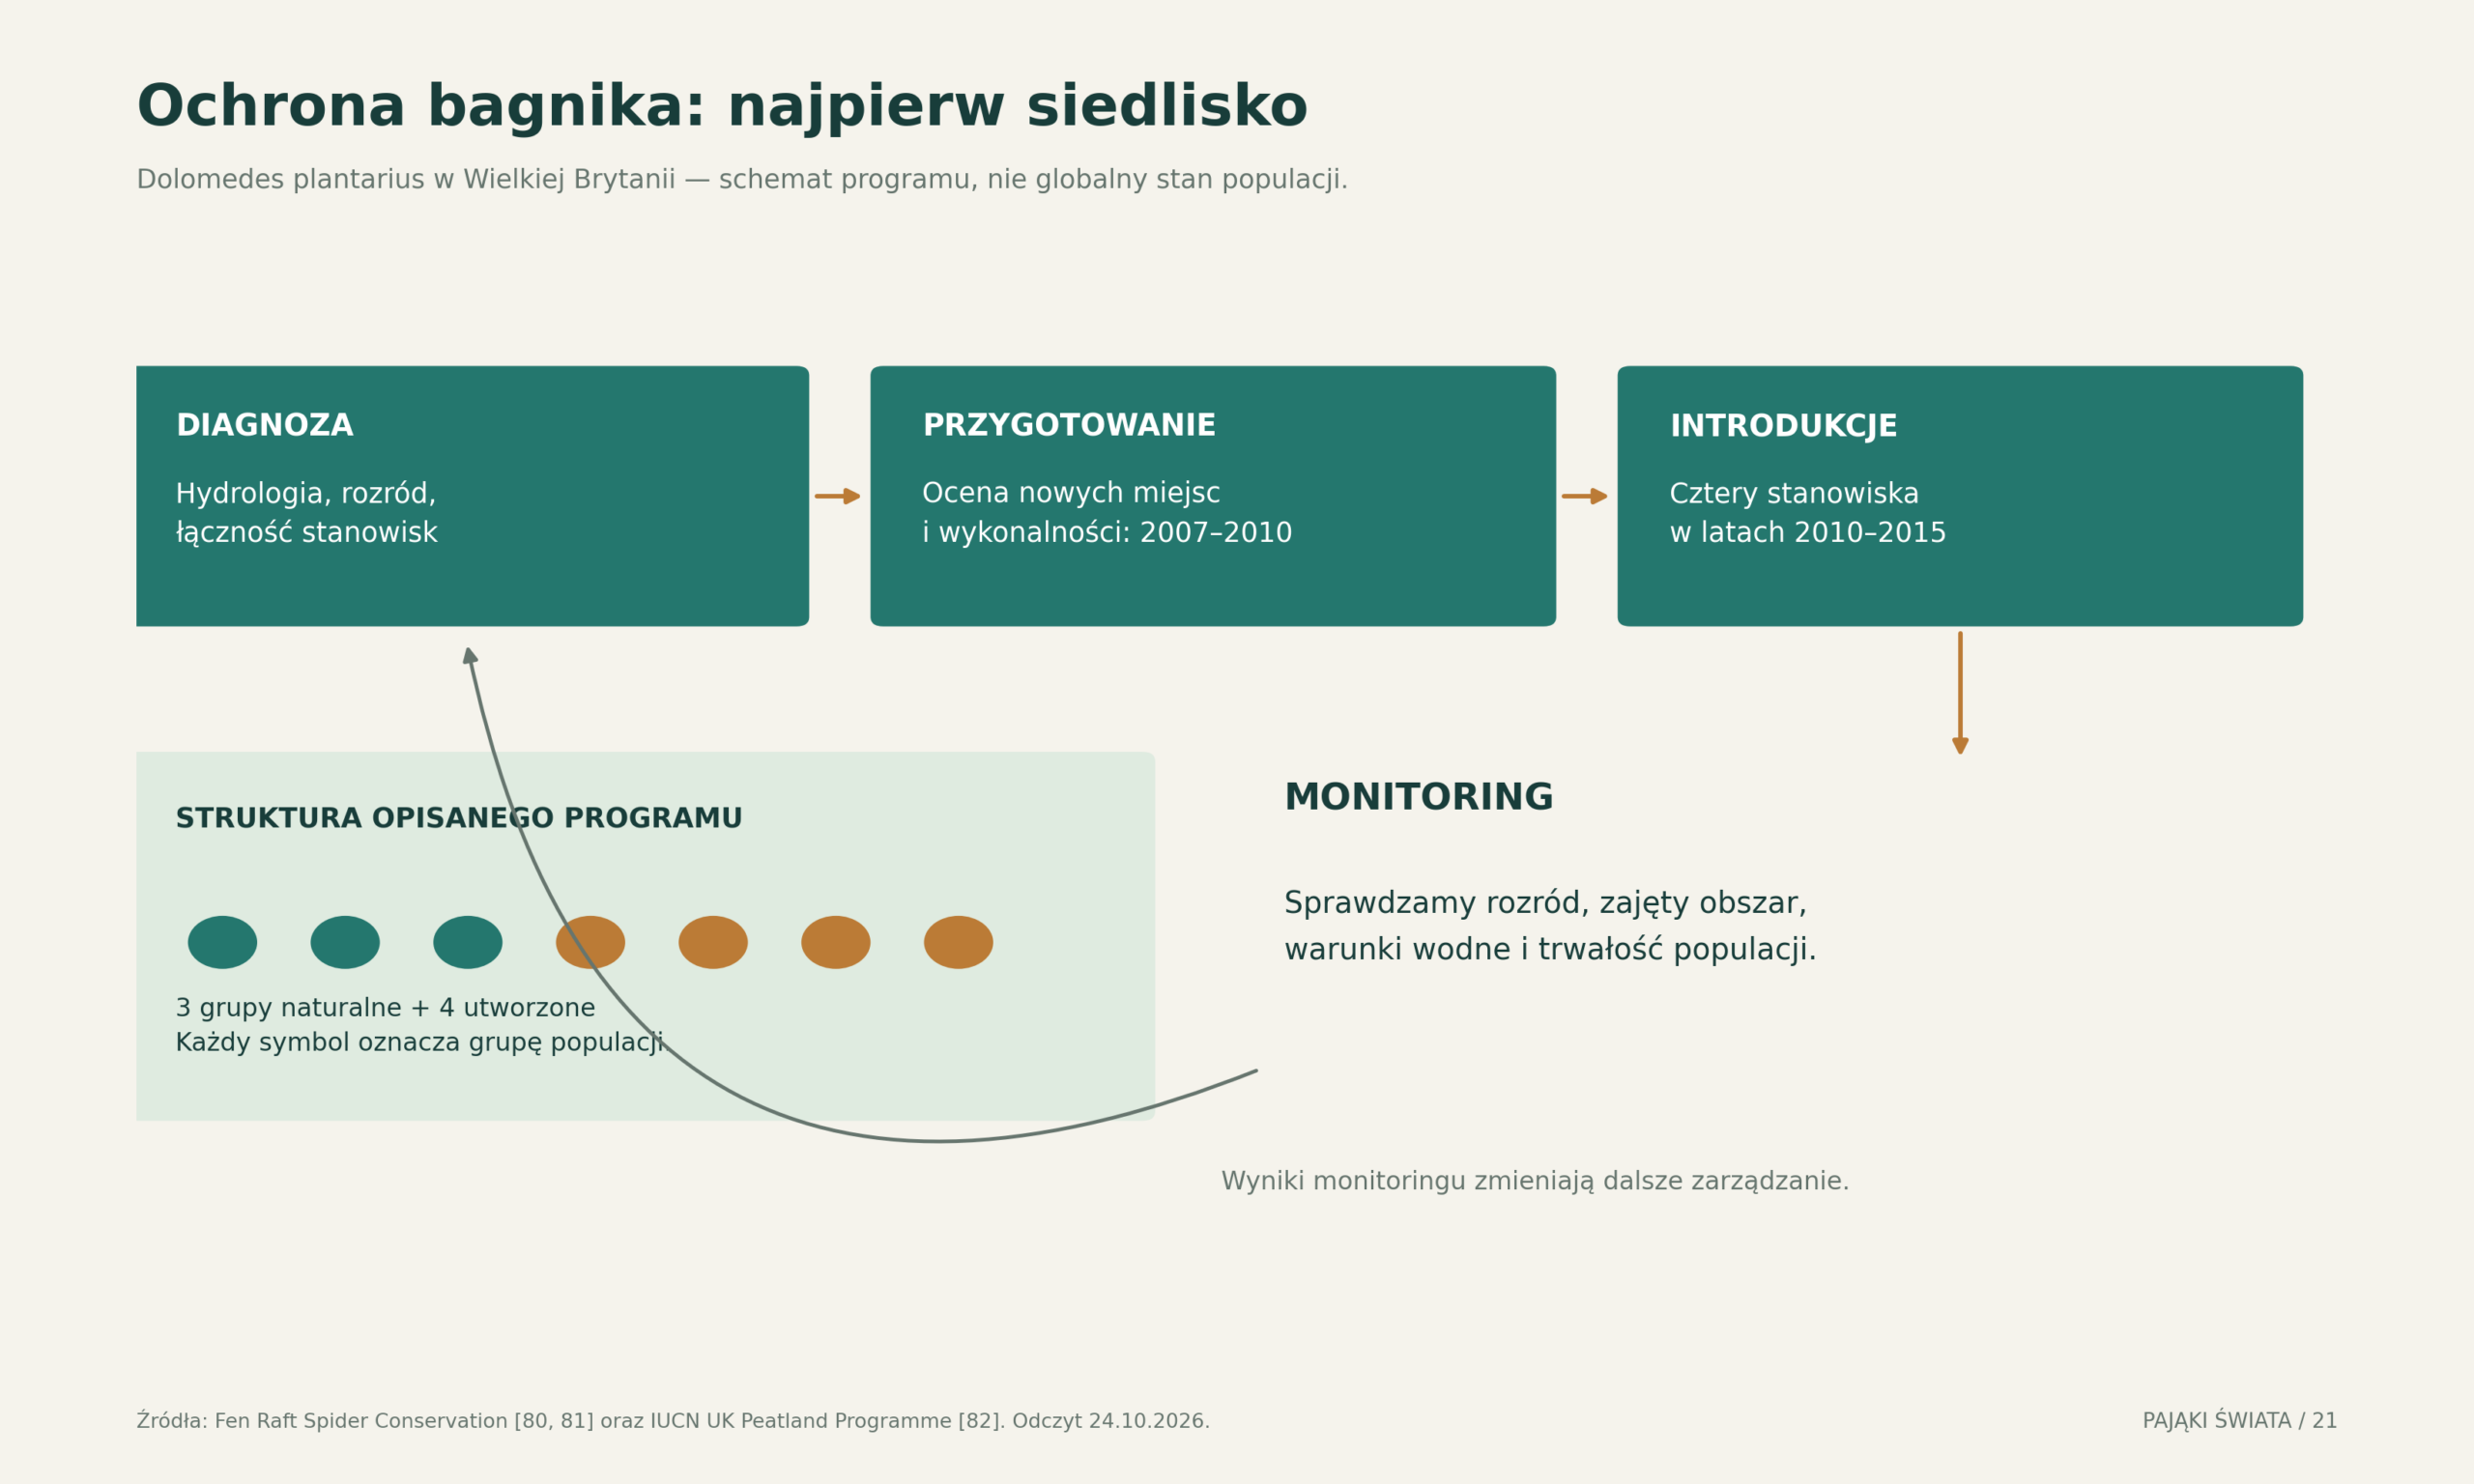
Długowieczność zmienia perspektywę ochrony
Przypadek 43-letniej samicy Gaius villosus przypomina, że obserwowana stabilność osobników dorosłych nie dowodzi prawidłowego odnawiania populacji. [79] Teoretycznie długo żyjące osobniki mogą pozostawać w siedlisku przez lata mimo słabego napływu młodych. Dlatego ocena powinna obejmować strukturę stadiów rozwojowych, a nie wyłącznie obecność dużych, łatwo dostrzegalnych pająków.
Z tej samej przyczyny warto chronić ciągłość siedliska. Niewielka nora czy fragment ściółki mogą wyglądać niepozornie na mapie inwestycji, lecz być elementem długiej historii konkretnej populacji. Ochrona pająków nie wymaga przypisywania każdemu gatunkowi roli spektakularnego „sprzymierzeńca człowieka”. Wystarcza rozpoznanie jego miejsca w różnorodności biologicznej i warunków potrzebnych do utrzymania populacji.
29 Warsztat analizy: jak porównywać siedliska i kraje
Wysiłek badawczy musi być częścią danych
Protokół COBRA-TF opracowano, aby porównywać bogate zespoły pająków lasów tropikalnych przy wykorzystaniu zestawu ustandaryzowanych metod. Łączy on różne sposoby zbierania danych, ponieważ każda metoda wykrywa inną część fauny. Autorzy porównywali protokoły zoptymalizowane i dobierane ekspercko, a rozwiązanie sprawdzali m.in. w górach Udzungwa w Tanzanii. [76]
Z takiego podejścia wynika praktyczna lekcja dla małego projektu obserwacyjnego: zapis „widziano dziesięć pająków” jest niepełny bez informacji o czasie, obszarze i sposobie poszukiwania. Godzina fotografowania ściany budynku i godzina przeglądania roślinności nie tworzą tej samej próby. Nawet identyczna liczba obserwacji nie oznacza porównywalnej wykrywalności gatunków.
Skład, bogactwo i podobieństwo
Dwa miejsca mogą mieć po dziesięć gatunków, ale zupełnie inny skład. Bogactwo lokalne opisuje liczbę, natomiast porównanie składu odpowiada na pytanie, które gatunki są wspólne. Różnica jest kluczowa dla ochrony: dodanie drugiego stanowiska o tej samej liczbie gatunków może zabezpieczyć wiele nowych taksonów albo niemal wyłącznie powtórzyć już chroniony zestaw.
Można to zilustrować prostym, hipotetycznym przykładem. Jeśli stanowisko A ma 10 gatunków, stanowisko B także 10, a wspólnych jest 6, suma obu wykazów obejmuje 14 gatunków. Współczynnik podobieństwa Jaccarda wynosi 6/14, czyli około 0,43. To ćwiczenie rachunkowe, nie wynik pomiaru europejskich pająków. Pokazuje natomiast, dlaczego nie wolno dodawać krajowych list tak, jakby żaden gatunek nie przekraczał granicy państwa.
Rodzaje i gatunki w wykazach europejskich
Dodatkowy wykres zestawia liczbę rodzajów z liczbą gatunków w tych samych 36 jednostkach bazy araneae. Pozwala zobaczyć dwie warstwy klasyfikacji jednocześnie. Punkt przedstawia krajowy wykaz, nie pojedyncze siedlisko. Większa liczba rodzajów zwykle współwystępuje tu z większą liczbą gatunków, ale samo położenie punktu nie wyjaśnia przyczyny tej zależności. [3]
Nie obliczono „wydajności przyrodniczej” kraju na podstawie ilorazu gatunków i rodzajów. Taki wskaźnik zależałby od historii fauny i przyjętej taksonomii. Podobnie dzielenie liczby gatunków przez powierzchnię kraju nie tworzy automatycznie uczciwego rankingu: bogactwo nie rośnie liniowo z powierzchnią, a granice administracyjne przecinają naturalne regiony w różny sposób.
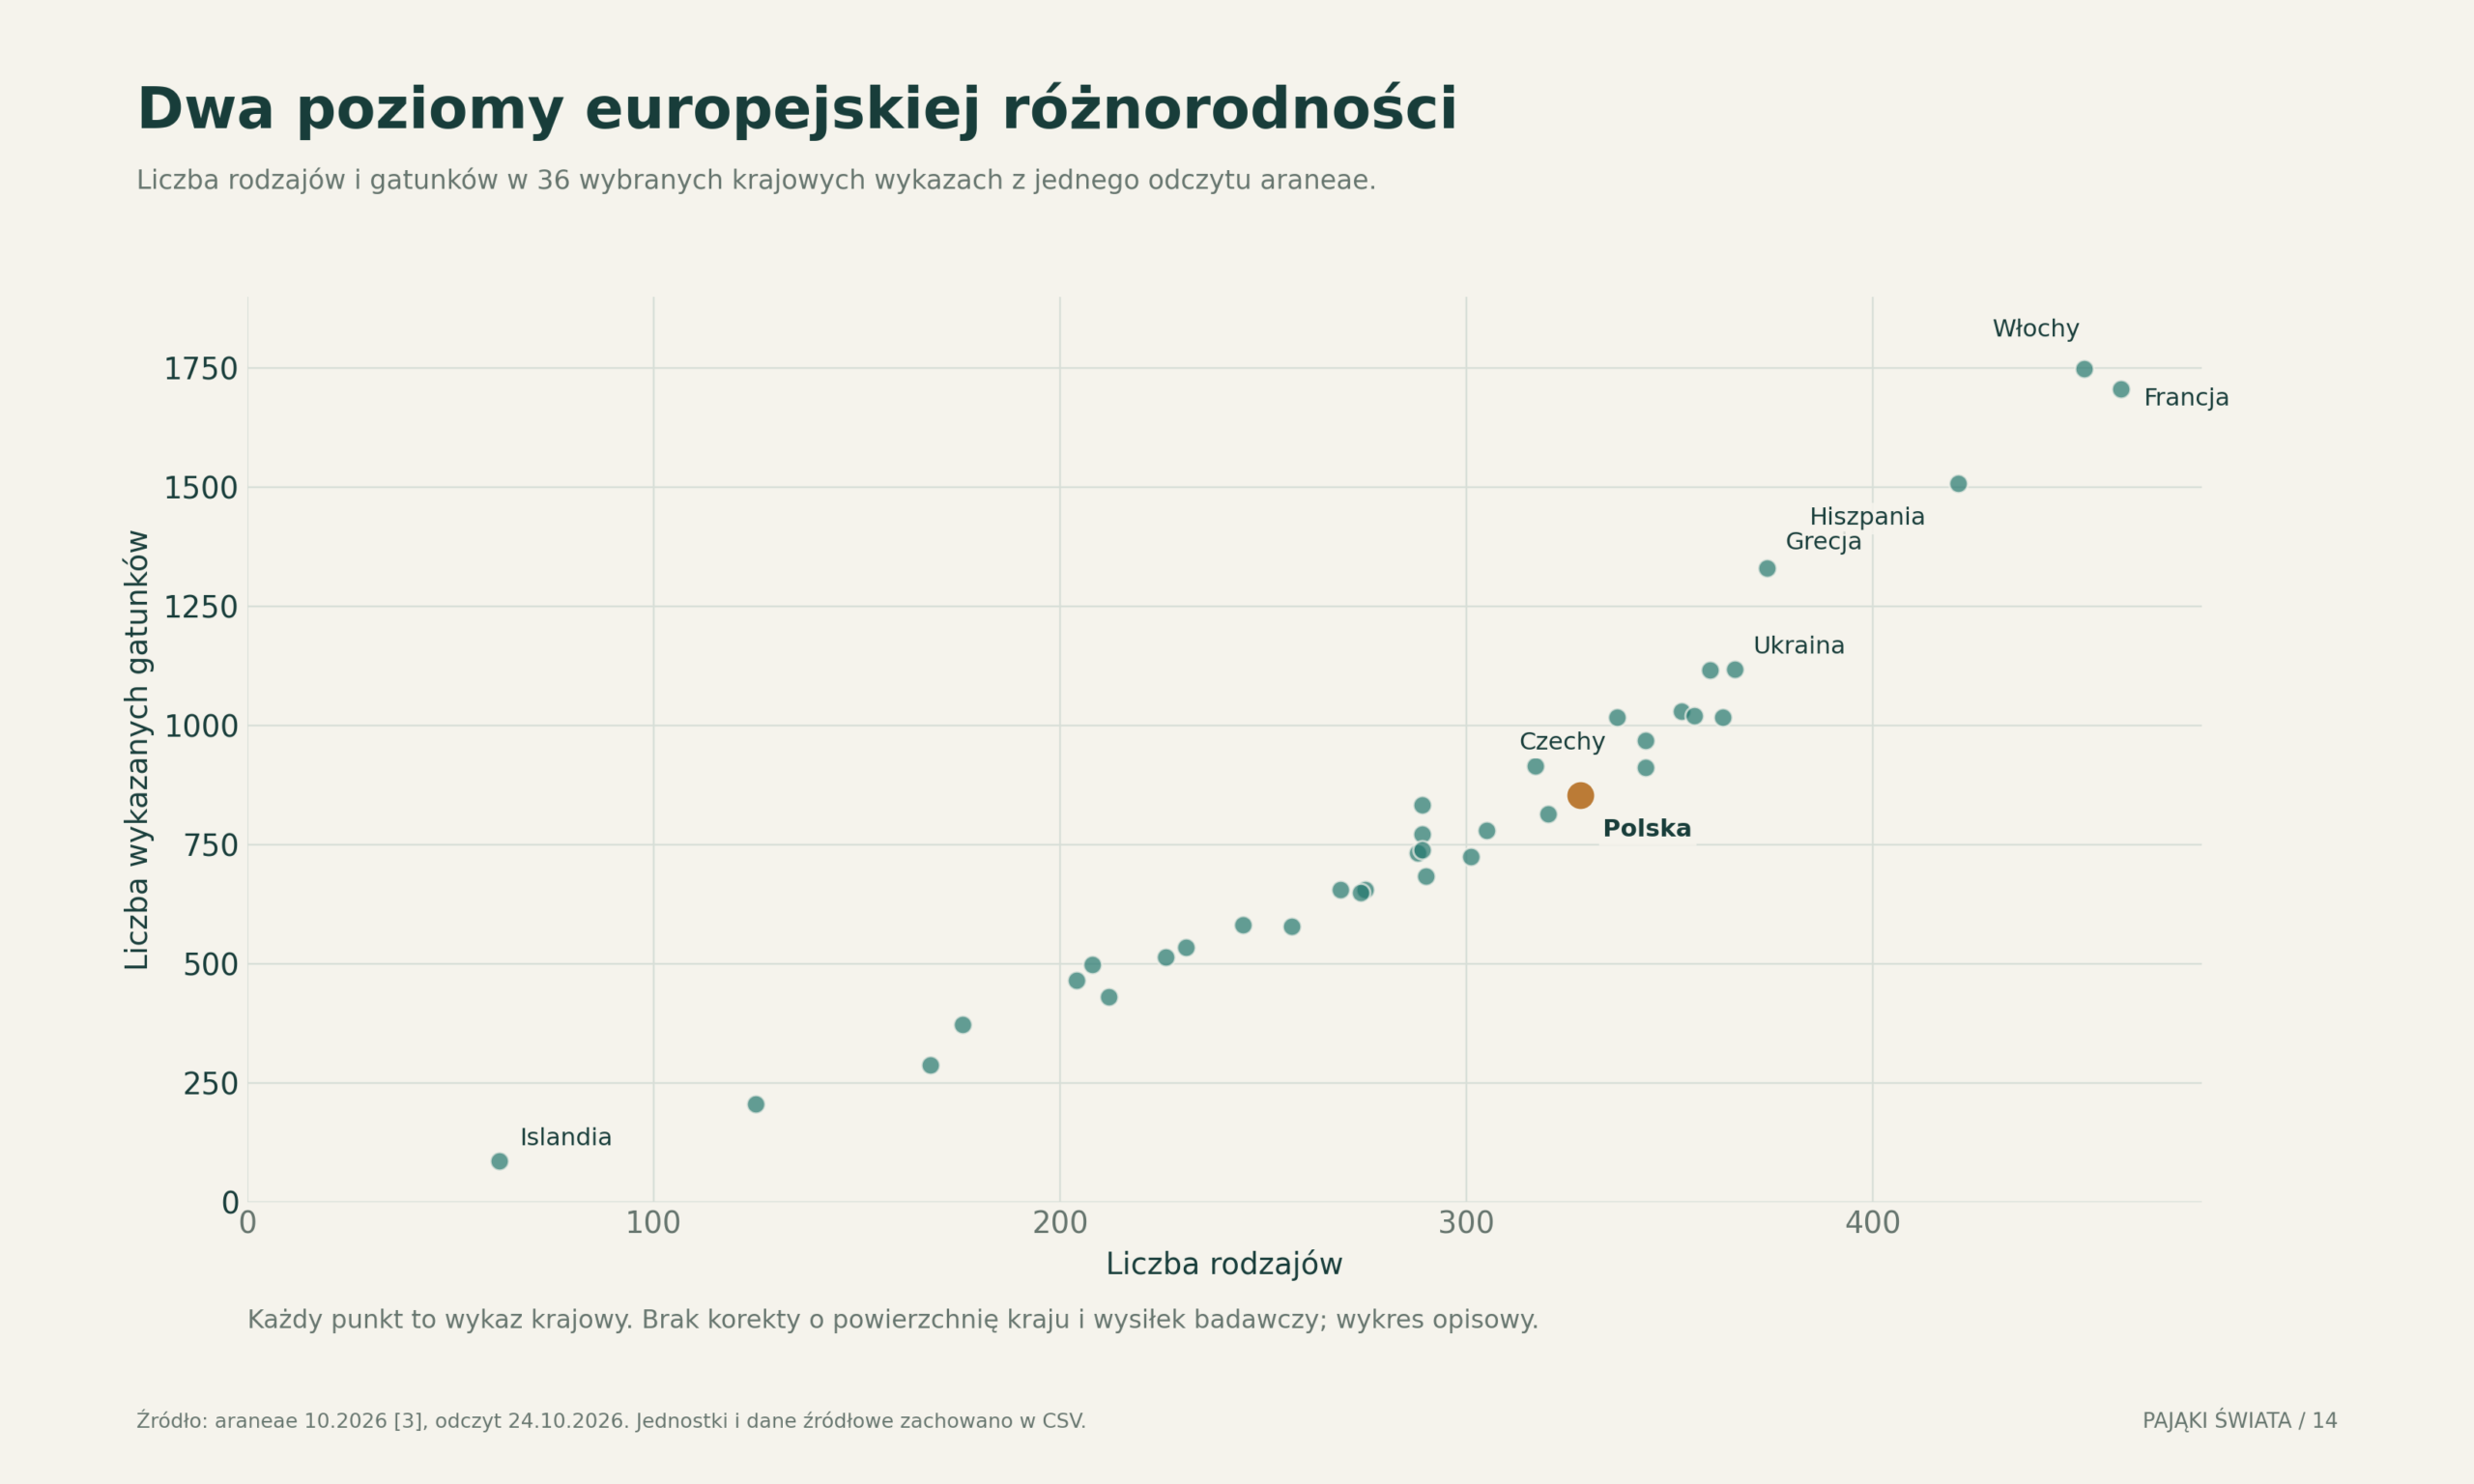
Cztery poziomy odpowiedzialnej dokumentacji
Pierwszy poziom to zapis zdarzenia: kiedy, gdzie i jak obserwowano zwierzę. Drugi to oznaczenie, z zachowaniem informacji o jego pewności. Trzeci obejmuje porządkowanie i kontrolę, np. wykrywanie duplikatów, błędnych współrzędnych i zmienionych nazw. Czwarty to wniosek, którego zakres powinien odpowiadać jakości i kompletności wcześniejszych etapów.
Tak przygotowany zestaw danych można aktualizować. Jeśli później ekspert poprawi oznaczenie, nie trzeba usuwać fotografii ani całej obserwacji; można zmienić warstwę taksonomiczną, zachowując historię decyzji. To jedna z najważniejszych różnic między archiwum badawczym a kolekcją efektownych zdjęć podpisanych nazwą gatunku bez uzasadnienia.
Służy dokumentacji fotograficznej i powtarzalnym obserwacjom. Nie jest formalnym protokołem COBRA-TF ani projektem pobierania okazów. W małej skali również pozwala jednak konsekwentnie zapisywać czas poszukiwania, siedlisko, stadium rozwoju i stopień pewności oznaczenia.
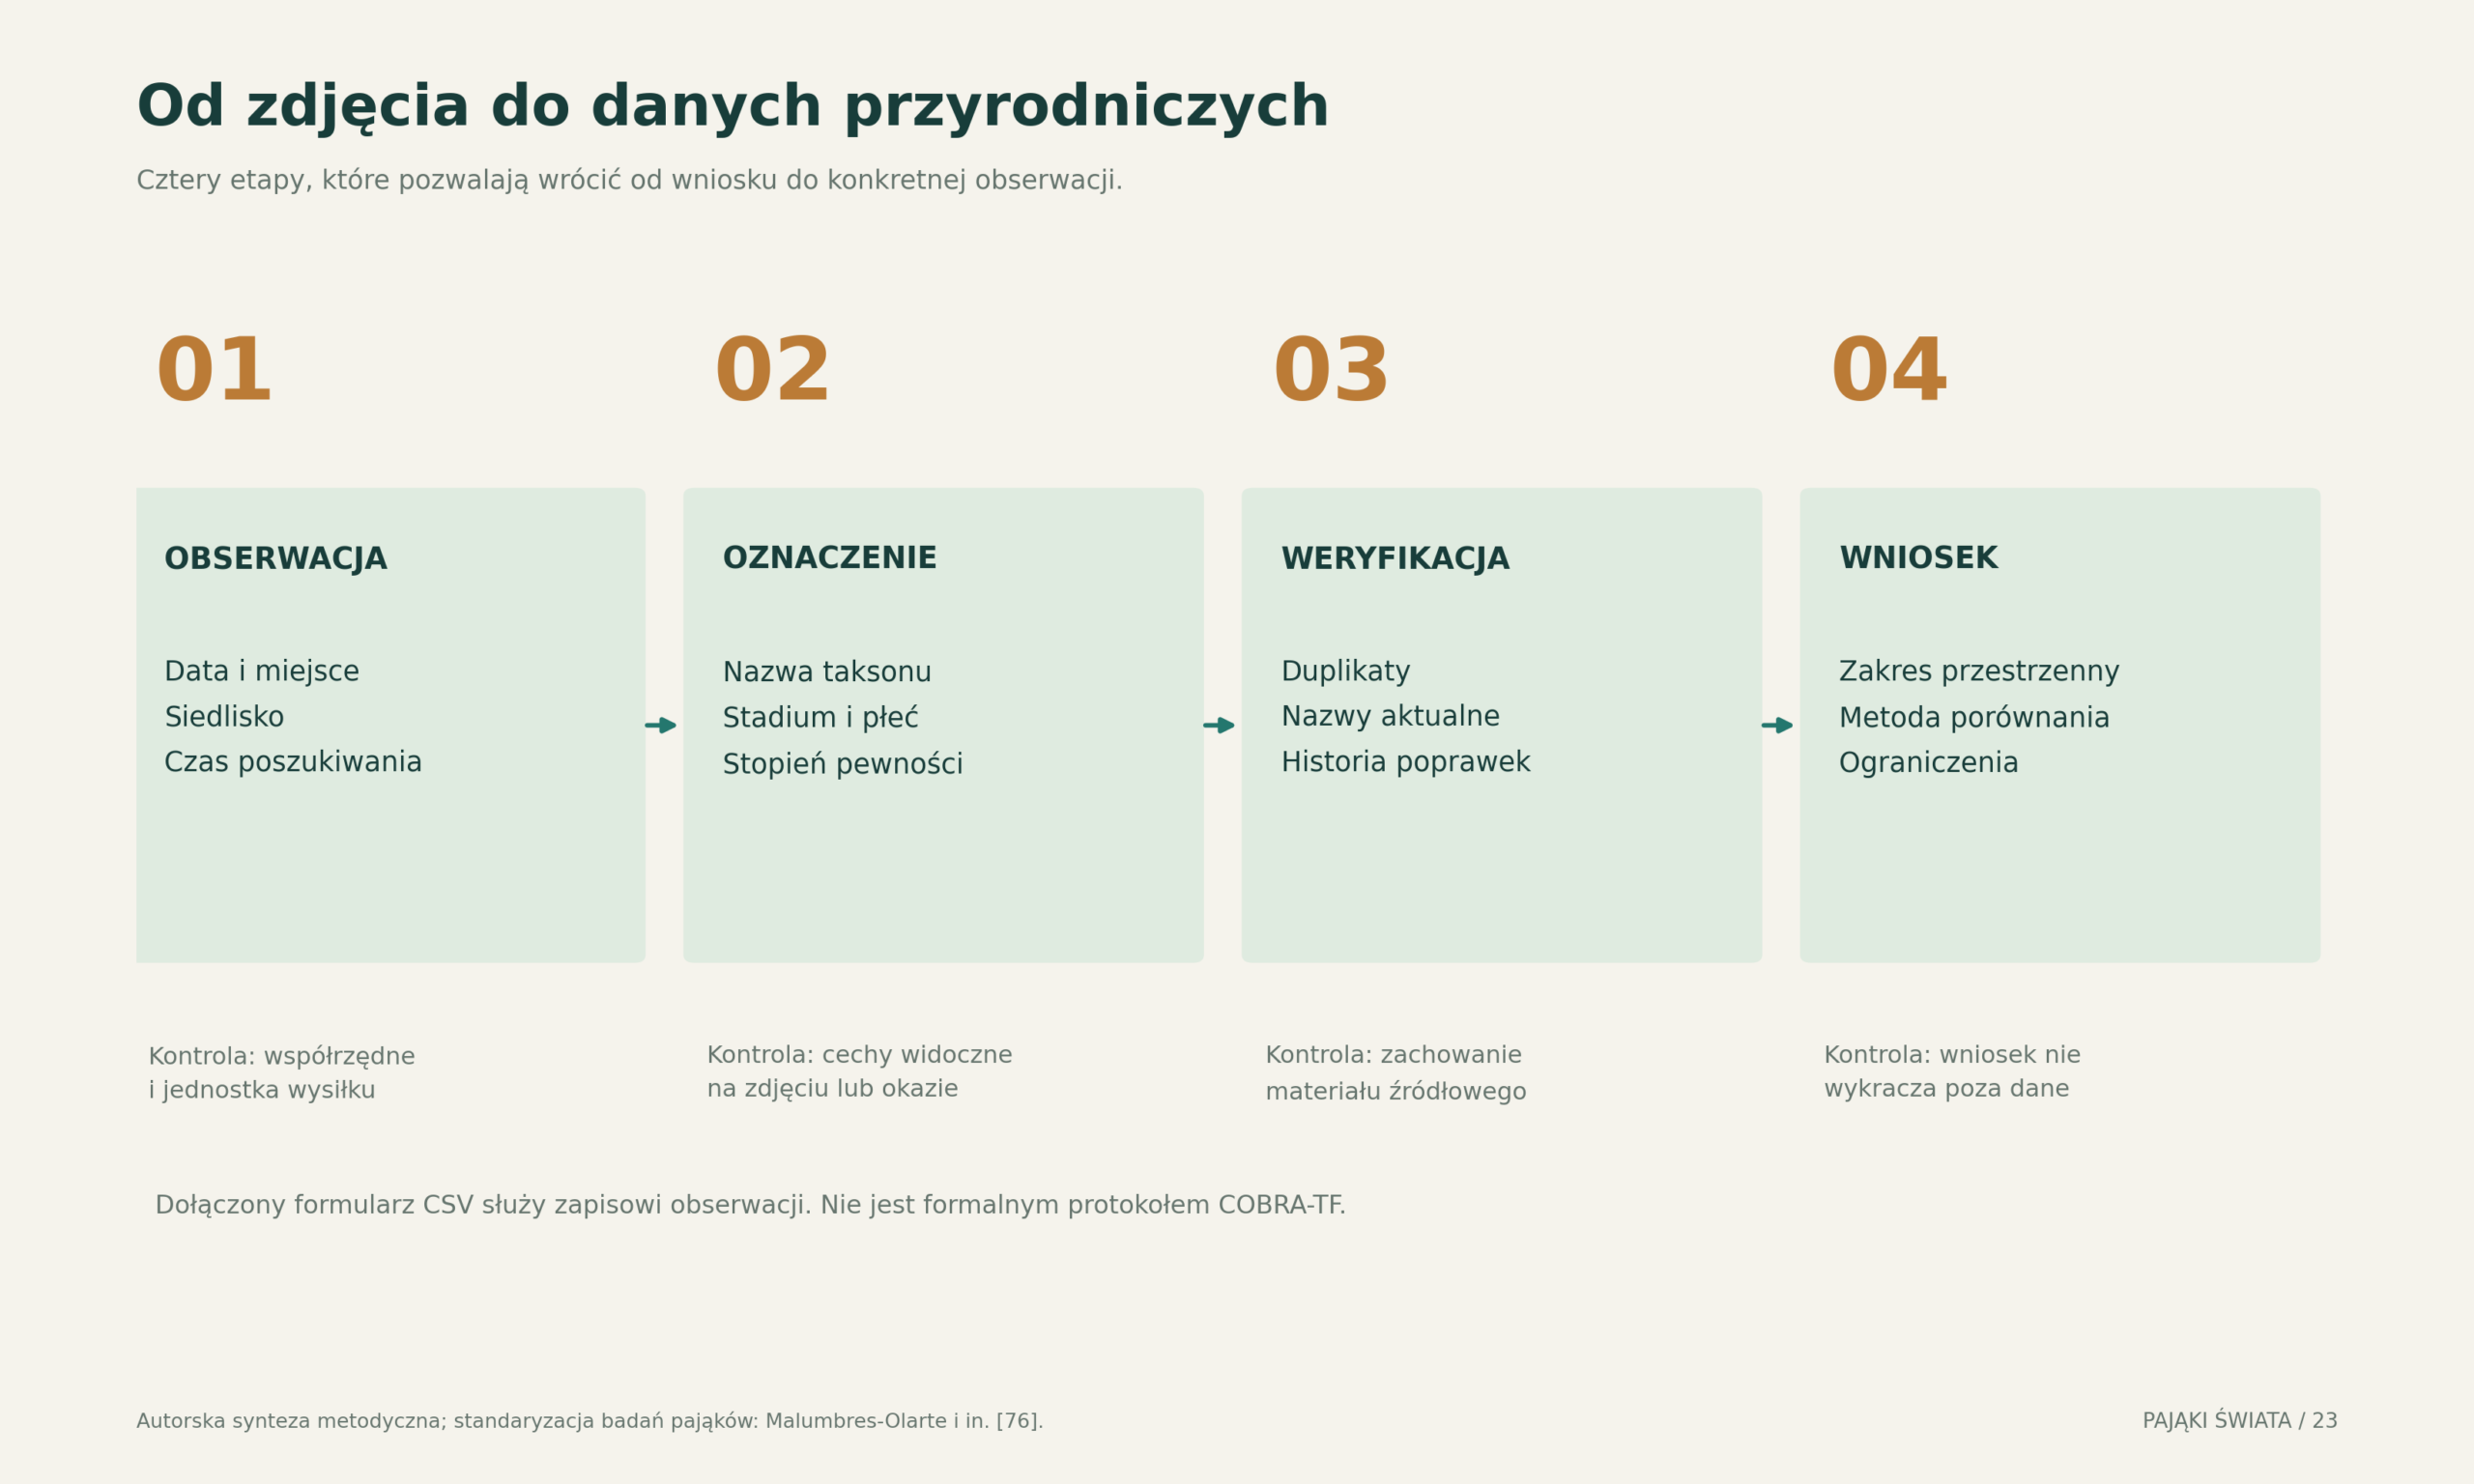
30 Granice obecnej wiedzy i najważniejsze pytania badawcze
Ile gatunków nadal nie znamy
Liczba zaakceptowanych nazw w WSC jest mierzalnym stanem katalogu. Liczba gatunków nieopisanych wymaga oszacowania i zależy od założeń dotyczących zbadanych siedlisk, wykrywalności i granic gatunkowych. Nie ma powodu, aby brakujące rozpoznanie było rozmieszczone równomiernie między krajami lub rodzinami. Rozbudowane zespoły taksonomów i dostęp do kolekcji wpływają na tempo publikowania opisów. [1, 5]
W praktyce warto odróżniać co najmniej trzy sytuacje: gatunek dotąd nieodkryty w terenie, gatunek obecny w kolekcji, lecz jeszcze nieopisany, i gatunek formalnie nazwany, którego biologia pozostaje prawie nieznana. Każda wymaga innego rodzaju pracy. Nowa wyprawa nie zastąpi opracowania zbiorów, a nowa nazwa nie zastąpi monitoringu ekologicznego.
DNA, obraz i okaz muszą się uzupełniać
Sekwencje genetyczne mogą pomóc rozpoznać ukryte zróżnicowanie, ale ich interpretacja zależy od poprawnego powiązania próbki z organizmem. Fotografia pokazuje wygląd żywego osobnika i środowisko, lecz często nie ujawnia struktur potrzebnych do oznaczenia. Okaz referencyjny umożliwia ponowne sprawdzenie cech, jednak nie odtwarza wszystkich aspektów zachowania. [1, 5]
Najmocniejszy opis powstaje wtedy, gdy te warstwy można ze sobą połączyć przez trwałe identyfikatory. W publikacji internetowej łatwo zgubić ten związek: podpis fotografii może krążyć bez miejsca obserwacji, a nazwa może zostać zmieniona po rewizji. Profesjonalny obieg danych powinien zachowywać pochodzenie informacji i możliwość powrotu do materiału, na którym oparto wniosek.
Jad jako narzędzie badawcze
Składniki jadu mogą działać na określone cele molekularne i dlatego interesują badaczy fizjologii oraz potencjalnych terapii. Praca dotycząca peptydu Hi1a opisywała ochronne działanie w przedklinicznym modelu niedokrwiennego uszkodzenia mózgu i oddziaływanie na kanał jonowy ASIC1a. Był to wynik dotyczący badanego modelu, a nie potwierdzenie skuteczności podawania jadu ludziom. [78]
W opisie takich badań należy zawsze wskazać poziom dowodu: test biochemiczny, komórki, model zwierzęcy lub badanie kliniczne. Związek wyizolowany i oczyszczony nie jest równoważny całej mieszaninie jadu. Interesujący mechanizm nie przesądza o bezpiecznej dawce, sposobie dostarczenia ani działaniu w człowieku. W tym artykule wynik ma znaczenie jako przykład naukowego wykorzystania różnorodności, nie jako porada terapeutyczna.
W stronę geografii procesów
Najciekawsze pytanie o pająki w kraju nie brzmi wyłącznie „ile ich jest?”. Warto pytać, jakie siedliska utrzymują rzadkie linie ewolucyjne, które gatunki przemieszczają się wraz z człowiekiem, jak zmienia się pora dojrzewania i gdzie populacje stają się izolowane. Liczby krajowe są punktem wejścia do tych problemów, a nie ich pełnym rozwiązaniem.
Mapa studiów badawczych pokazuje, że odpowiedzi powstają w bardzo różnych miejscach: w tropikalnych koronach drzew, na mokradłach, w rezerwacie australijskich pająków norowych i w miejskich parkach. Nie przedstawia koncentracji wszystkich badań ani globalnych centrów różnorodności. Łączy wybrane opisane doświadczenia z ich kontekstem geograficznym i ułatwia powrót do odpowiednich rozdziałów oraz źródeł.
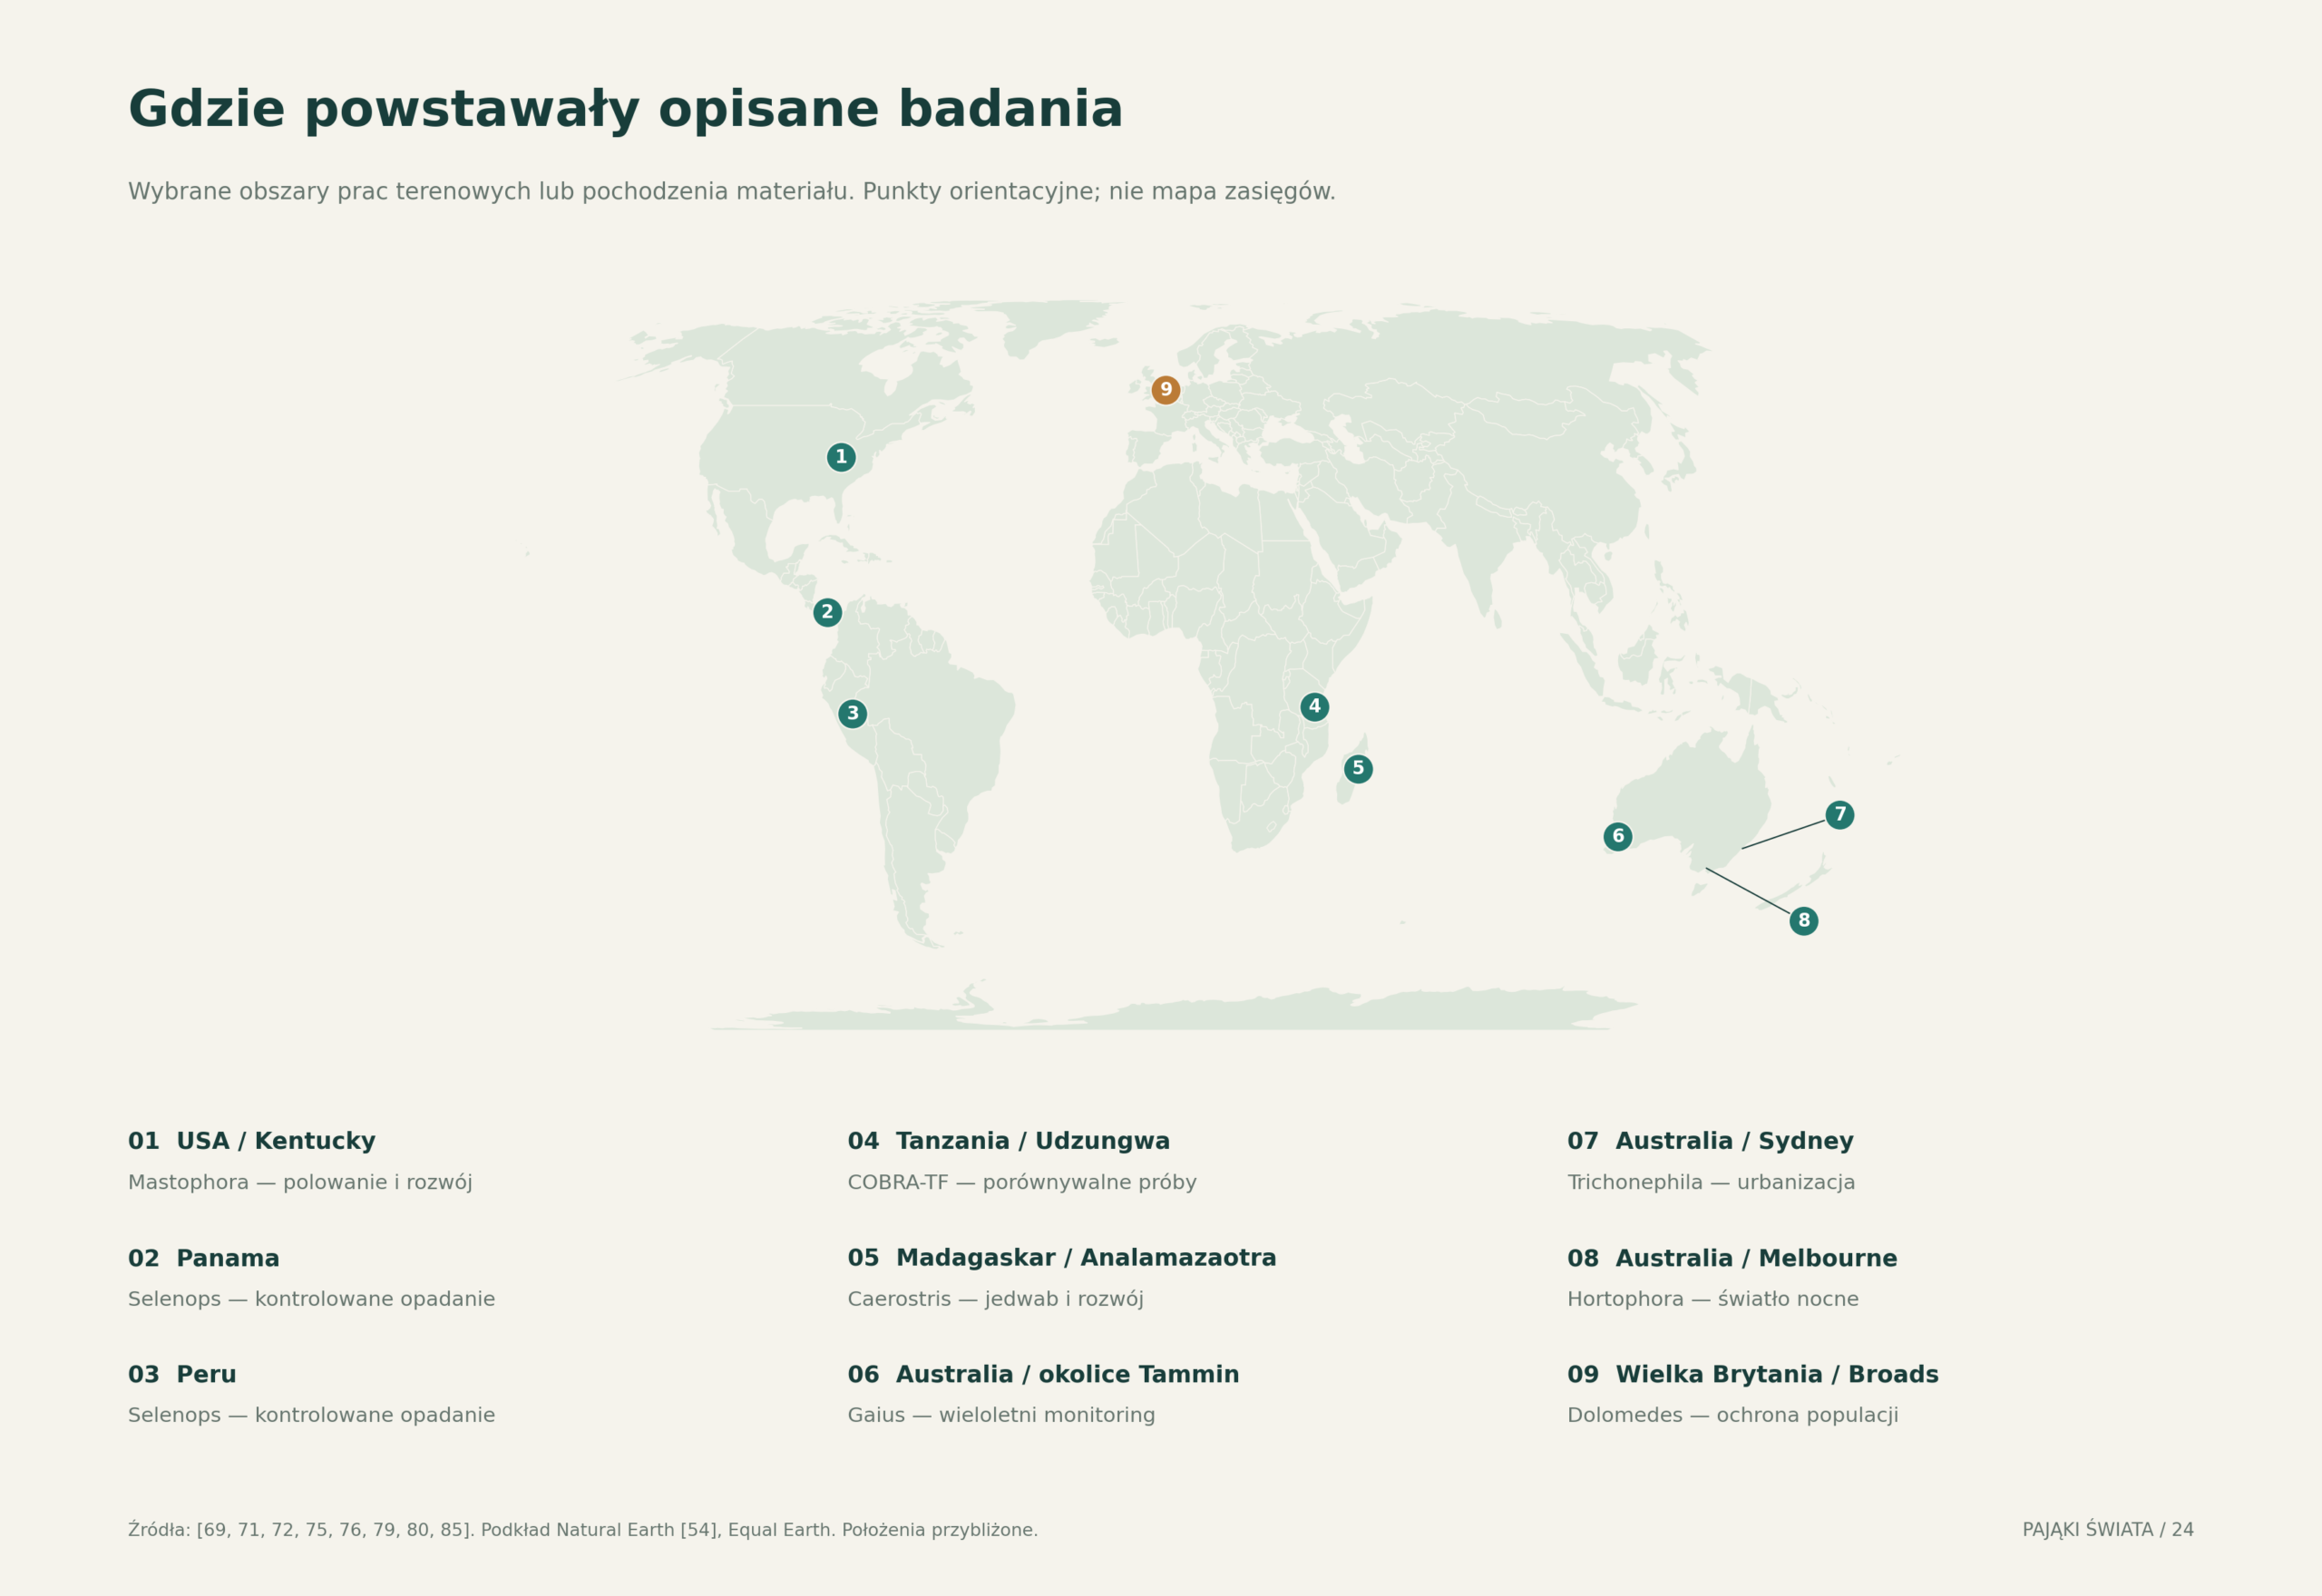
31 Głęboki czas: skamieniałości, filogenomika i pochodzenie pająków
Skamieniałość jest punktem odniesienia, a nie datą narodzin grupy
Historia pająków sięga znacznie dalej niż historia kwiatów, ptaków czy człowieka. Jej odtwarzanie wymaga jednak czegoś więcej niż znalezienia dawnego zwierzęcia z ośmioma nogami. Trzeba ustalić, które cechy rzeczywiście łączą okaz z pająkami, a które występowały również u ich wymarłych krewnych. Dopiero zestaw wielu cech pozwala umieścić skamieniałość w drzewie pokrewieństwa. Data skały informuje, kiedy żył zachowany organizm. Nie wyznacza automatycznie momentu pojawienia się całej linii ewolucyjnej.
Dobrym przykładem jest Idmonarachne brasieri z późnokarbońskich osadów Montceau-les-Mines we Francji, sprzed około 305 milionów lat. Rekonstrukcja przy użyciu tomografii pozwoliła zbadać organizację ciała bez ograniczania się do obrazu widocznego na powierzchni skały. Autorzy umieścili tę formę blisko pająków, lecz poza samą grupą Araneae. Szczególne znaczenie miał brak kądziołków przędnych rozpoznawalnych jako narządy typowe dla pająków. To przykład dokumentujący krewnych, a nie „najstarszy egzemplarz” dowolnego współczesnego rodzaju. [89]
Wiek najstarszego znanego okazu jest minimalnym ograniczeniem wieku danej cechy lub linii. Starsze populacje mogły nie pozostawić skamieniałości albo ich szczątki pozostają nieodkryte. Dlatego sformułowania „najstarszy znaleziony” i „pierwszy istniejący” mają odmienny sens. Ta różnica jest szczególnie istotna dla drobnych zwierząt, których delikatne ciała zachowują się w wyjątkowych warunkach.
Mozaika cech zamiast prostej drabiny postępu
Kredowy Chimerarachne yingi z bursztynu z obszaru dzisiejszej Mjanmy łączył kądziołki przędne i zmodyfikowane nogogłaszczki samców z wydłużoną, wieloczłonową strukturą końcową. Materiał z połowy kredy, około 100 milionów lat temu, pokazuje kombinację odmienną od współczesnych pająków. W analizie Huang i współautorów większość zastosowanych wariantów rekonstrukcji umieszczała Uraraneida jako grupę siostrzaną Araneae. Oznacza to współistnienie odmiennych linii, a nie koniecznie bezpośrednie przodkostwo badanego okazu wobec dzisiejszych pająków. [90]
W potocznym opisie łatwo narysować szereg: zwierzę „prymitywne”, forma pośrednia, pająk nowoczesny. Rzeczywista ewolucja przypomina rozgałęziającą się historię populacji. Linia zachowująca pewną dawną cechę mogła jednocześnie rozwinąć własne specjalizacje. Pojęcie mozaiki cech jest więc bardziej użyteczne niż etykieta „niedokończonego pająka”. W opracowaniu popularyzatorskim rekonstrukcja nie powinna zastępować informacji o tym, które części organizmu naprawdę się zachowały.
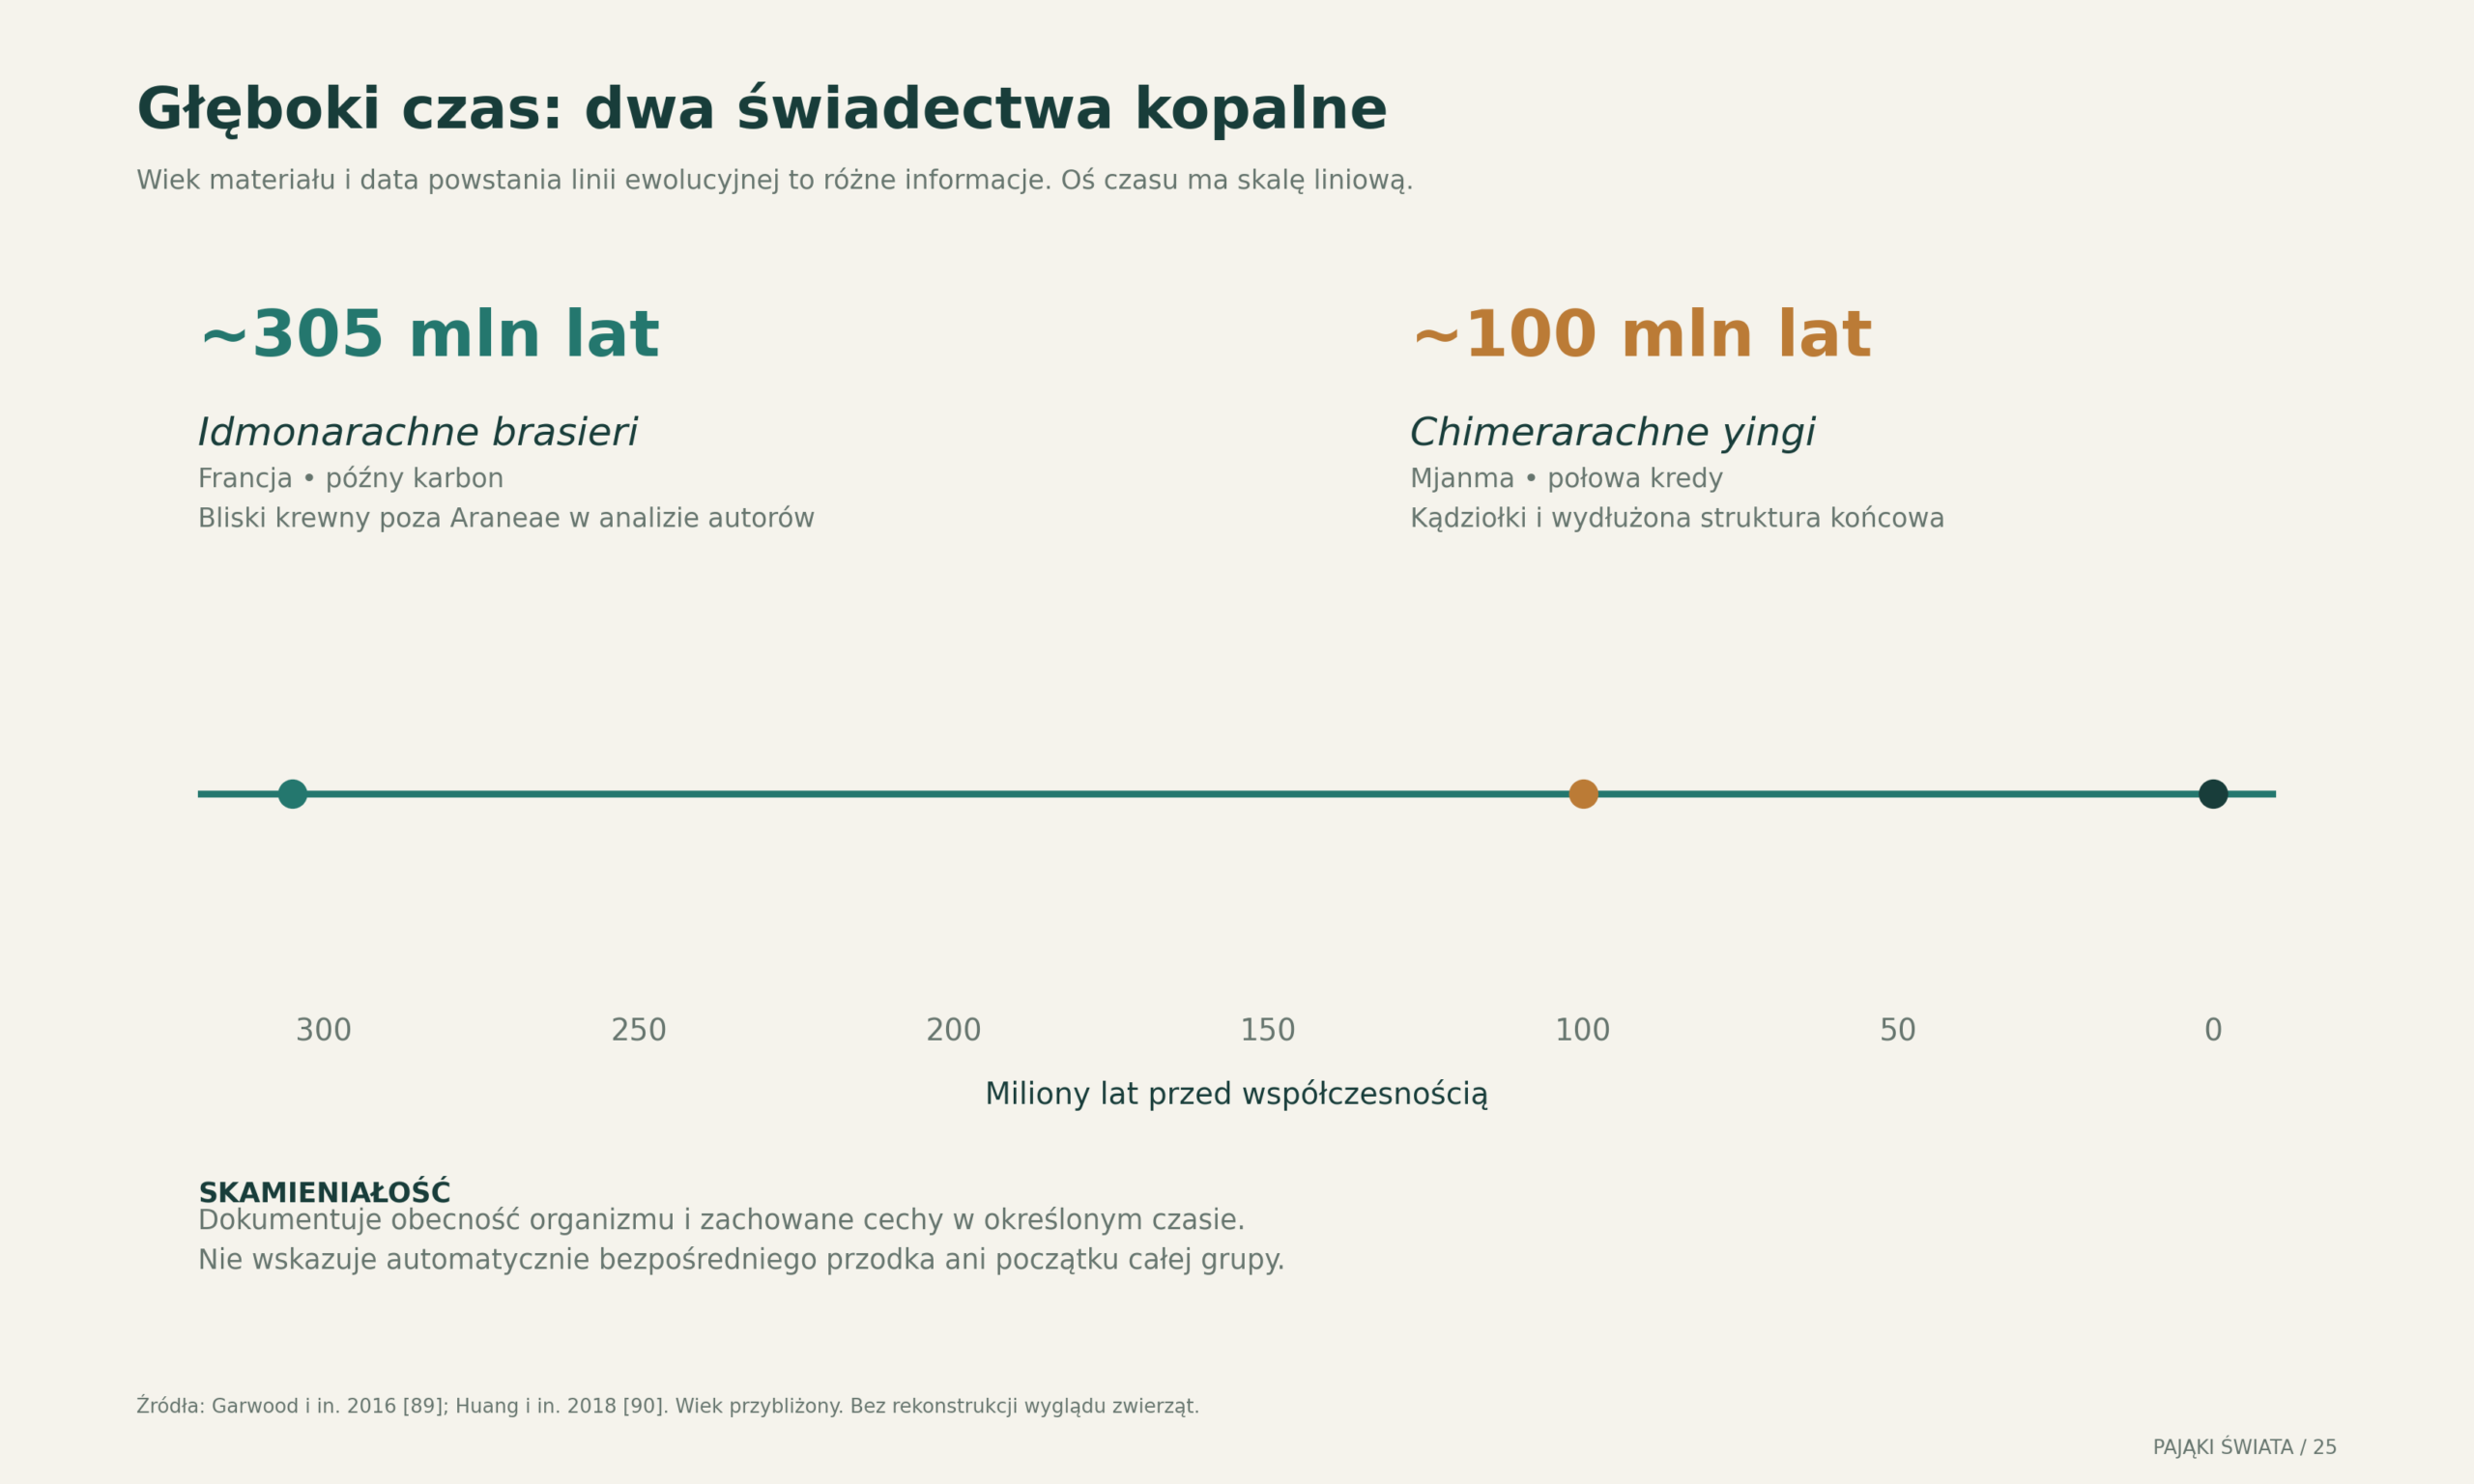
Co do historii dopisują genomy
Skamieniałości dokumentują anatomię i czas, natomiast filogenomika porównuje wiele fragmentów materiału genetycznego organizmów. Garrison i współautorzy analizowali 70 taksonów pająków; największy zestaw obejmował 3398 regionów genowych i 696 652 pozycje aminokwasowe. Tak duża macierz była istotnym krokiem w badaniu relacji wewnątrz rzędu. Nie była jednak sekwencjonowaniem wszystkich gatunków pająków ani pełnym spisem ich genomów. [91]
Liczba analizowanych pozycji nie rozstrzyga sama o jakości drzewa. Znaczenie ma dobór gatunków, poprawne rozpoznanie porównywanych genów i model ich zmian. Dwie analizy mogą różnić się nie tylko wynikiem, ale też zakresem pytania: jedna bada najgłębsze rozgałęzienia, inna relacje między blisko spokrewnionymi gatunkami jednego rodzaju. Dołączanie skamieniałości wymaga osobnego uzasadnienia ich pozycji i wieku.
Praktyczna konsekwencja dla czytelnika jest prosta: nazwa rodziny w starszym artykule może różnić się od aktualnego katalogu, mimo że obserwacja zachowania pozostaje użyteczna. Najbezpieczniej wyszukiwać badanie przez nazwę gatunku, autorów i DOI, a następnie sprawdzić jego obecne przyporządkowanie. Tak właśnie oddzielono w tej publikacji współczesną klasyfikację od historycznej terminologii cytowanych doświadczeń.
32 Wyspy: izolacja, kolonizacja i powtarzalność ewolucji
Dlaczego archipelag jest szczególnym układem badawczym
Wyspa ogranicza wymianę organizmów z otoczeniem, ale nie stanowi szczelnie zamkniętego pojemnika. Pająk może do niej dotrzeć z powietrzem i jedwabiem, z pływającą roślinnością albo z transportem ludzi. Samo przybycie nie wystarcza do powstania trwałej populacji. Potrzebne są odpowiednie warunki, dostęp do pokarmu i możliwość rozmnażania. W dalszej historii kolonizację może uzupełniać różnicowanie miejscowych populacji.
W porównaniach archipelagów należy rozdzielić trzy zjawiska: pojawienie się linii na wyspie, jej lokalne zróżnicowanie oraz późniejszą wymianę między wyspami. Podobny pająk na dwóch wyspach może być potomkiem wspólnej niedawnej kolonizacji. Może też reprezentować podobny sposób życia, który wyewoluował niezależnie. Rozróżnienie tych możliwości wymaga danych o pokrewieństwie, nie samej fotografii.
Hawajskie Tetragnatha: podobne rozwiązania, różne historie
Badania hawajskich Tetragnatha pokazują, jak łączyć ekologię z historią ewolucyjną. Blackledge i Gillespie porównywali architekturę sieci z pokrewieństwem pająków. Ich wyniki wspierały niezależne powstawanie podobnych konstrukcji na różnych wyspach. Zbieżność zachowania i budowy sieci może zatem wynikać z podobnych warunków ekologicznych, a nie wyłącznie ze wspólnego pochodzenia niedawnego przodka. [92]
W innej części hawajskiej radiacji, grupie określanej jako „spiny-leg clade”, opisano powtarzające się formy ekologiczne. Gatunki z jednej wyspy często były bliżej spokrewnione ze sobą niż z podobnie wyglądającymi formami z innych wysp. Gillespie pokazała także znaczenie kierunku kolonizacji archipelagu i geograficznego kontekstu specjacji. To konkretny model radiacji, którego nie należy mechanicznie przenosić na każdy archipelag. [93]
Te wyniki pozwalają doprecyzować znaczenie słowa „podobny”. Podobieństwo sylwetki, barwy, miejsca przebywania i sieci to odrębne cechy. Dwa gatunki mogą być podobne pod jednym względem i odmienne pod innym. Profesjonalne porównanie opisuje, co zostało zmierzone, zamiast sprowadzać wszystkie cechy do jednej oceny wizualnej.

Endemit nie musi być rzadki w obrębie własnej wyspy
Endemizm dotyczy ograniczenia zasięgu. Rzadkość może oznaczać małą liczebność, niewiele stanowisk albo trudność obserwacji. Te cechy nie są równoważne. Gatunek ograniczony do jednego archipelagu może być miejscami liczny; gatunek występujący na kilku kontynentach może być rzadki w konkretnym kraju. W ocenie zagrożenia trzeba uwzględnić zarówno zasięg, jak i strukturę populacji oraz zmiany siedlisk.
Jednostka odniesienia ma znaczenie. „Endemit Madagaskaru” nie oznacza tego samego co „endemit jednego masywu na Madagaskarze”. Kraj obejmujący liczne wyspy może mieć wysoki udział endemitów krajowych, a równocześnie wiele gatunków o skrajnie małych zasięgach lokalnych. Zsumowanie ich w jednej tabeli krajowej zaciera tę różnicę.
Jak rozsądnie czytać mapę wysp
Mapa w tym rozdziale jest indeksem geograficznym. Punkty wskazują Hawaje, Galapagos, Madagaskar, Nową Zelandię i wyspy regionu Pacyfiku omawiane jako konteksty biogeograficzne. Wielkość symboli nie koduje liczby gatunków. Nie przedstawiono na niej prawdopodobieństwa kolonizacji ani rangi ochronnej.
Do mapowania rzeczywistych zasięgów potrzebne byłyby zweryfikowane stanowiska, jednolite nazewnictwo i informacja o niepewności położenia. Połączenie kilku punktów wielokątem nie dowodzi zajmowania całego obszaru między nimi. Na archipelagu taki wielokąt może obejmować przede wszystkim ocean. Wniosek o ciągłości populacji wymaga znacznie więcej niż estetycznego konturu.
33 Podziemna biosfera: pająki jaskiń i szczelin
Próg jaskini nie wyznacza jednej fauny
Strefa wejściowa, odcinek półmroku i głębsze partie jaskini różnią się światłem, warunkami mikroklimatycznymi i dostępnością zasobów. Pająk znaleziony przy wejściu nie musi być wyspecjalizowanym mieszkańcem podziemi. Ważne jest, czy wykorzystuje jaskinię okresowo, czy może w niej przejść cały cykl życia, i czy występuje również na powierzchni. W praktyce te kategorie wymagają obserwacji populacji, a nie pojedynczego znaleziska.
Przegląd Mammoli i Isai z 2017 roku opisywał około tysiąca sklasyfikowanych pająków troglobiontycznych oraz przystosowania podziemne rozpoznane w co najmniej 48 rodzinach. Są to wartości historyczne i zależne od kryteriów autorów. Nie należy dzielić liczby 48 przez dzisiejszą liczbę rodzin z WSC i traktować wyniku jako aktualnego udziału fauny jaskiniowej. Autorzy przypomnieli też opis pozbawionej oczu Stalita taenaria z jaskini Postojna w Słowenii, opublikowany w 1847 roku. [94]
Życie bez światła nie sprowadza się do utraty oczu
Redukcja oczu i pigmentu należy do najbardziej rozpoznawalnych cech organizmów podziemnych, ale sama nie opisuje ich ekologii. Dla pająka równie ważne mogą być sposób pozyskiwania pokarmu, tolerancja warunków i możliwość przemieszczania się przez szczeliny. Utrata jednej funkcji nie oznacza ogólnego „uproszczenia” organizmu. Ocena przystosowania wymaga odniesienia cechy do środowiska i wyników rozrodu.
Schemat przekroju jaskini pokazuje możliwe drogi dostarczania materii organicznej z powierzchni. Nie jest modelem bilansu energii konkretnego obiektu. Rzeczywista jaskinia może mieć kilka wejść, aktywny przepływ wody albo połączenia niedostępne dla człowieka. Z tej przyczyny granica narysowana na mapie turystycznej nie musi odpowiadać granicy populacji.
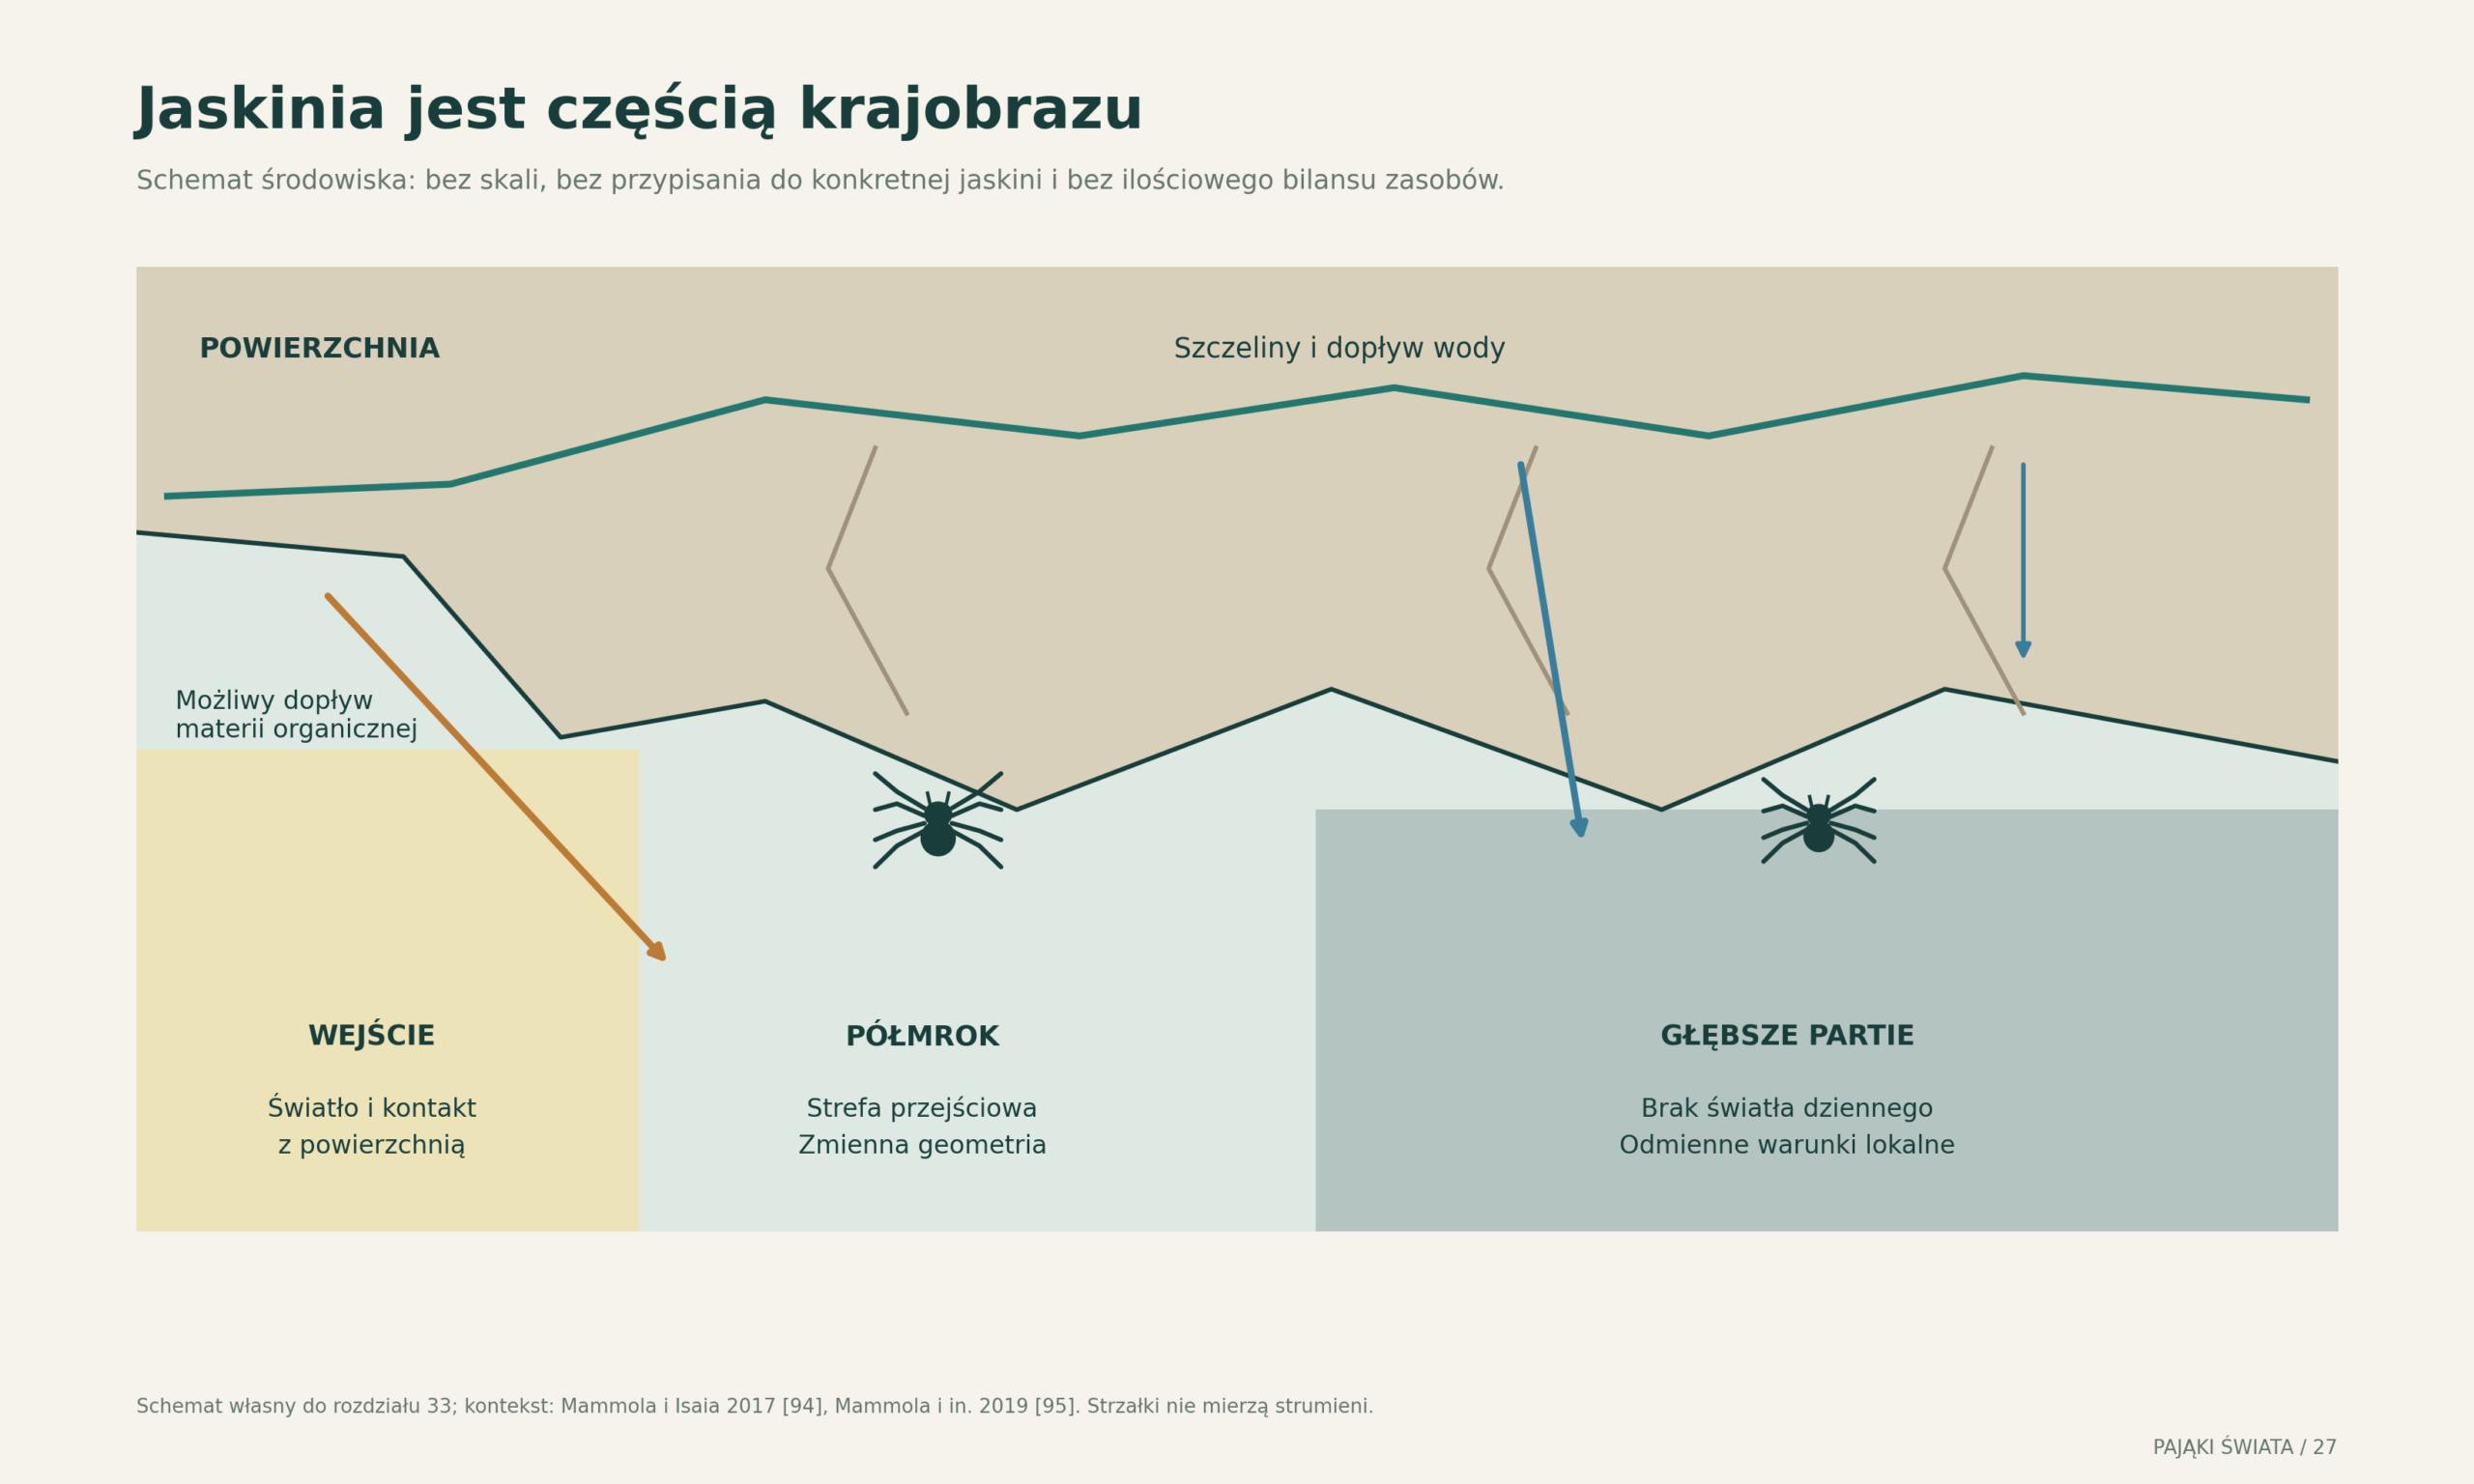
Stabilny mikroklimat a tolerancja zmian
Mammola i współautorzy przebadali 11 gatunków Troglohyphantes z zachodnich Alp, łącząc eksperymenty fizjologiczne z cechami morfologicznymi i rozmieszczeniem. Silniejszej specjalizacji podziemnej towarzyszyła w analizie węższa tolerancja termiczna. Badanie wspierało powiązanie małej zmienności temperatury środowiska z wrażliwością na jej zmianę. [95]
Nie oznacza to, że każda jaskinia ociepli się jednakowo ani że można wyznaczyć wspólną granicę przeżycia wszystkich pająków podziemnych. Wynik doświadczenia zależy również od tempa zmiany temperatury i przyjętej definicji reakcji. Laboratorium odpowiada na kontrolowane pytanie fizjologiczne; prognoza dla stanowiska wymaga jeszcze danych o lokalnym klimacie i hydrologii.
Ochrona zaczyna się nad jaskinią
Z ochronnego punktu widzenia użyteczne jest rozdzielenie wnętrza jaskini od obszaru, który wpływa na jej warunki. Woda może dopływać z terenu poza wejściem, a zmiana użytkowania powierzchni może zmienić jej ilość i jakość. Monitoring powinien więc łączyć dane o zwierzętach z opisem źródeł zaburzeń. To wniosek wynikający z traktowania jaskini jako części krajobrazu, a nie izolowanej komory.
Raport ze stanowiska powinien wskazywać sposób obserwacji, sezon, kontrolowaną część obiektu i ograniczenia dostępu. Zapis „nie znaleziono pająków” po krótkiej wizycie nie ma tej samej wartości co powtarzane badanie tych samych powierzchni. Dla bardzo małej populacji szczególne znaczenie ma również to, czy pobieranie okazów jest proporcjonalne do celu badania. Dokumentacja nie powinna sama niepotrzebnie zwiększać presji na miejsce, którego trwałość chce ocenić.
34 Pająki w sieci zależności: pokarm, konkurencja i parazytoidy
Drapieżnik może być jednocześnie gospodarzem i ofiarą
Określenie pająków jako regulatorów liczebności owadów jest użyteczne, lecz opisuje tylko część ich roli. Ten sam osobnik może chwytać roślinożerców, zjadać inne drapieżniki, konkurować o miejsce na sieć i stać się pokarmem większego zwierzęcia. Z punktu widzenia sieci troficznej nie zajmuje zatem jednej niezmiennej pozycji opisanej wyłącznie etykietą „pożyteczny”.
Relacja zmienia się również między stadiami życia. Młody pająk i duża samica mogą korzystać z innych rozmiarów ofiar i innych fragmentów roślinności. Jeśli w analizie połączy się je w jedną kategorię, można przeoczyć podział zasobów. Analogicznie nie każda zjedzona ofiara ma taki sam udział w budżecie energetycznym: liczbę zdobyczy trzeba odróżnić od ich masy oraz wartości odżywczej.
Kiedy budowniczy pracuje na korzyść innego organizmu
U niektórych błonkówek larwa rozwija się na pająku, a przed zakończeniem rozwoju gospodarz zmienia budowaną sieć. Takasuka i współautorzy badali układ Reclinervellus nielseni i Cyclosa argenteoalba. Zmodyfikowana konstrukcja wykorzystywała elementy zachowania znanego z sieci spoczynkowych pająka i zapewniała podparcie kokonowi parazytoida. To przykład przejęcia istniejącego programu zachowania, a nie nauczenia pająka zupełnie nowej techniki konstrukcyjnej. [97]
Parazytoid różni się od typowego pasożyta tym, że jego rozwój ostatecznie prowadzi do śmierci gospodarza. W tym przypadku opłacalność zmiany sieci należy oceniać z perspektywy rozwijającej się błonkówki. Budowla, która wygląda na „ulepszoną”, może nie zwiększać dostępu pająka do pokarmu ani jego szans rozrodu.
Kloss i współautorzy stwierdzili u badanych pająków Cyclosa z przekształconym zachowaniem podwyższony poziom 20-hydroksyekdyzonu względem porównywanych grup. Wynik wiąże manipulację z układem hormonalnym związanym z linieniem. Nie dowodzi jednak jednego wspólnego mechanizmu dla wszystkich parazytoidów pająków. Korelacja fizjologiczna, eksperymentalne wywołanie reakcji i wykazanie źródła cząsteczki są odrębnymi etapami wyjaśnienia. [96]
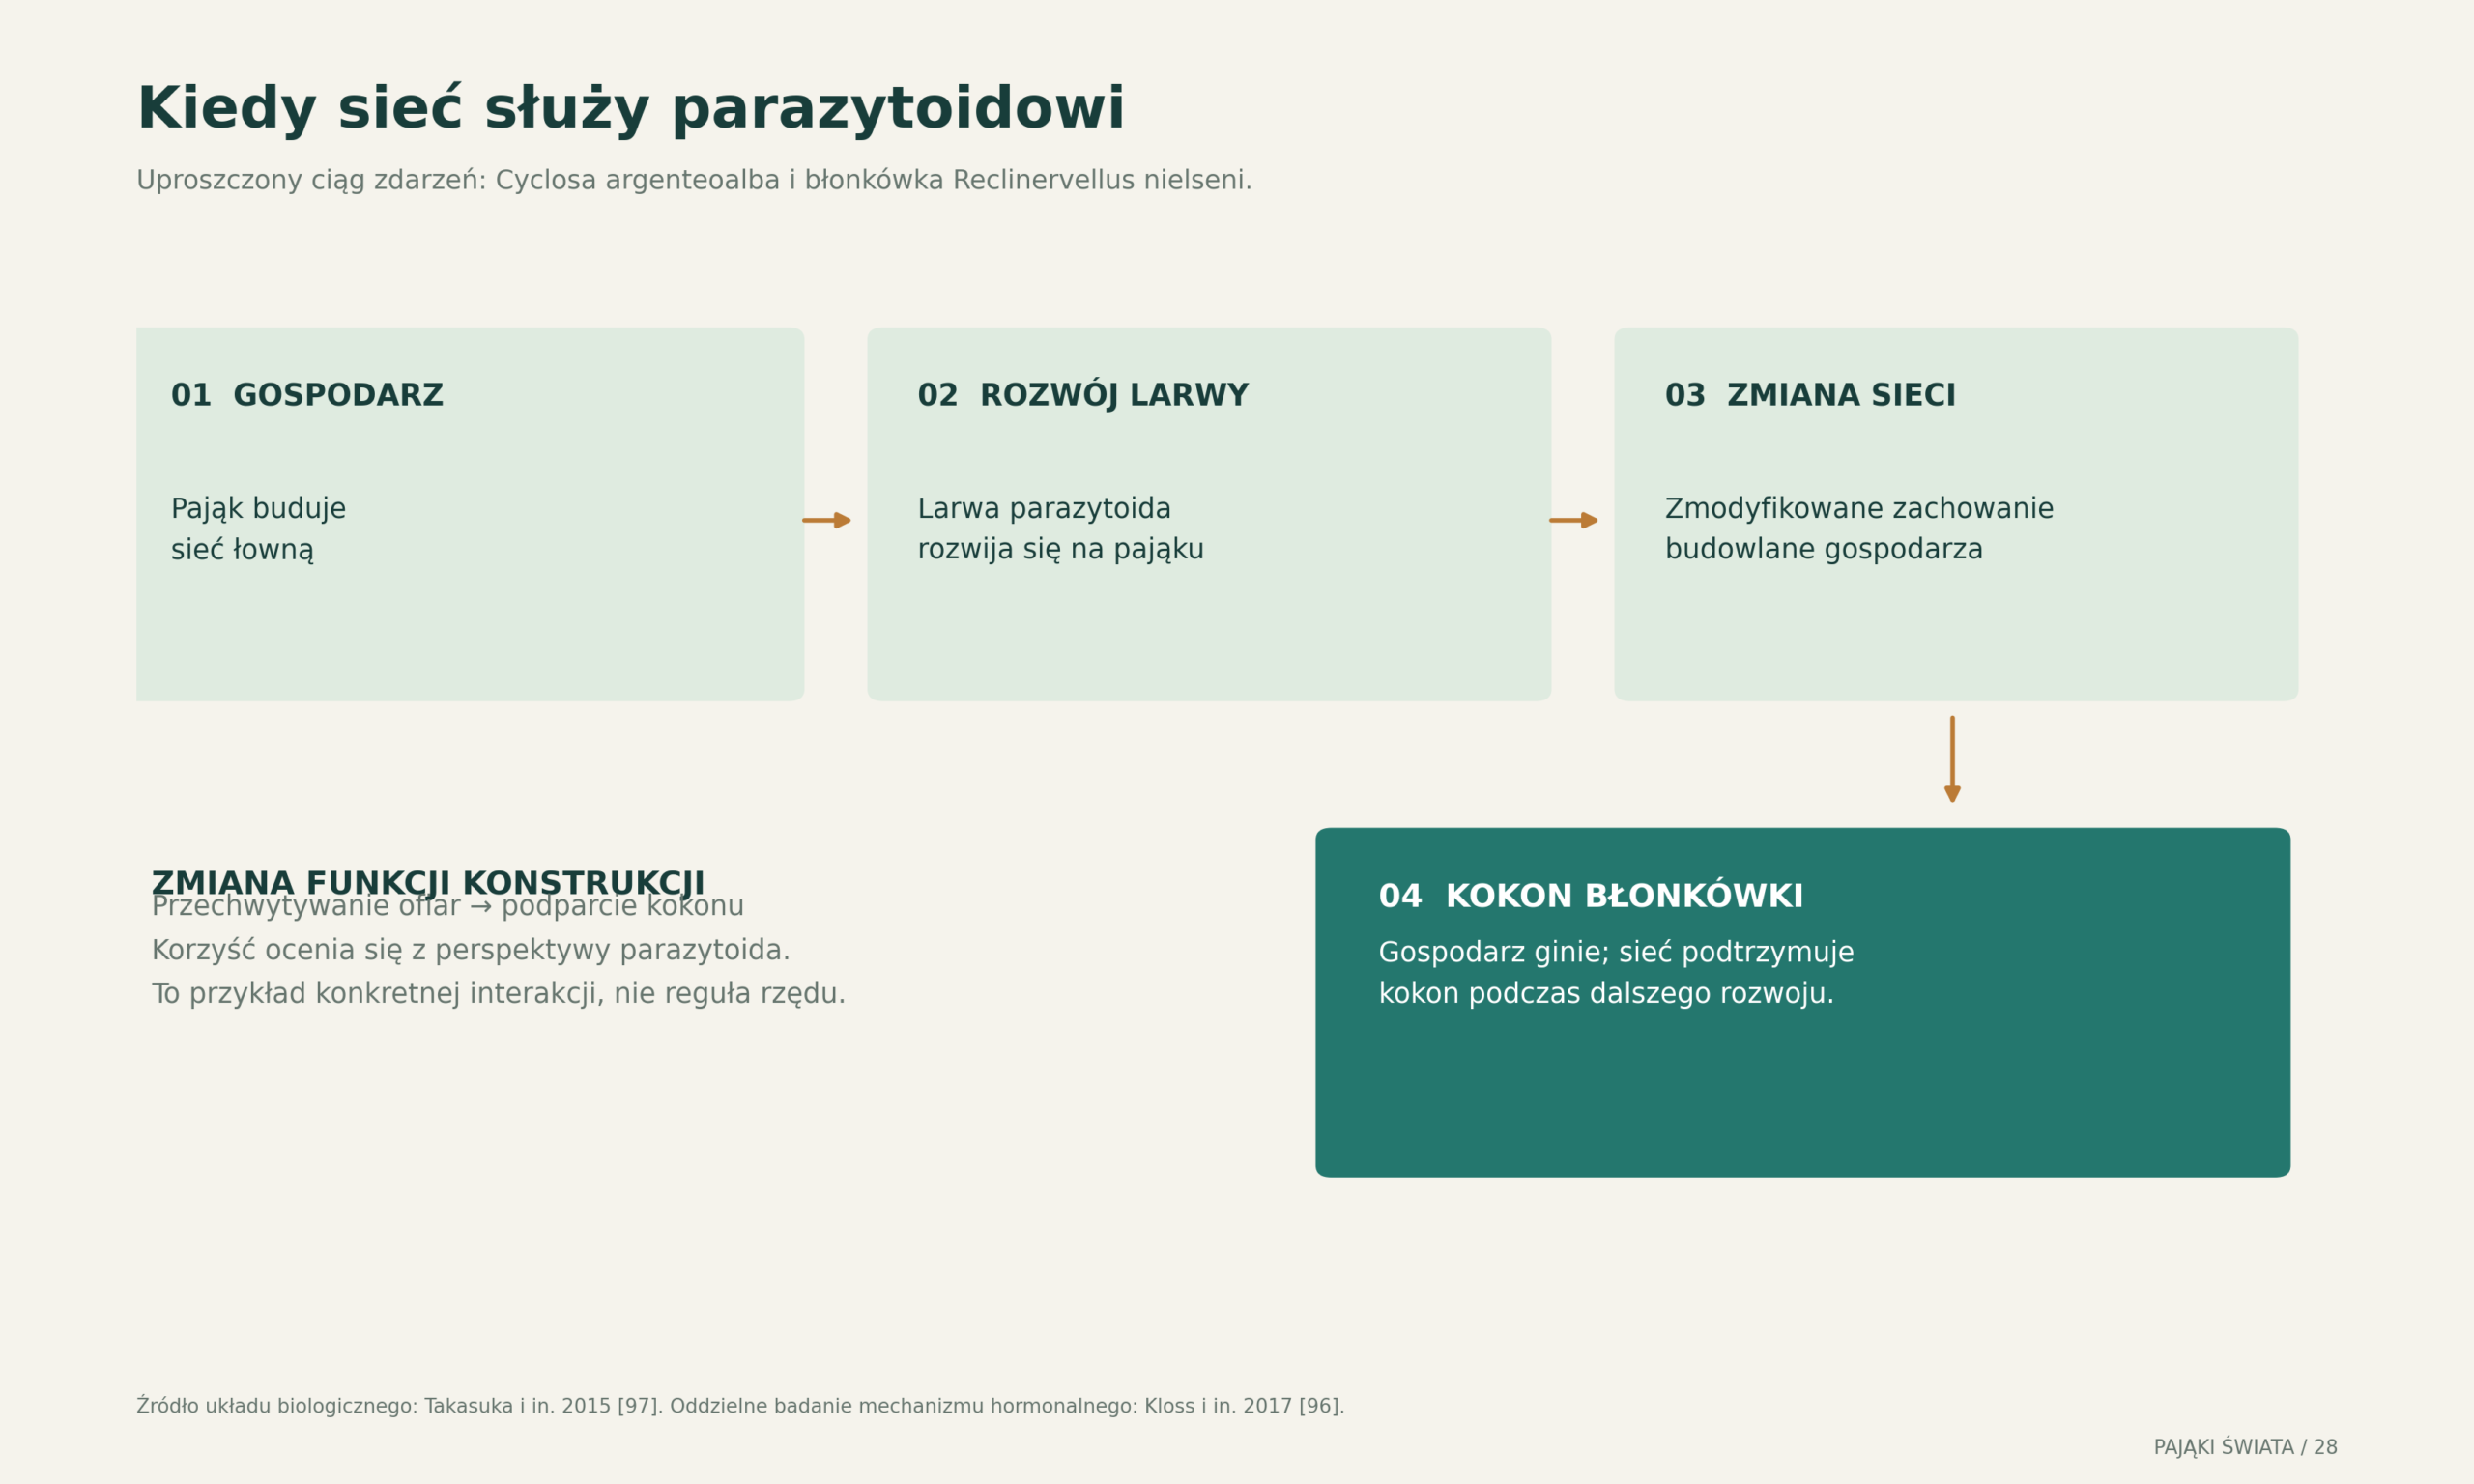
Dieta roślinna jako wyjątek, który precyzuje regułę
Przypadek Bagheera kiplingi pokazuje, że opis rzędu jako drapieżnego nie powinien wykluczać wyjątków. U tego skakuna wykazano wykorzystywanie ciałek pokarmowych roślin i dominację składników roślinnych w badanej diecie. Znaczenie mają tu zarówno obserwacje żerowania, jak i niezależna analiza izotopowa. Sporadyczne picie nektaru i dieta z przewagą pokarmu roślinnego to różne zjawiska. [17]
Warto także oddzielić „co pająk potrafi zjeść” od „z czego zwykle korzysta”. Próba laboratoryjna z jedną dostępną ofiarą może wykazać możliwość jej spożycia, ale nie preferencję w naturalnym środowisku. Preferencja wymaga wyboru albo porównania użytkowania zasobu z jego dostępnością. Z kolei zawartość przewodu pokarmowego daje obraz innego przedziału czasu niż skład izotopowy tkanek.
Co to oznacza dla oceny korzyści ekologicznych
W rolnictwie sensownym pytaniem jest efekt końcowy w danych warunkach: presja na konkretnych szkodnikach, uszkodzenia roślin i plon. Sama liczba pająków nie rozstrzyga o wyniku. Jeżeli większej liczebności drapieżników towarzyszy zmiana roślinności lub sposobu gospodarowania, należy rozważyć wszystkie te czynniki. Przyczynowość najlepiej oceniać za pomocą odpowiednio zaplanowanego porównania, a nie pojedynczej obserwacji pola.
Sieć zależności jest też argumentem za zachowaniem wielu miar wyniku. Zabieg może sprzyjać pospolitemu łowcy, a jednocześnie usuwać siedlisko mniej licznego specjalisty. Ocena skuteczności produkcyjnej i ocena ochrony różnorodności są wtedy powiązane, ale nie tożsame. Ich wspólne opisanie pozwala wskazać rzeczywisty kompromis zamiast sprowadzać cały zespół do sumy osobników.
35 Biomechanika: jak porusza się ośmionogi drapieżnik
Ciśnienie, mięśnie i geometria odnóża
Pająki stanowią interesujący model ruchu, ponieważ prostowanie ważnych stawów odnóży wykorzystuje ciśnienie hemolimfy. Nie oznacza to jednak, że noga działa jak pojedynczy przewód pompowany w jednym kierunku. Ruch całego ciała zależy od współpracy stawów, mięśni, ciśnienia oraz punktów podparcia. Każda para nóg może uczestniczyć w zadaniu w odmienny sposób.
Weihmann i współautorzy badali siły podczas przyspieszonej ucieczki dużego pająka Ancylometes concolor. Ich wyniki podważały prostą tezę, że hydrauliczne prostowanie musi być głównym źródłem napędu tylnych nóg. To ważne rozróżnienie: mechanizm umożliwiający zmianę kąta w stawie nie musi wyjaśniać większości siły przesuwającej ciało. [99]
Na schemacie pokazano tylko zależność funkcjonalną między ciśnieniem, zginaniem i pozycją stawu. Strzałki nie kodują ciśnienia, wielkości sił ani ich udziału procentowego. Właściwy model biomechaniczny wymagałby odtworzenia geometrii ciała i pomiaru kontaktu z podłożem w czasie.
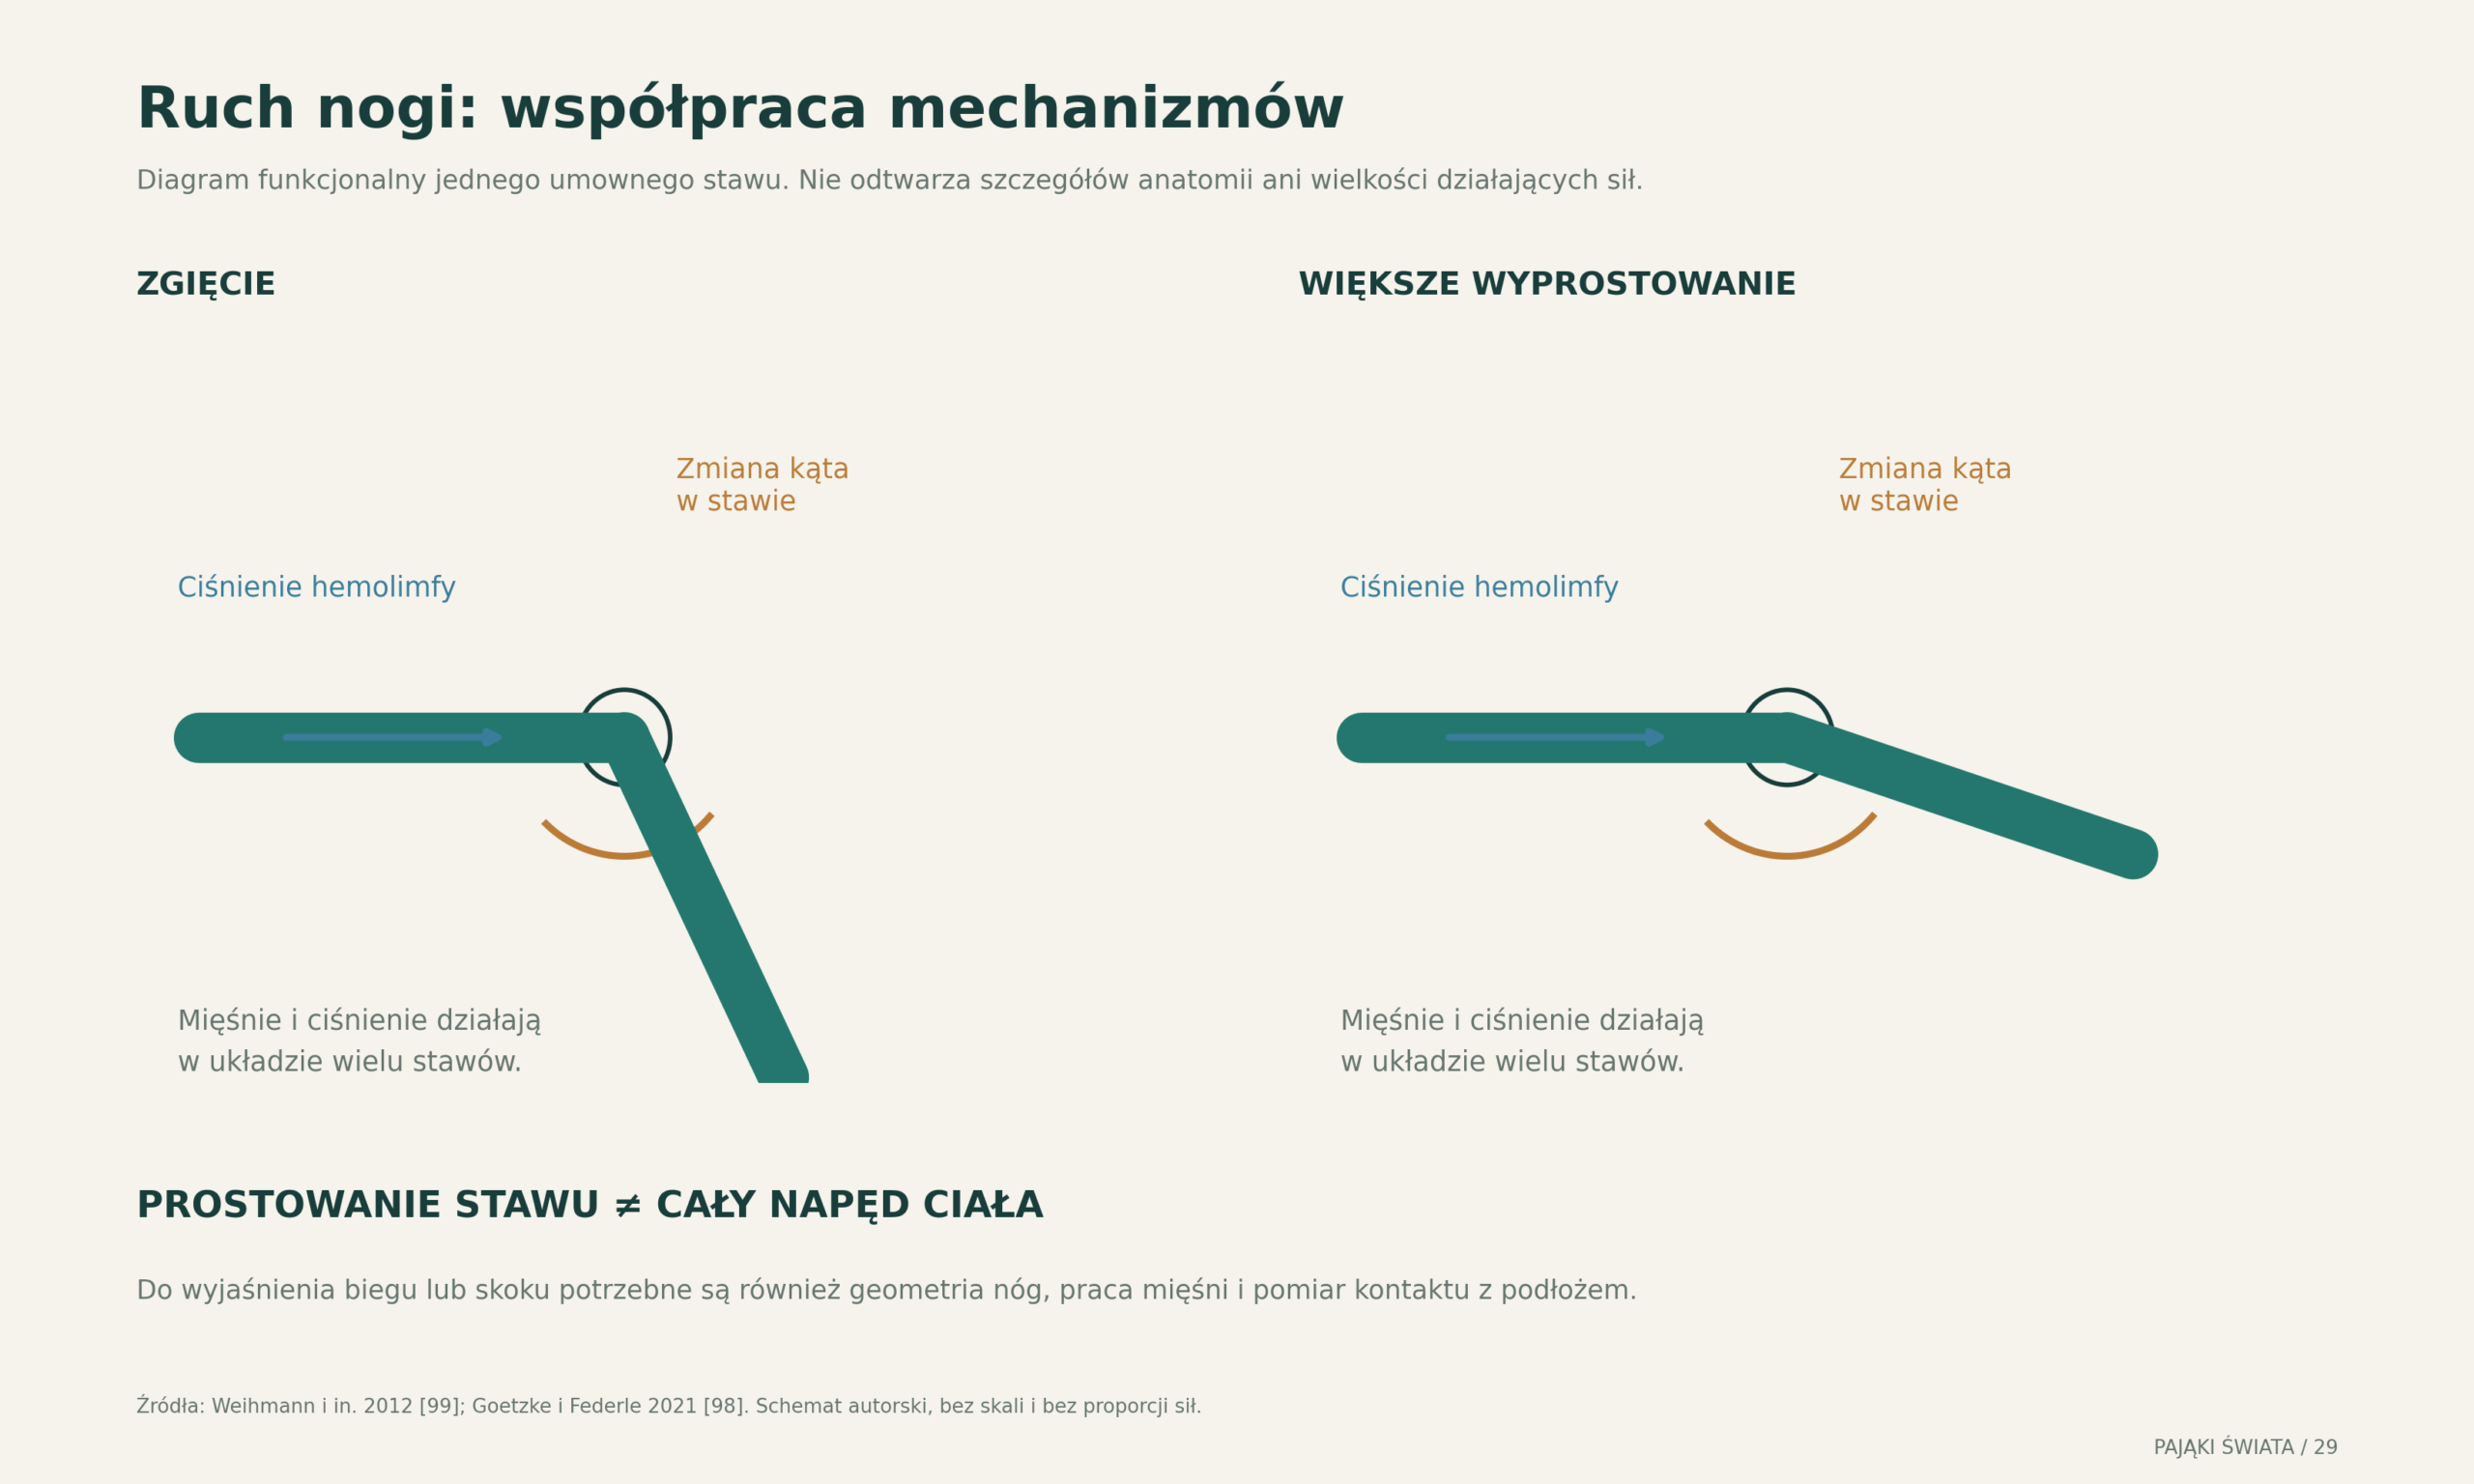
Skok zaczyna się od kontaktu z powierzchnią
U skakunów ważne jest nie tylko przyspieszenie, lecz również uniknięcie poślizgu. Goetzke i Federle porównali Pseudeuophrys lanigera i gatunek opisany w pracy jako Sitticus pubescens. Badane gatunki różniły się udziałem trzeciej i czwartej pary nóg w odbiciu. Analiza kontaktu stóp i przyczepności pokazała, że wspólną czynność można realizować odmienną konfiguracją odnóży. [98]
Wyniku nie należy zamieniać na regułę „wszystkie skakuny skaczą z tej samej pary nóg”. O charakterze skoku decydują też punkt docelowy i orientacja powierzchni. Odbicie ku ofierze, przemieszczenie między liśćmi i reakcja ucieczki są odmiennymi zadaniami. Nawet u jednego gatunku warto analizować je oddzielnie.
Co naprawdę oznacza rekord skoku
Porównanie metrów faworyzuje większe organizmy, natomiast długość skoku podzielona przez długość ciała odpowiada na inne pytanie. Jeszcze inną miarą jest prędkość startowa lub przyspieszenie. Bez podania definicji rekord może więc być poprawny arytmetycznie, ale nieporównywalny z innym rekordem.
Do rzetelnego opisu potrzeba skali obrazu, znanego odstępu między klatkami i odróżnienia ruchu w płaszczyźnie od ruchu przestrzennego. Film wykonany z jednego kierunku może skracać obserwowaną trajektorię. Gdy kamera nie obejmuje miejsca odbicia i lądowania, oszacowanie odległości jest szczególnie niepewne. Z tych powodów efektowne nagranie nie zawsze nadaje się do pomiaru.
Dlaczego sam kształt nogi nie wystarcza
Noga długa względem ciała może zmieniać zasięg kontaktu i geometrię ruchu, ale jej znaczenie zależy od masy, proporcji segmentów i sposobu użycia. Wniosek „dłuższa noga oznacza szybszy bieg” wymaga danych. Podobnie gęste włoski na stopie sugerują potrzebę zbadania kontaktu, lecz fotografia nie wyznacza siły przylegania.
W bioinspiracji najbardziej użyteczna jest zasada działania: współpraca mechanizmów, dopasowanie do powierzchni i kontrola ruchu przy małej skali. Kopiowanie zewnętrznej sylwetki bez zrozumienia obciążeń może dać urządzenie wyglądające jak pająk, lecz działające zupełnie inaczej. Ta różnica oddziela ilustrację inspiracji od rzeczywistego rozwiązania inżynierskiego.
36 Barwy, czerń i sygnały: światło w biologii pająków
Kolor jest wynikiem spotkania powierzchni ze światłem
Barwa widziana przez człowieka zależy od oświetlenia, właściwości powierzchni i naszego układu wzrokowego. Fotografia dodatkowo wprowadza ustawienia aparatu oraz obróbkę. Dlatego określenie pająka jako „niebieskiego” nie zastępuje pomiaru widma odbicia. Nie mówi też samo w sobie, jak widzi go partner lub drapieżnik.
Pigmenty pochłaniają część światła, natomiast struktura powierzchni może zmieniać jego rozpraszanie i odbicie. Oba mechanizmy mogą współdziałać. Przy badaniu należy więc odróżnić pytanie o fizyczne powstawanie koloru od pytania o jego funkcję biologiczną. Wykazanie niezwykłej nanostruktury nie jest jeszcze wykazaniem preferencji samicy wobec danego samca.
Superczerń skakunów: liczby wymagają geometrii pomiaru
McCoy i współautorzy zmierzyli bardzo niskie odbicie ciemnych obszarów samców dwóch Maratus: 0,44% u M. speciosus i 0,35% u M. karrie. Porównywany skakun Cylistella sp. miał wartość 4,61%. Pomiary dotyczyły określonej geometrii zbierania światła, z kątem 30°, oraz zakresu 420–700 nm. Autorzy połączyli obrazowanie z modelowaniem optycznym, wskazując rolę mikrostruktur i pochłaniającego pigmentu. [100]
Wykres zachowuje wszystkie trzy wartości na wspólnej skali od zera. Nie przedstawia całkowitej jasności pająka ani średniej dla wszystkich osobników rodzaju. Brak słupków błędu oznacza, że nie odtworzono tutaj zmienności populacyjnej. Czerń wzmacniająca kontrast z sąsiednią barwną powierzchnią jest hipotezą funkcjonalną, którą należy odróżnić od samego wyniku pomiaru odbicia.
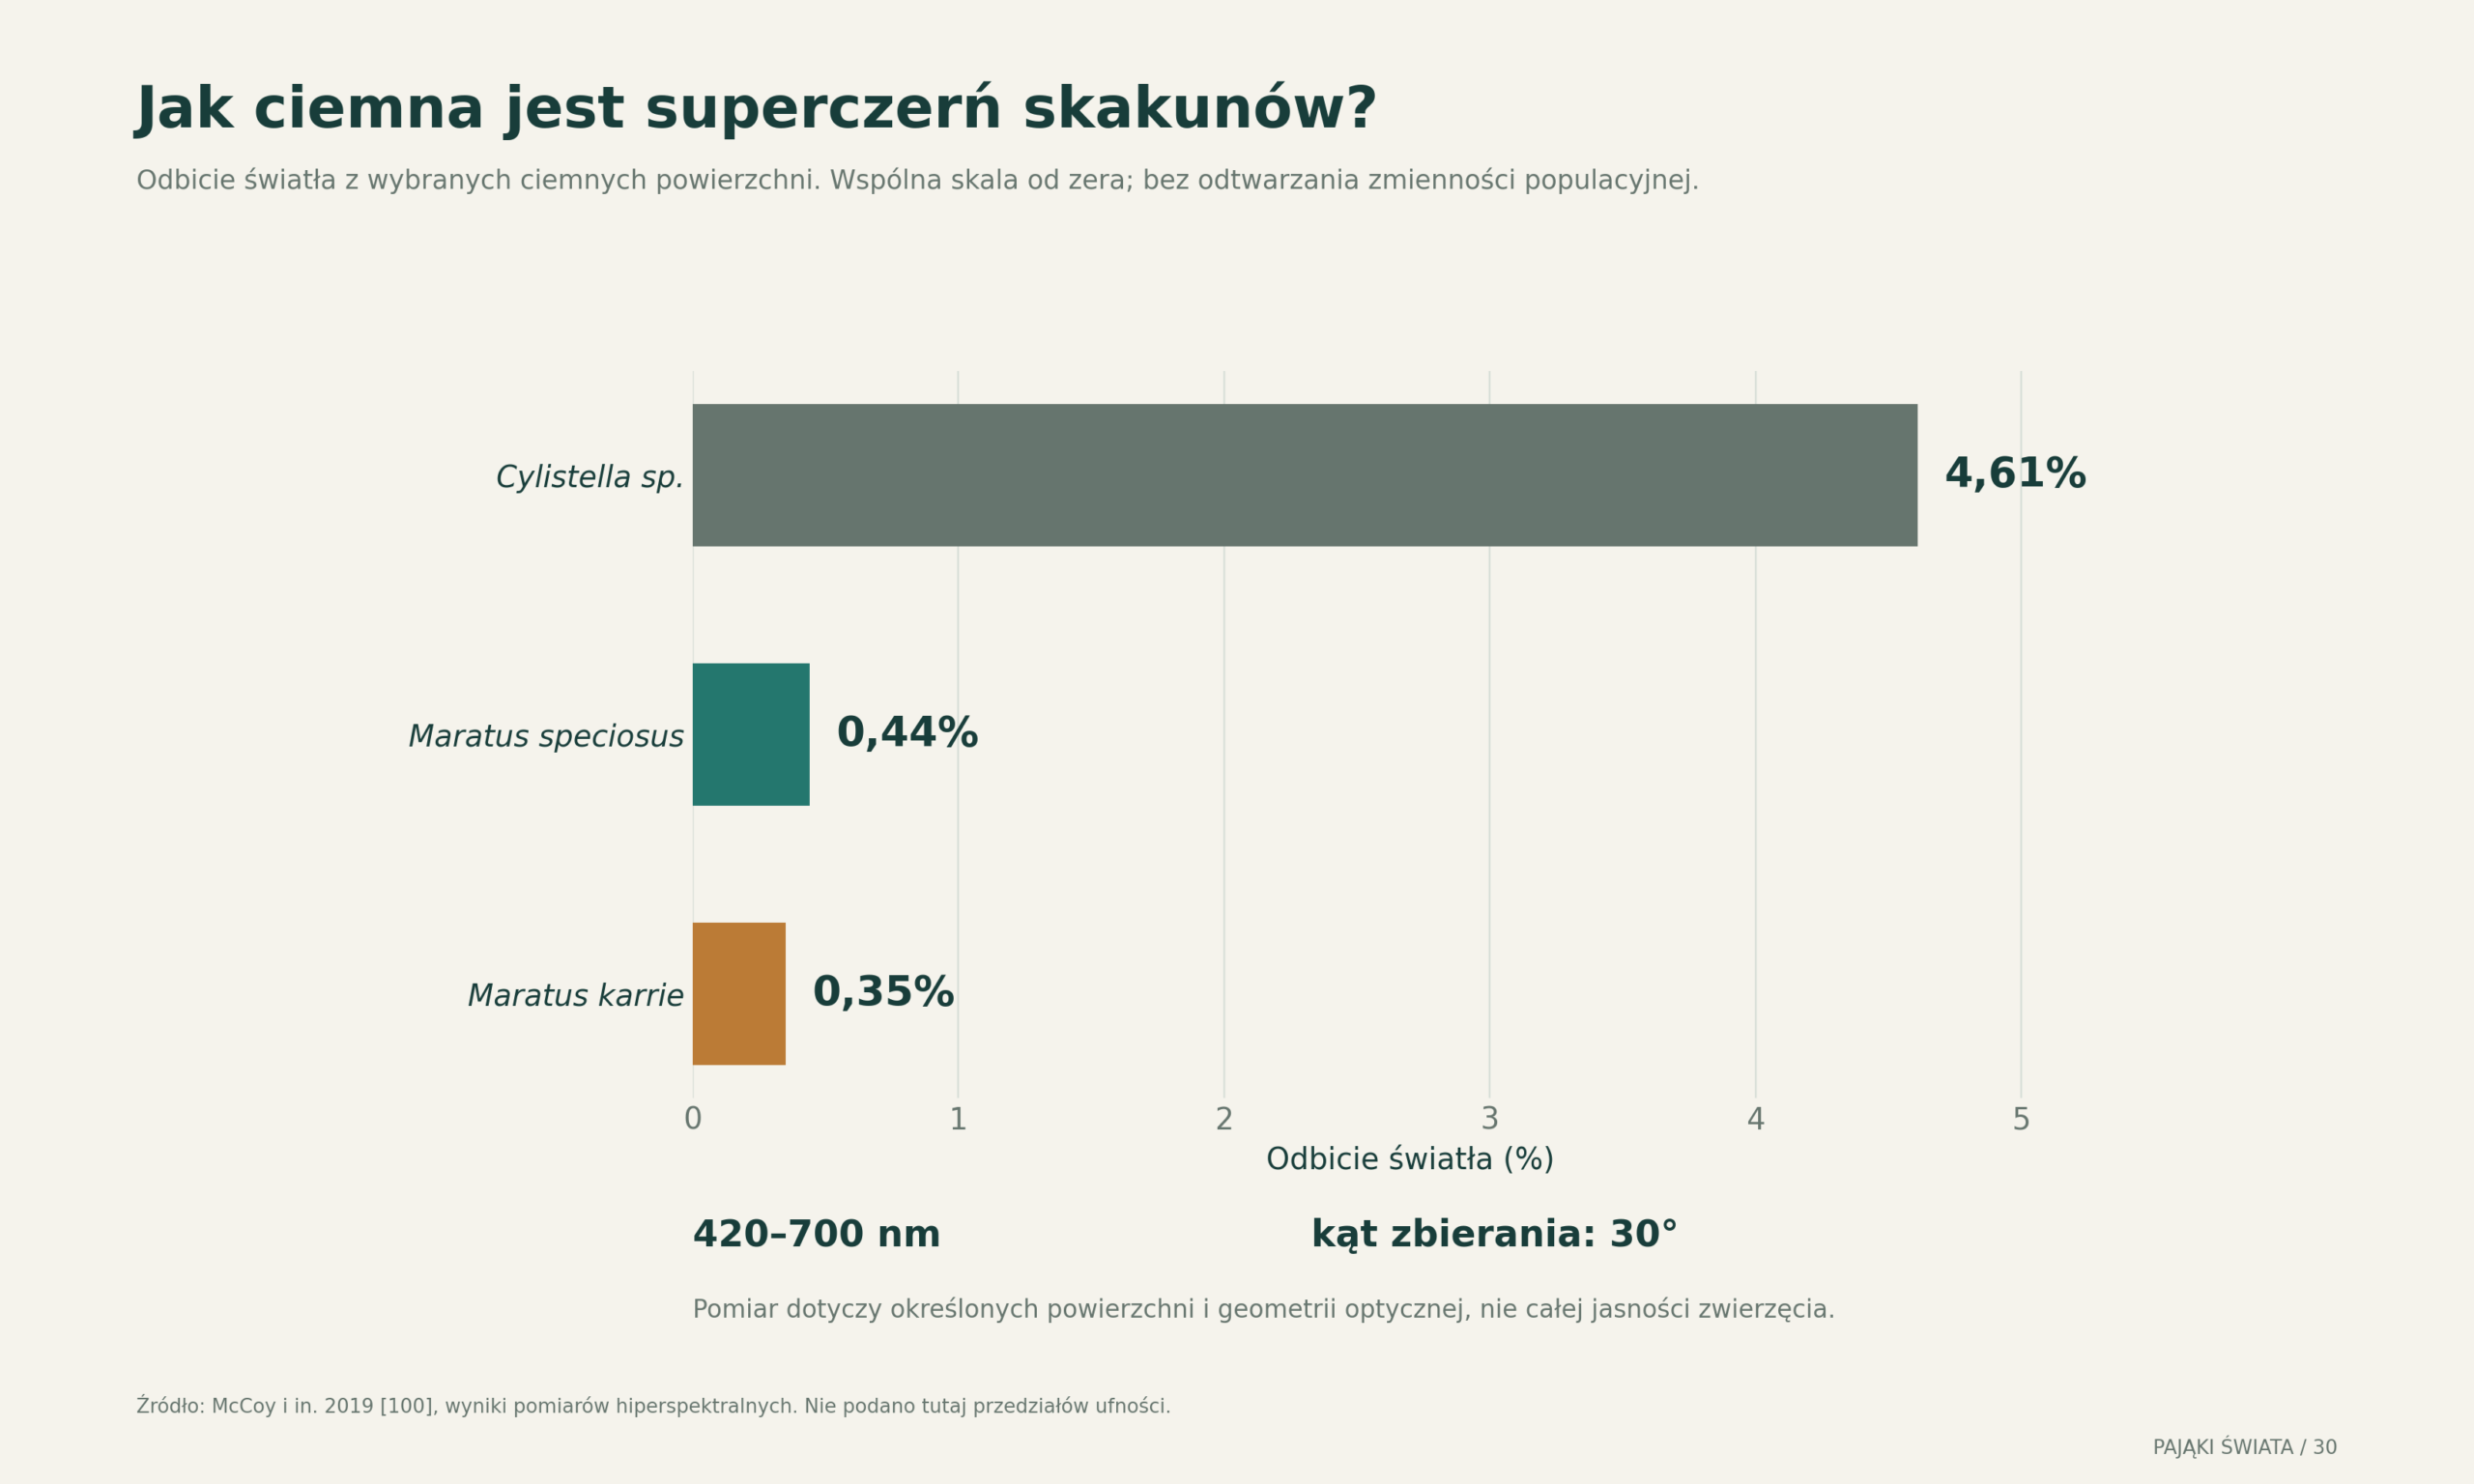
Ten sam błękit może powstać różnymi sposobami
Hsiung i współautorzy porównali niebieskie struktury u ptaszników. Odmienne nanostruktury wytwarzały podobną barwę z maksimum odbicia w wąskim obszarze około 450 nm. To interesujący przykład zbieżności efektu optycznego mimo różnic budowy. Autorzy rozważali przy tym, czy typowe wyjaśnienie przez dobór płciowy pasuje do badanej grupy. [101]
Nie należy przenosić wniosku z ptaszników na barwne skakuny ani odwrotnie. Funkcja cechy wymaga wiedzy o zachowaniu, układzie wzrokowym i środowisku. Podobny odcień na dwóch zdjęciach nie dowodzi wspólnego mechanizmu jego produkcji. Także nazwa „barwa strukturalna” nie oznacza jednego uniwersalnego układu warstw.
Zaloty są czymś więcej niż pokazem kolorów
Girard i współautorzy dokumentowali u Maratus volans sygnały wzrokowe oraz drgania towarzyszące zalotom. Nagrania wideo i pomiar wibrometryczny pozwoliły opisać elementy niewidoczne na fotografii. Samiec przekazuje więc informację przez kilka kanałów, a barwna powierzchnia stanowi część szerszego zachowania. [102]
W interpretacji takich pokazów trzeba rozdzielić obecność sygnału i jego skuteczność. Opis ruchu wykazuje, że ruch występuje. Aby stwierdzić, że konkretna cecha zwiększa powodzenie rozrodu, potrzebne jest porównanie odpowiedzi odbiorcy, najlepiej przy kontrolowanej zmianie tej cechy. To samo dotyczy kamuflażu: podobieństwo widoczne dla człowieka nie dowodzi jeszcze spadku ryzyka wykrycia przez naturalnego wroga.
37 Dodatkowe studia krajowe: pięć perspektyw na niepełny atlas
Kenia: dwa wykazy i dwie definicje sumy
Kioko i współautorzy opublikowali w 2021 roku zestawienie 805 gatunków i podgatunków znanych z Kenii do końca 2018 roku. W tej sumie uwzględniono 57 rodzin; najliczniejsze były Salticidae i Linyphiidae, odpowiednio z 160 i 110 pozycjami. Publikacja porządkowała także historyczne kombinacje nazw i dane lokalizacyjne. [106]
Zbiór National Museums of Kenya wydany w 2022 roku przedstawiał natomiast 801 gatunków w 58 rodzinach, a jego opis wskazywał stan danych do maja 2022 roku. Salticidae liczyły 163 gatunki, Linyphiidae 109; 320 gatunków oznaczono jako endemiczne dla Kenii. Metadane wskazywały również brak rekordów w dziewięciu jednostkach administracyjnych. Są to cechy tego zbioru i jego zasięgu dokumentacyjnego, nie współczesny spis wszystkich populacji. [107]
Różnica 805 i 801 nie dowodzi zaniku czterech gatunków. Pierwsza suma jawnie obejmuje podgatunki, a opracowania mogą też różnić się oceną nazw i rekordów. Wykres celowo rozdziela oba zestawy zamiast łączyć je linią trendu. Brak rekordu w regionie nie oznacza, że nie żyją tam pająki; opisuje granicę dokumentacji.
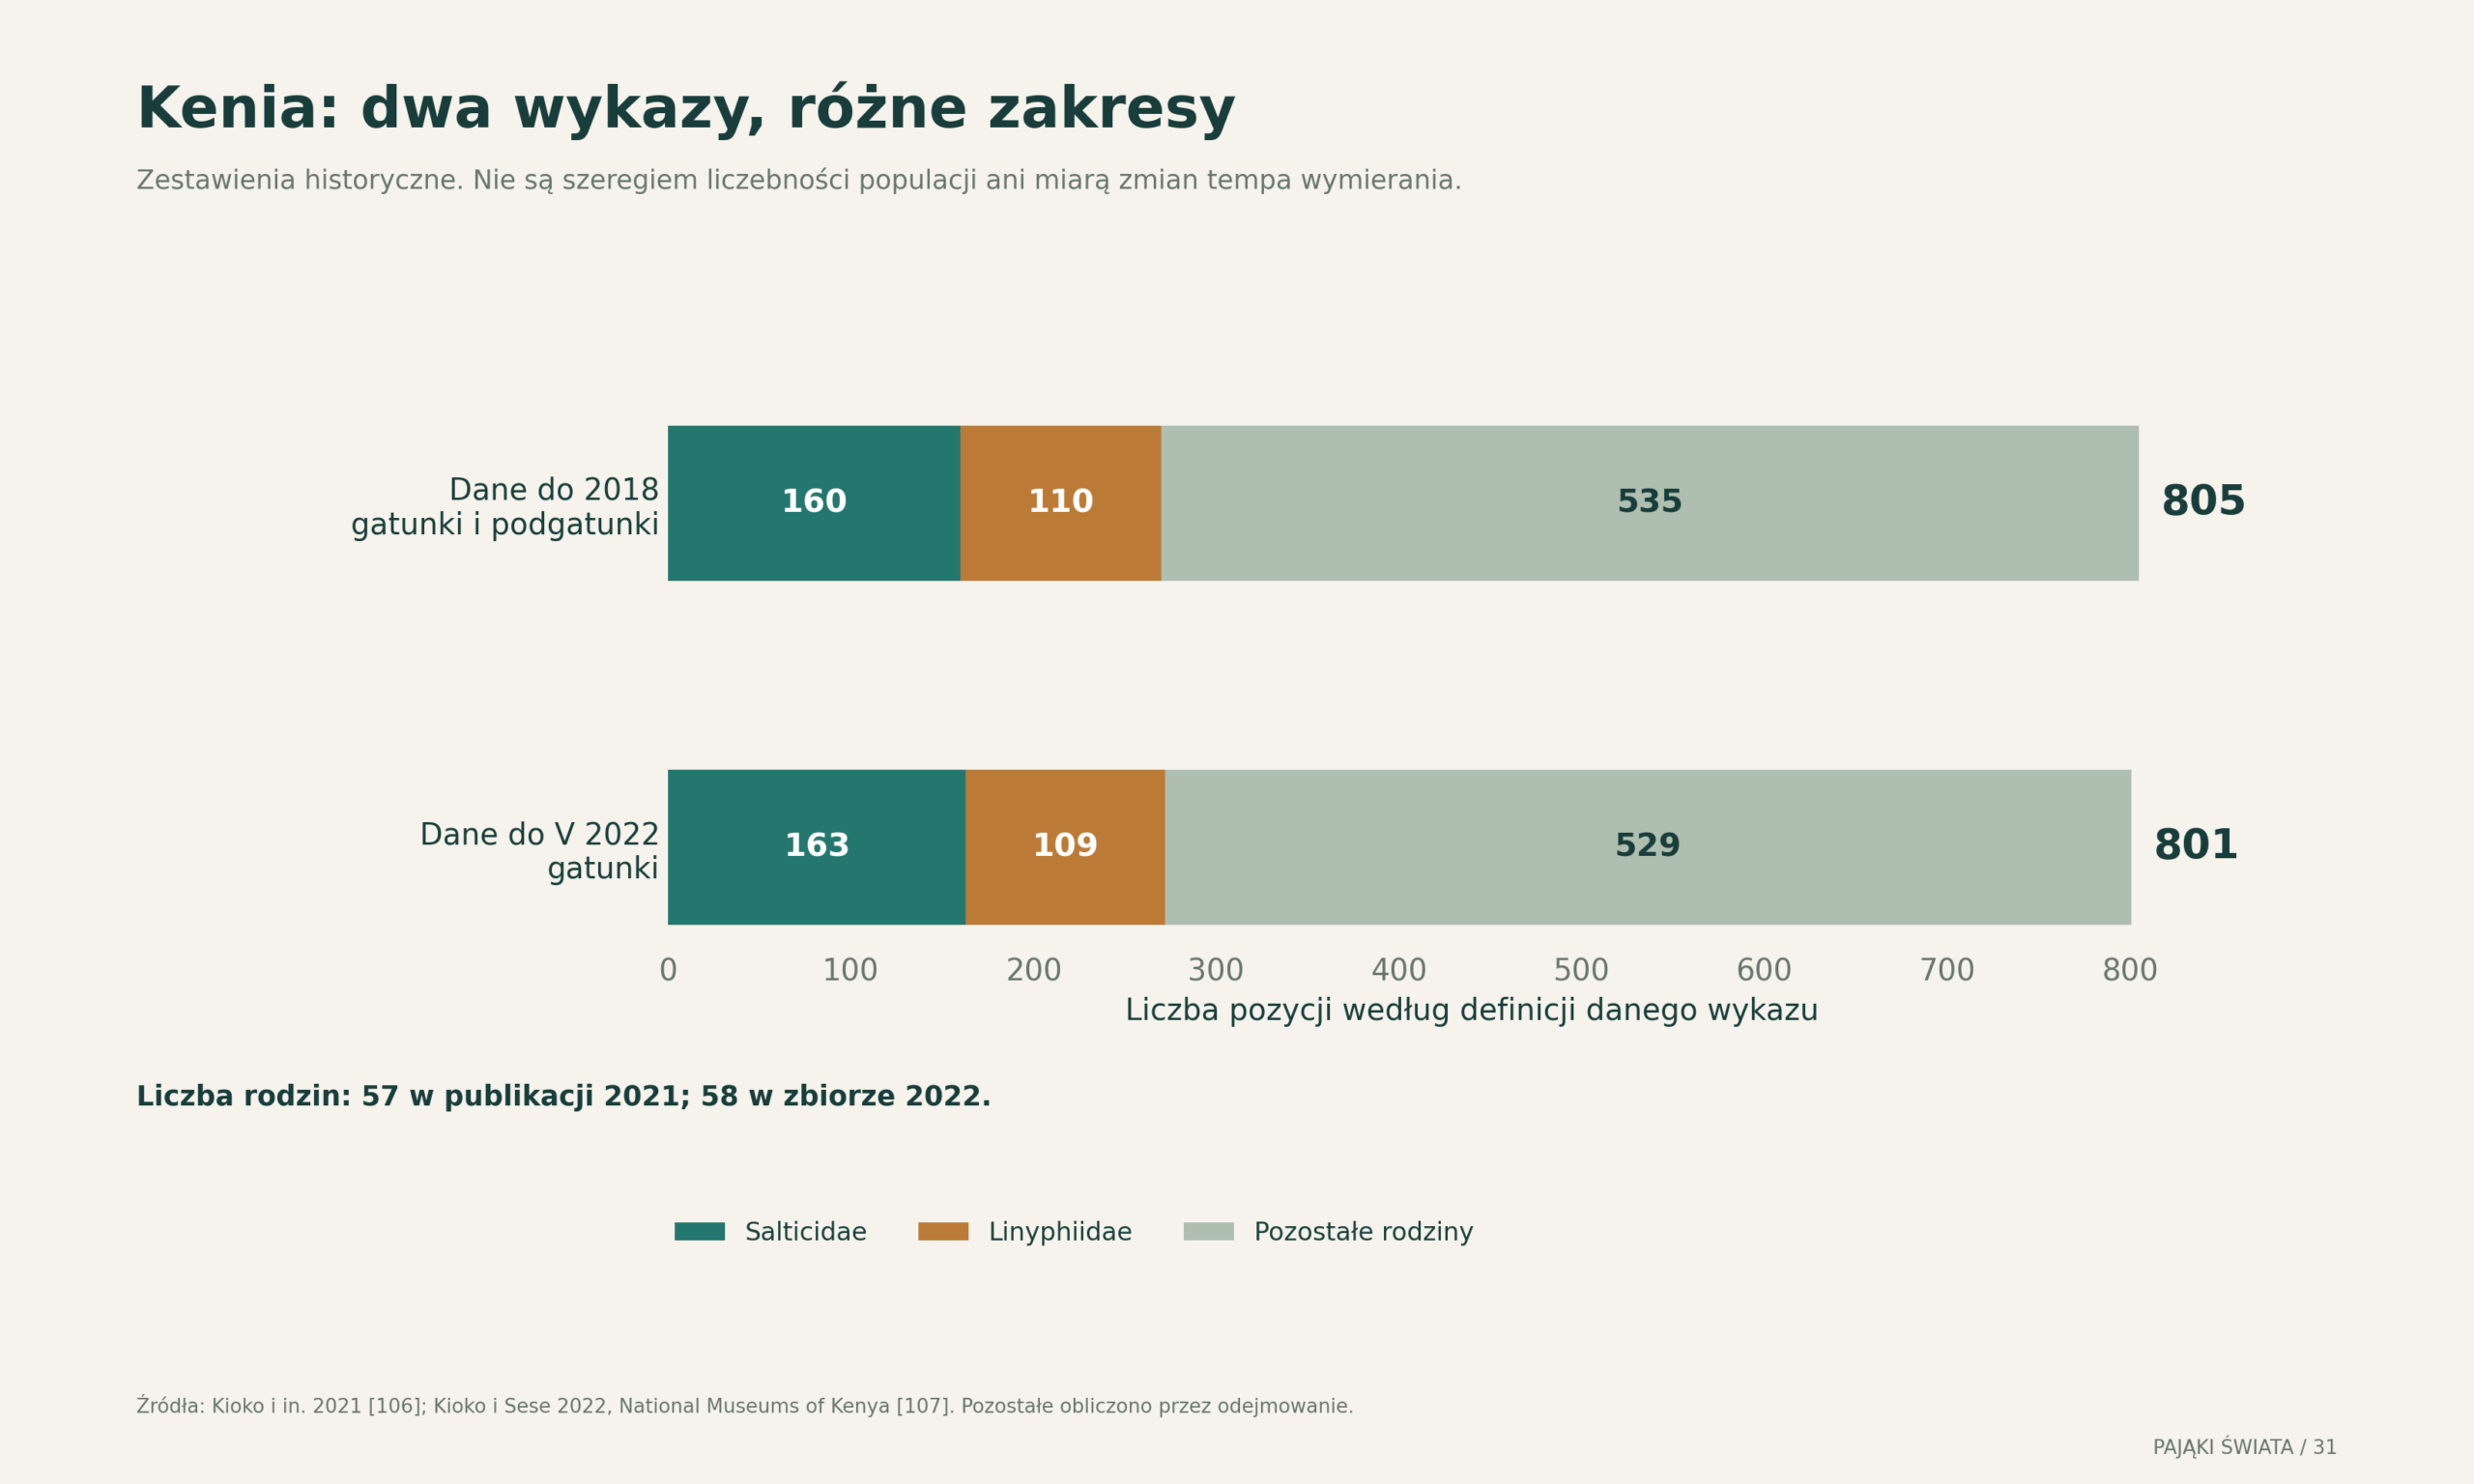
Ekwador: jak jedna rewizja odsłania lokalną różnorodność
W rewizji rodzaju Linothele z Ekwadoru opublikowanej w 2023 roku opisano 38 nowych gatunków. Obszerna praca porządkowała materiał z różnych części kraju i traktowała Andy jako ważny kontekst różnicowania. Sama liczba nowych nazw nie jest tempem powstawania gatunków w jednym roku: dokumentuje wynik badań nad organizmami, które istniały przed publikacją. [112]
W 2024 roku Dupérré i Tapia opisali siedem nowych gatunków Paratropis z Ekwadoru. Ta druga praca dotyczy odmiennej grupy i innego zbioru okazów. Zestawienie obu artykułów ilustruje znaczenie rewizji taksonomicznych, ale nie jest kompletnym bilansem wszystkich ekwadorskich odkryć z lat 2023–2024. [103]
Z perspektywy ochrony ważny jest dalszy krok: ustalenie rzeczywistych zasięgów. Opis oparty na jednym lub kilku stanowiskach daje udokumentowane miejsca występowania, ale nie wyznacza automatycznie całego obszaru zajmowanego przez gatunek. Kolejne badania mogą rozszerzyć znany zasięg albo wykazać jego ograniczenie. Te dwa wyniki wymagają tak samo starannego zapisu wysiłku poszukiwawczego.

Iran: nowe opisy i korekty starych informacji
Dwunasta część serii o pająkach Iranu, opublikowana przez Zamani i współautorów w 2025 roku, obejmowała dane z 18 rodzin. Autorzy opisali 11 nowych gatunków ze wschodniego Iranu, podali siedem pierwszych krajowych stwierdzeń gatunków i odrzucili wcześniejszy rekord Steatoda nobilis. Uzupełnili także informacje prowincjonalne. [104]
Przykład jest wartościowy, ponieważ pokazuje trzy równoległe działania: rozpoznawanie gatunków nieopisanych, rozszerzanie znanej geografii gatunków już nazwanych i usuwanie błędnych informacji. Dobra baza nie musi zatem wyłącznie rosnąć. Jej poprawa może polegać również na zmniejszeniu pozornej liczby stanowisk lub gatunków. W wykazie krajowym warto zapisywać nie tylko datę dodania rekordu, lecz także przyczynę jego późniejszej zmiany.
Iran nie został tu umieszczony w numerycznym rankingu z Europą. Taki ranking wymagałby jednolitego i aktualnego wykazu, zgodnego zakresu terytorialnego oraz jasno podanej reguły traktowania gatunków wątpliwych. Przykład konkretnego opracowania dostarcza mocniejszego dowodu postępu badań niż zgadywana liczba wszystkich gatunków.
Wietnam: porównanie siedlisk zamiast jednego krajowego wyniku
Do Thi Ha i współautorzy badali przez rok pająki aktywne przy powierzchni ziemi w trzech obszarach północnego Wietnamu: Cuc Phuong, Tam Dao i Cat Ba. W każdym porównano cztery typy siedlisk, wykorzystując pułapki glebowe. Siedliska o wielowarstwowej roślinności miały bogatszy skład i większą liczebność w odłowach niż siedliska o prostszej strukturze; skład zespołu Cat Ba różnił się od pozostałych obszarów. [105]
Wniosek dotyczy zastosowanej metody i badanych siedlisk. Pułapka glebowa rejestruje aktywność zwierząt w swoim otoczeniu, więc odłów nie jest prostym pomiarem wszystkich pająków na hektarze. Nie opisuje też całej fauny koron drzew. Mimo tego ograniczenia dobrze zaplanowane porównanie może wykryć różnice między siedliskami i wskazać, które dalsze pomiary warto wykonać.
Dla interpretacji przydatna jest dokumentacja struktury roślinności, a nie tylko etykieta „las”. Dwa miejsca nazwane lasem mogą różnić się piętrami roślin, stopniem odsłonięcia i historią użytkowania. Dzięki temu przykład wietnamski uzupełnia geografię krajową o bardziej bezpośrednią skalę funkcjonowania zespołu.
Chile: klucz regionalny ma własną historię
Aguilera i Casanueva w przeglądzie z 2005 roku zwracali uwagę na nieciągłość badań i brak odpowiednich narzędzi do rozpoznawania chilijskich pająków. Ich opracowanie zawierało klucz do wybranych rodzin Araneomorphae, z jawnymi wyłączeniami. Historyczna lista rodzin odzwierciedlała ówczesną klasyfikację. [108]
Taki tekst nadal może objaśniać historię badań i cechy używane w oznaczaniu. Nie powinien jednak być traktowany jako aktualny spis fauny. Zastosowanie starego klucza wymaga sprawdzenia zmian nazw i zakresu rodzin. Zastosowanie klucza z innego kontynentu wymaga dodatkowo upewnienia się, że w ogóle obejmuje on lokalne możliwości.
Pięć studiów krajowych obrazuje różne rodzaje wiedzy: historyczny wykaz, udostępniony zbiór danych, rewizję rodzaju, badanie ekologiczne i klucz identyfikacyjny. Każdy odpowiada na inne pytanie. Zebrane razem wzbogacają atlas bez pozornego sprowadzania wszystkich krajów do jednej, nieporównywalnej liczby.
38 Statystyka, którą można sprawdzić: trzy przykłady obliczeniowe
Niewykrycie a nieobecność
Modele zajęcia stanowisk rozdzielają rzeczywistą obecność gatunku od prawdopodobieństwa jego zauważenia. Klasyczna praca MacKenzie i współautorów pokazała, jak wykorzystywać powtarzane wizyty, gdy wykrywalność jest mniejsza od jedności. Oryginalne zastosowanie nie dotyczyło pająków; przywołujemy zasadę metody, a nie przenosimy na pająki tamtejszych oszacowań. [109]
Rozważmy własny przykład dydaktyczny. Gatunek jest stale obecny na stanowisku, a niezależna wizyta ma szansę wykrycia p. Po k wizytach prawdopodobieństwo co najmniej jednego wykrycia wynosi 1 − (1 − p)^k. Przy p = 0,2 daje to 20% po jednej wizycie, 67,2% po pięciu i około 89,3% po dziesięciu. Przy p = 0,5 pięć wizyt daje 96,9%. Są to obliczenia warunkowe, nie wyniki terenowego pomiaru pająków.
Wzór wymaga stałego p, niezależności wizyt i obecności gatunku w całym rozważanym okresie. W realnym terenie deszcz, pora dnia, stadium rozwoju i doświadczenie obserwatora mogą zmieniać wykrywalność. Jeśli osobniki znikają i ponownie zasiedlają miejsce, potrzebny jest model odpowiedni do takiej dynamiki. Krzywa na wykresie ilustruje zasadę, a nie wyznacza zalecanej liczby kontroli dla każdego projektu.
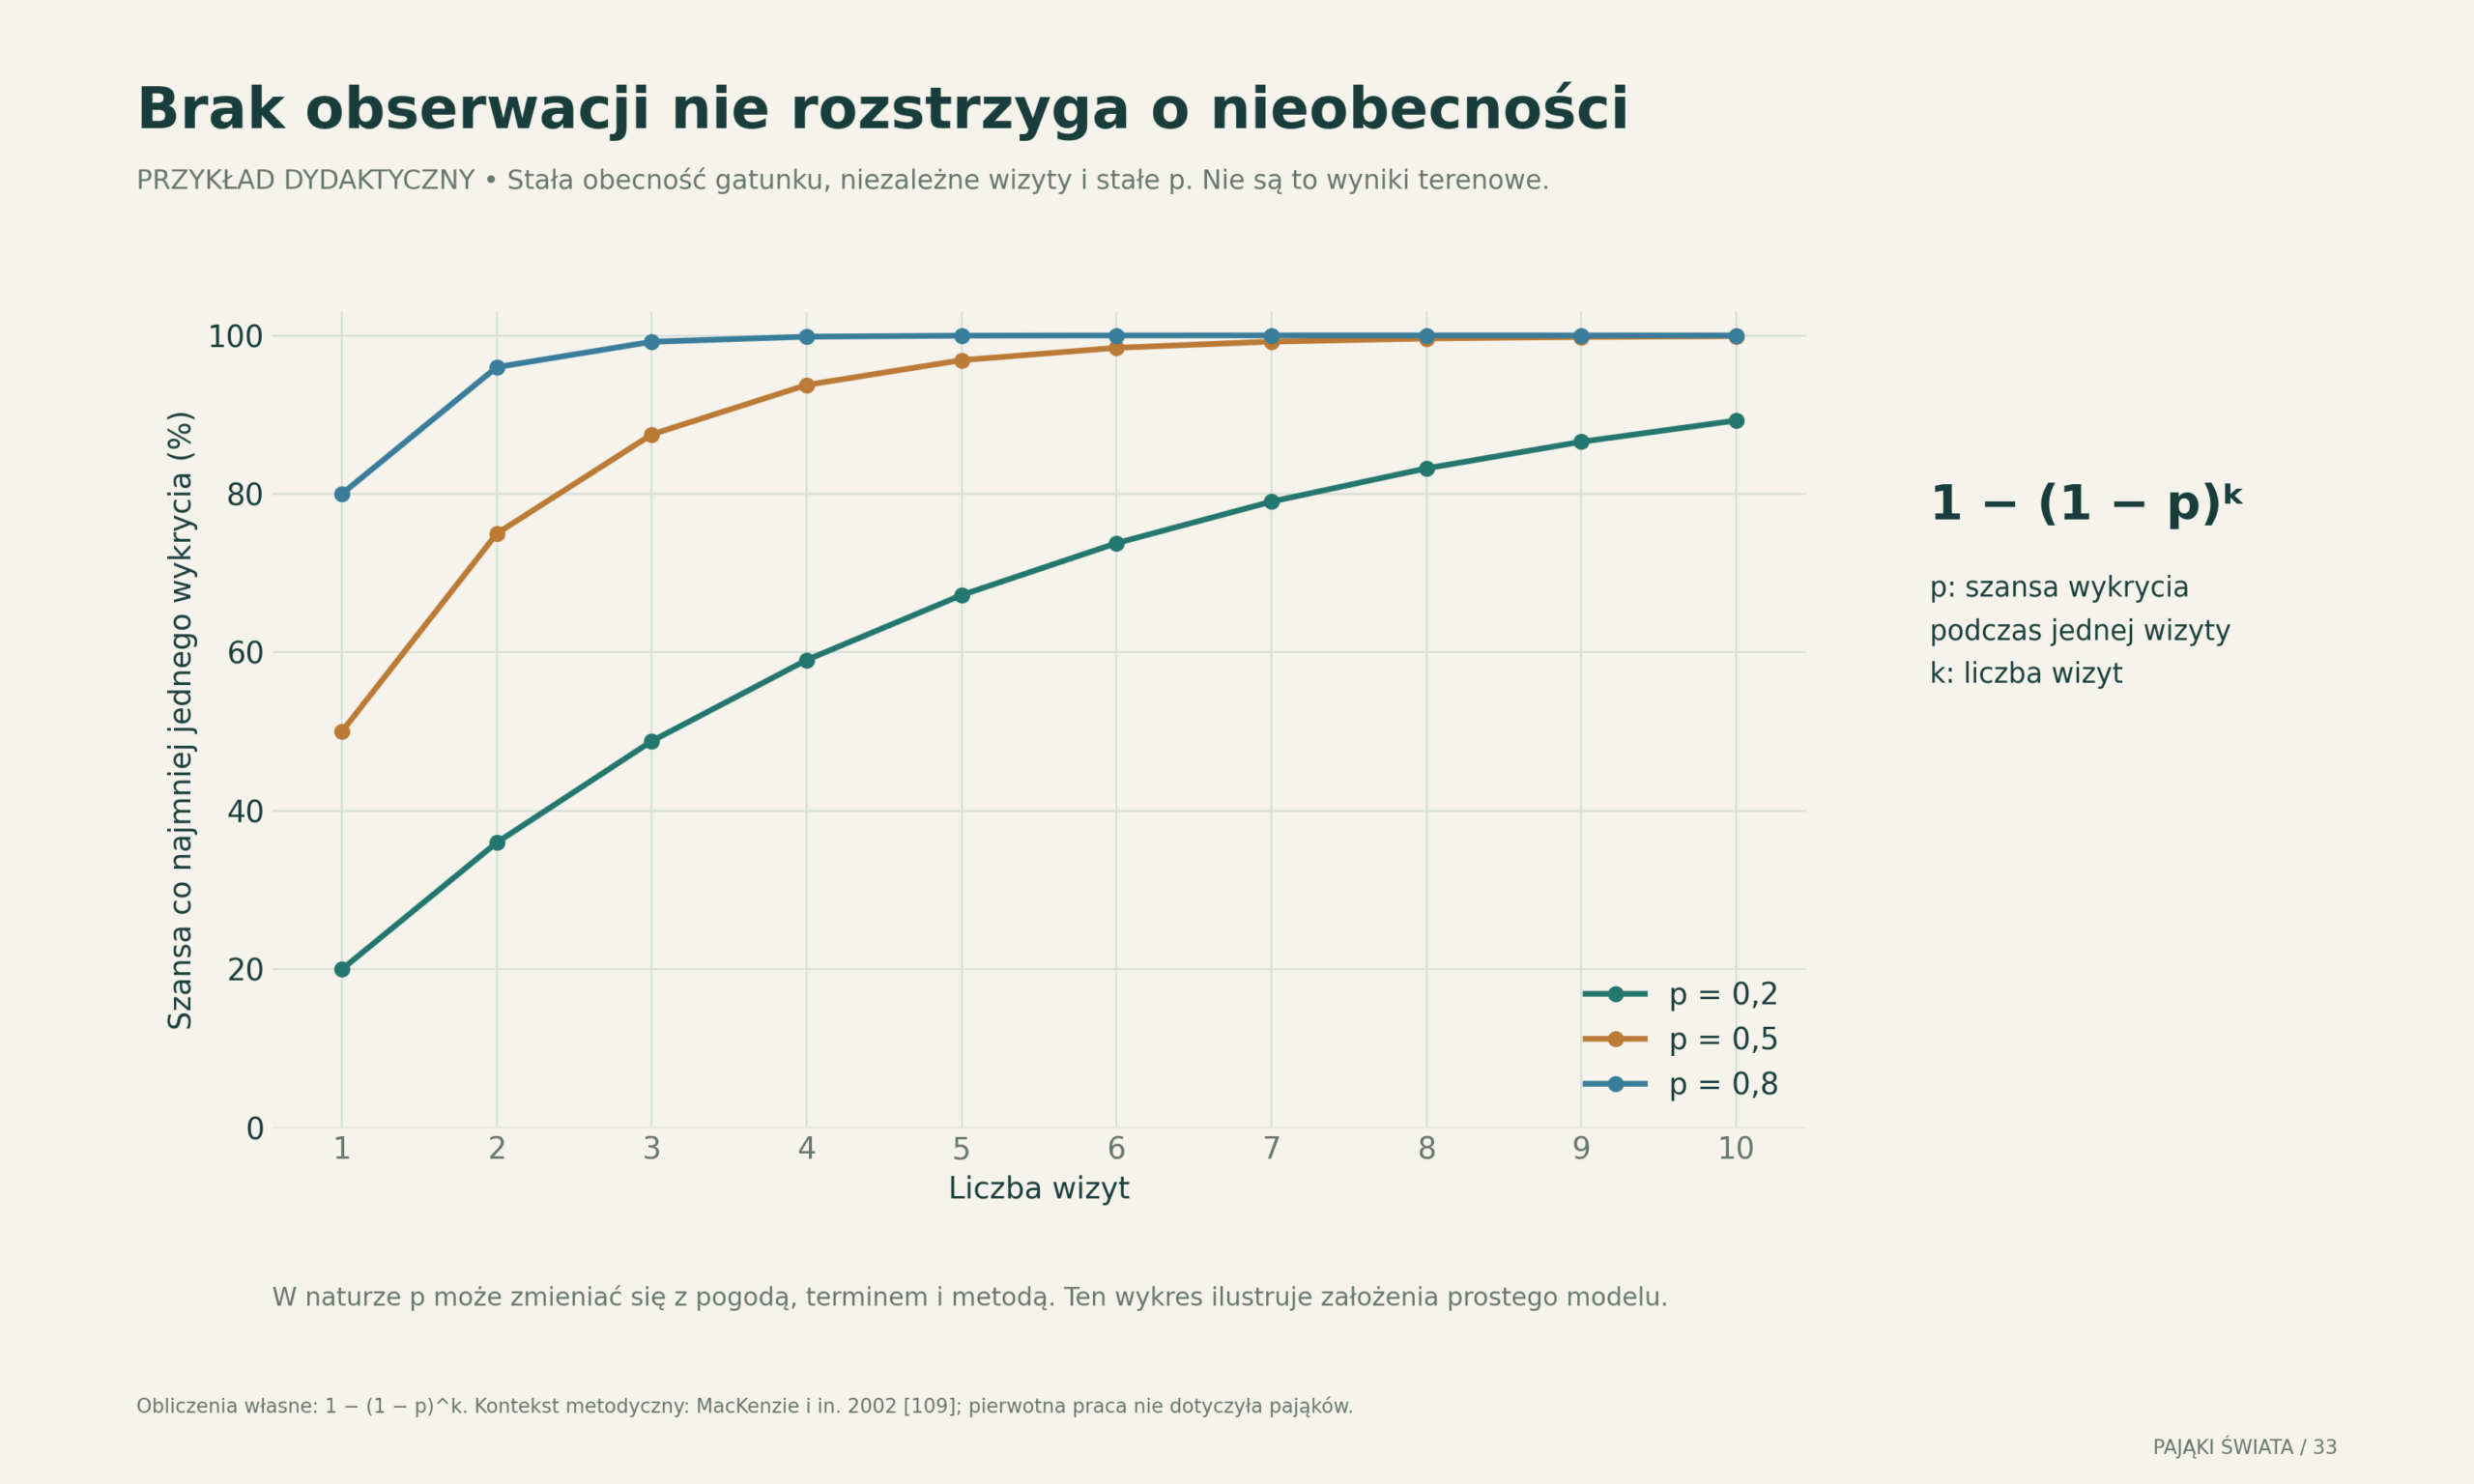
Pięć gatunków nie zawsze oznacza taką samą strukturę zespołu
Przyjmijmy dwa umowne zespoły po 100 osobników i pięć gatunków. W zespole A każdy gatunek liczy po 20 osobników. W zespole B jeden liczy 80, a cztery pozostałe po pięć. Bogactwo gatunkowe jest identyczne, lecz drugi zespół jest zdominowany przez jeden gatunek. Liczby Hilla pozwalają przedstawić tę różnicę w jednostkach efektywnej liczby gatunków; ich wykorzystanie w standaryzowanych porównaniach rozwija praca Chao i współautorów. [110]
W naszym przykładzie dla q = 0 oba zespoły mają wartość 5. Dla q = 1, czyli eksponenty entropii Shannona, zespół A nadal ma 5, a B około 2,18. Dla q = 2, czyli odwrotności sumy kwadratów udziałów, wartości wynoszą 5 oraz około 1,54. Nie oznacza to istnienia „ułamkowego gatunku”: wynik opisuje efektywną różnorodność w odniesieniu do równomiernego zespołu.
Gdy losujemy 10 osobników bez zwracania, oczekiwana liczba zaobserwowanych gatunków również różni się między zespołami. Obliczamy ją dokładnie jako sumę prawdopodobieństw trafienia na każdy gatunek, wykorzystując rozkład hipergeometryczny. Krzywe pokazują tylko interpolację od jednego do 100 osobników. Nie ekstrapolują liczby gatunków poza znaną, umowną populację.
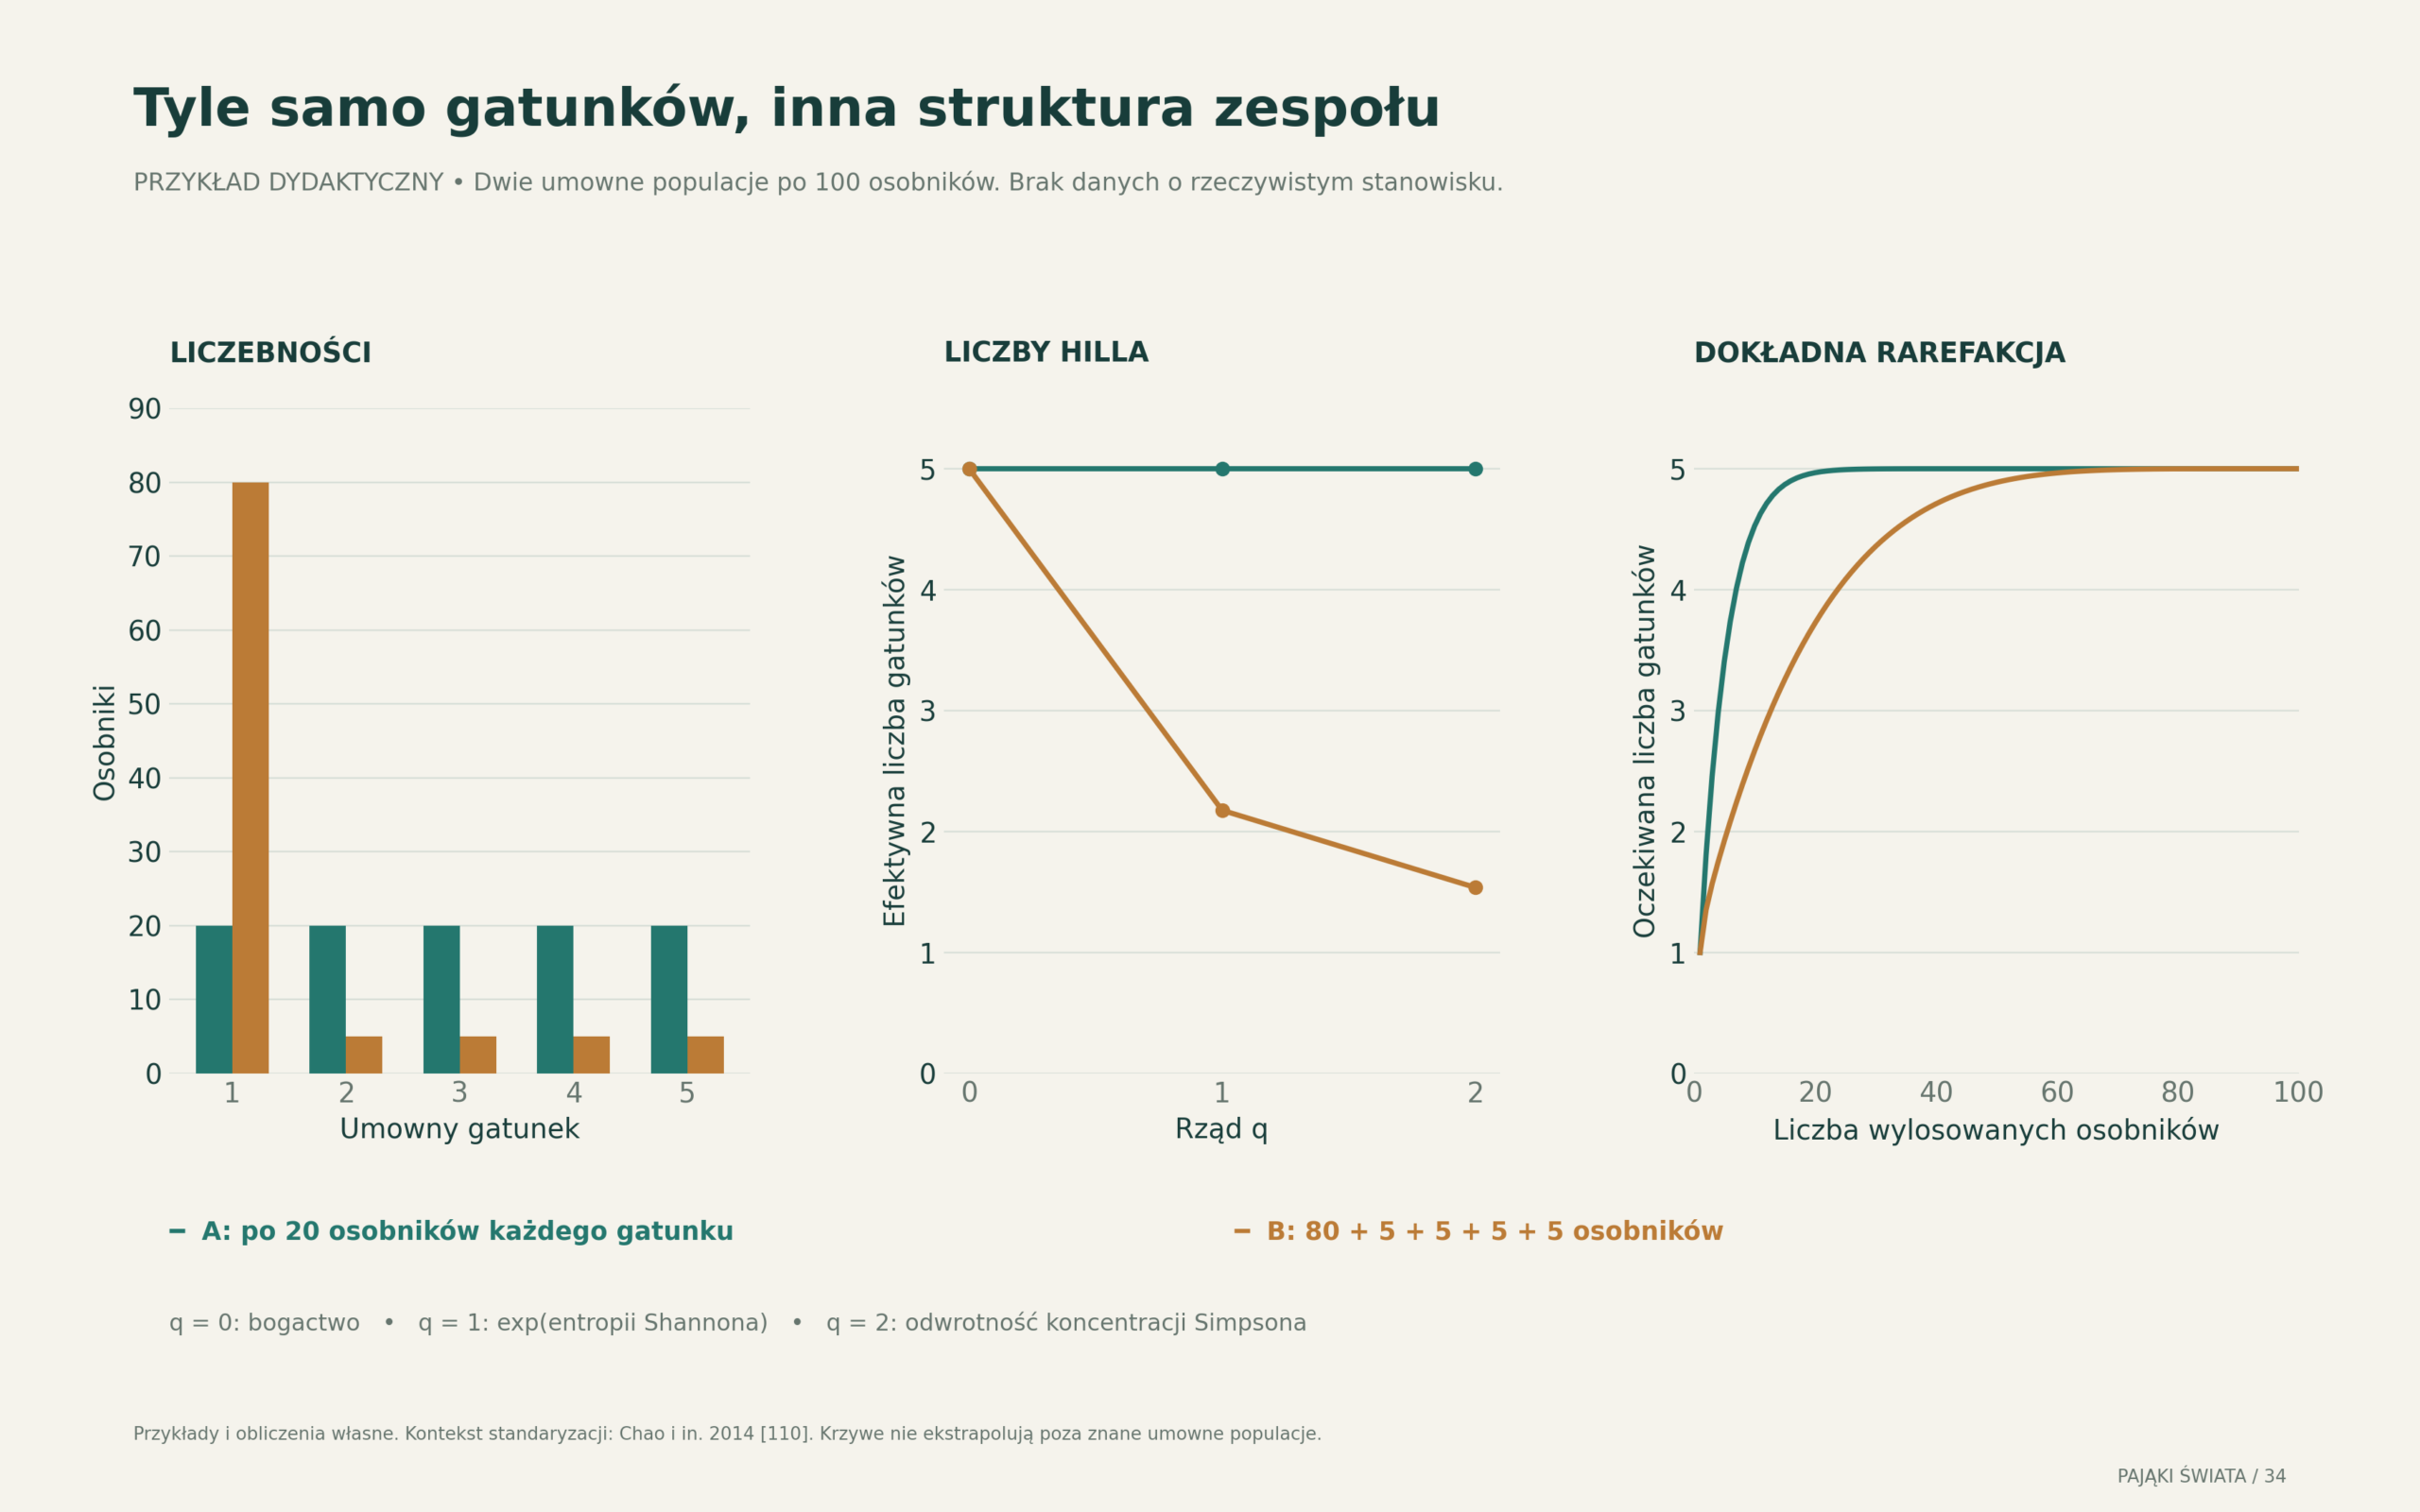
Punkt na mapie ma niepewność
GBIF zaleca podawanie niepewności współrzędnych wraz z układem odniesienia i opisem rekordu. Większa liczba miejsc po przecinku nie zastępuje wiedzy o dokładności lokalizacji. Jeśli stanowisko opisano tylko nazwą rozległego obszaru, wstawienie jego środka na mapę nie zmienia go w precyzyjny pomiar GPS. [111]
Na dydaktycznej mapie pokazano ten sam środek z promieniem niepewności 50 i 500 metrów. Mniejszy okrąg mieści się w jednym hipotetycznym typie siedliska; większy obejmuje kilka. Bez uwzględnienia promienia można błędnie przypisać gatunek do konkretnej uprawy, zbiornika lub zabudowy. Niepewność wpływa więc na dopuszczalną skalę analizy, a nie tylko na wygląd mapy.
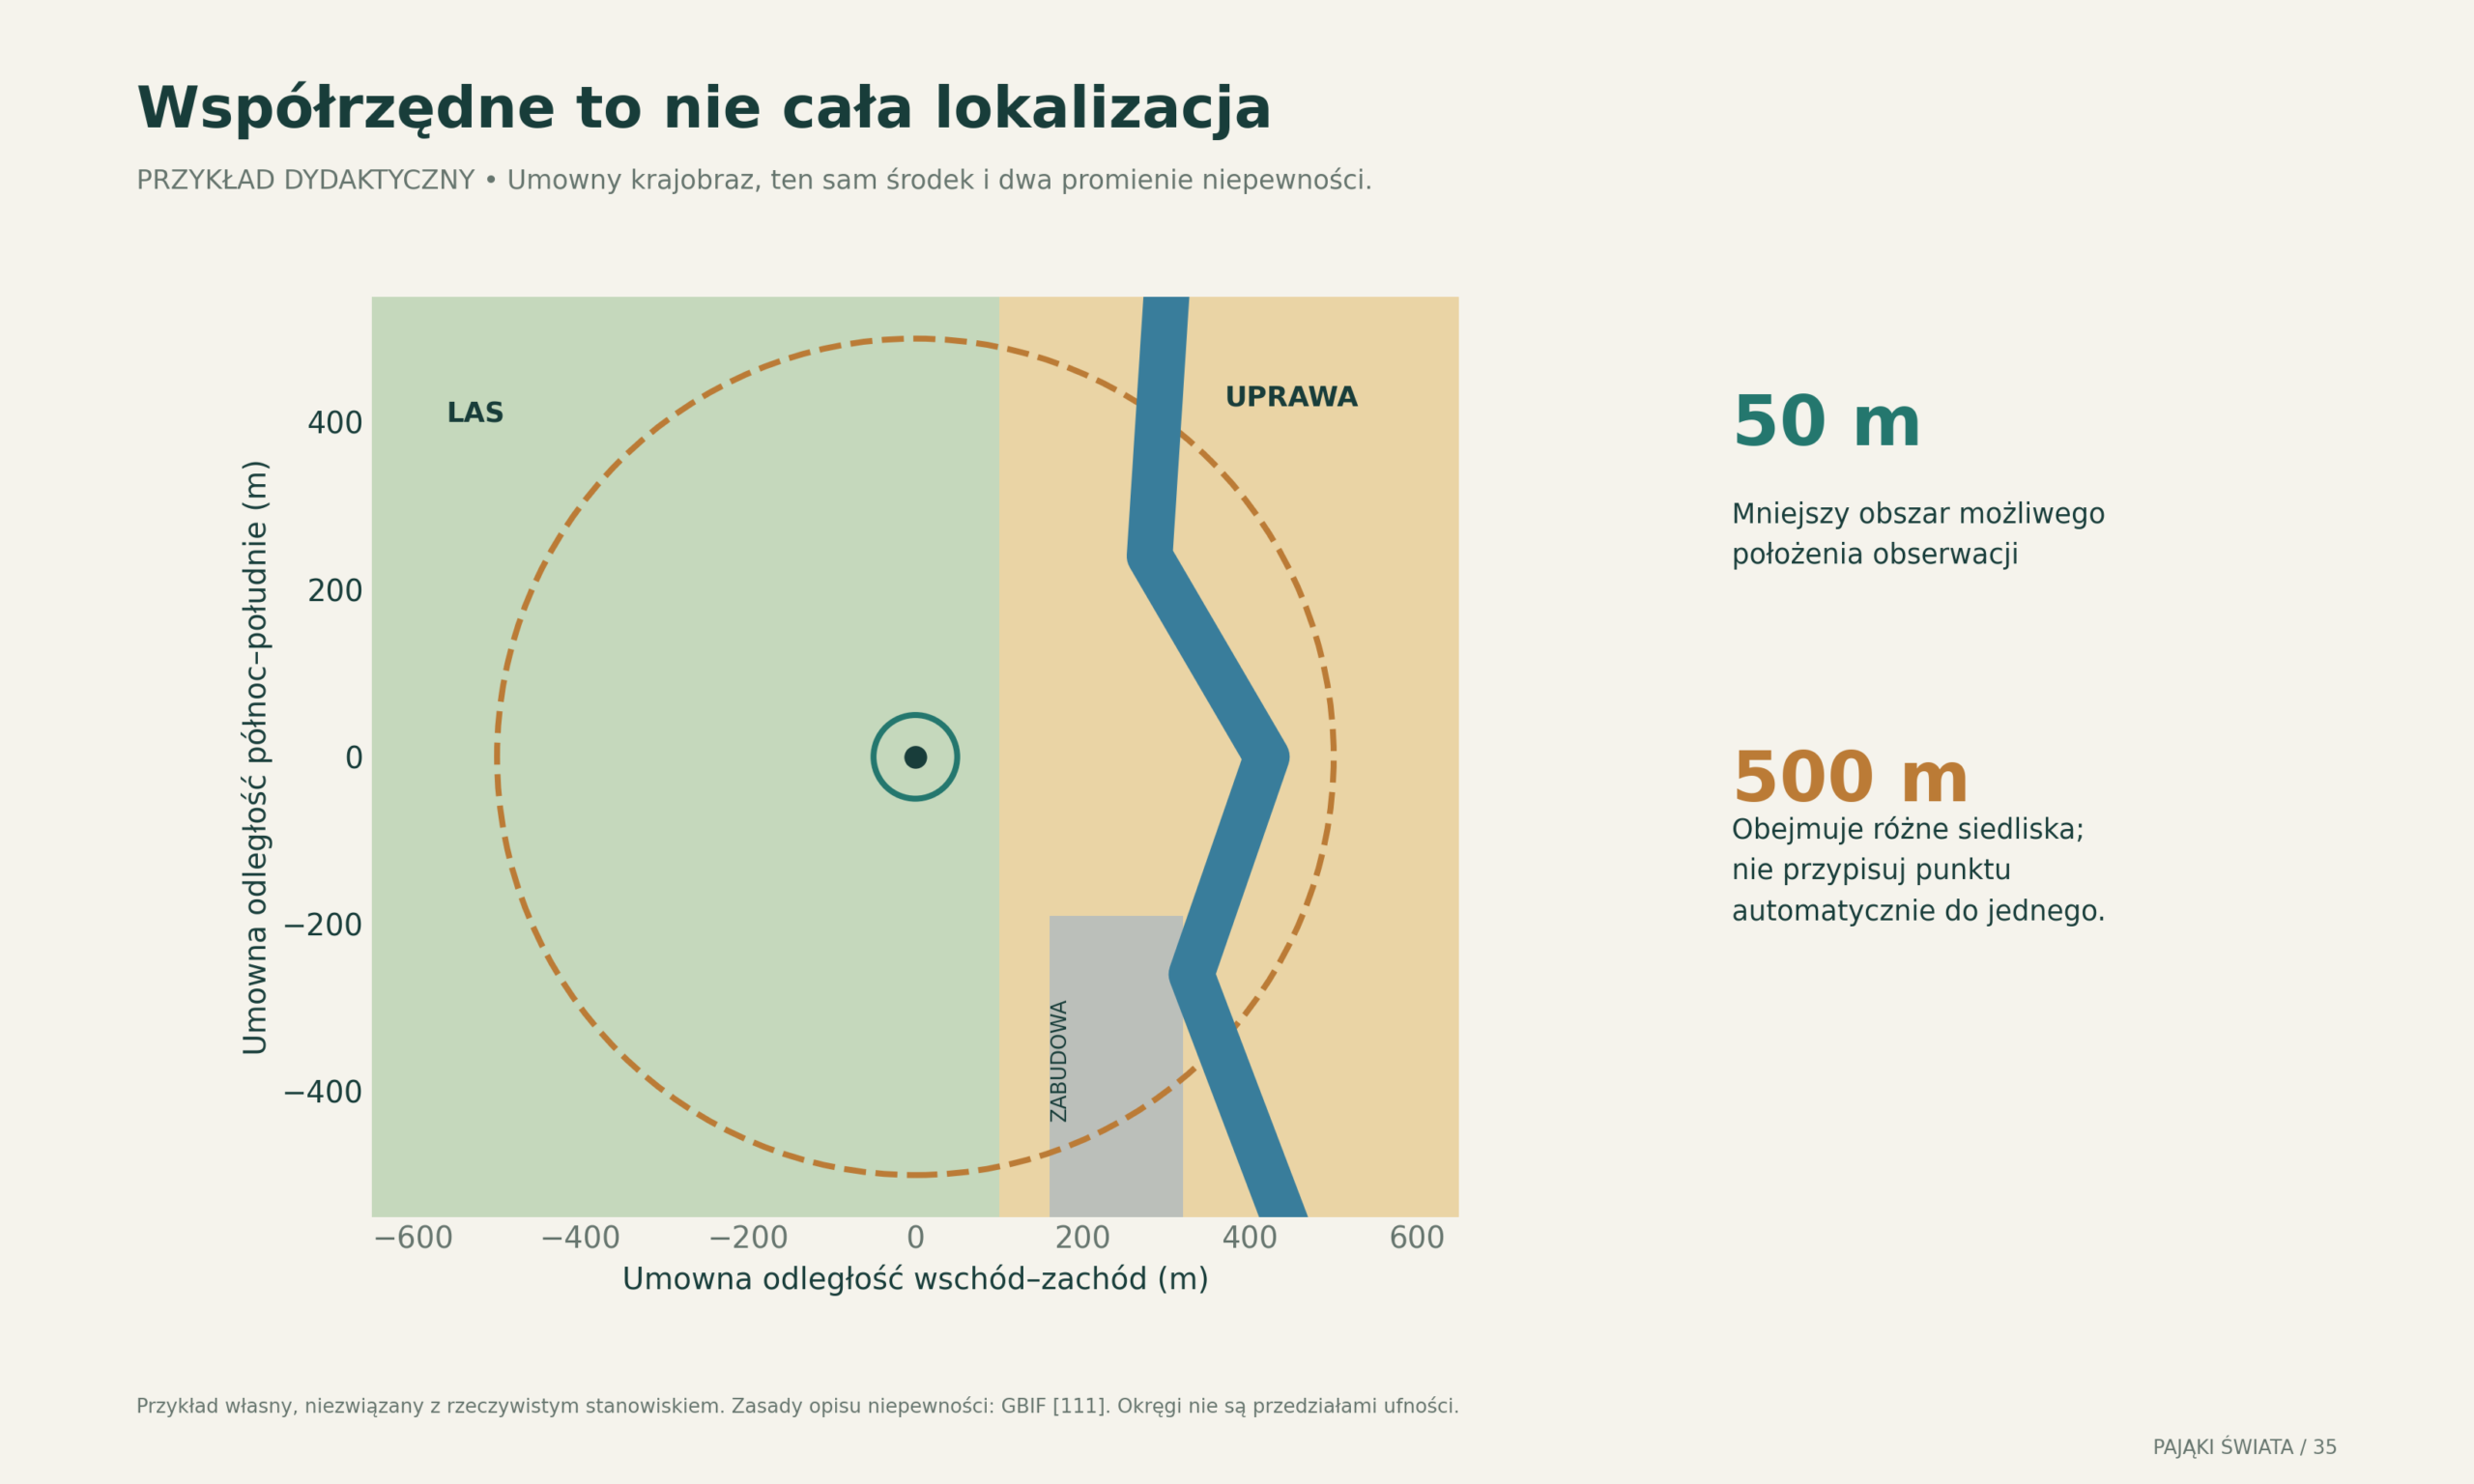
Jak przejść od przykładu do danych krajowych
Wykaz europejski w tej publikacji zachowuje 36 jednostek z jednego odczytu araneae. Pełny wykres pozwala odnaleźć także kraje pominięte w krótszym zestawieniu wprowadzającym. Nadal pozostaje wykresem katalogowych liczb gatunków. Nie zastosowano korekty o powierzchnię, liczbę badaczy ani kompletność inwentaryzacji. [3]
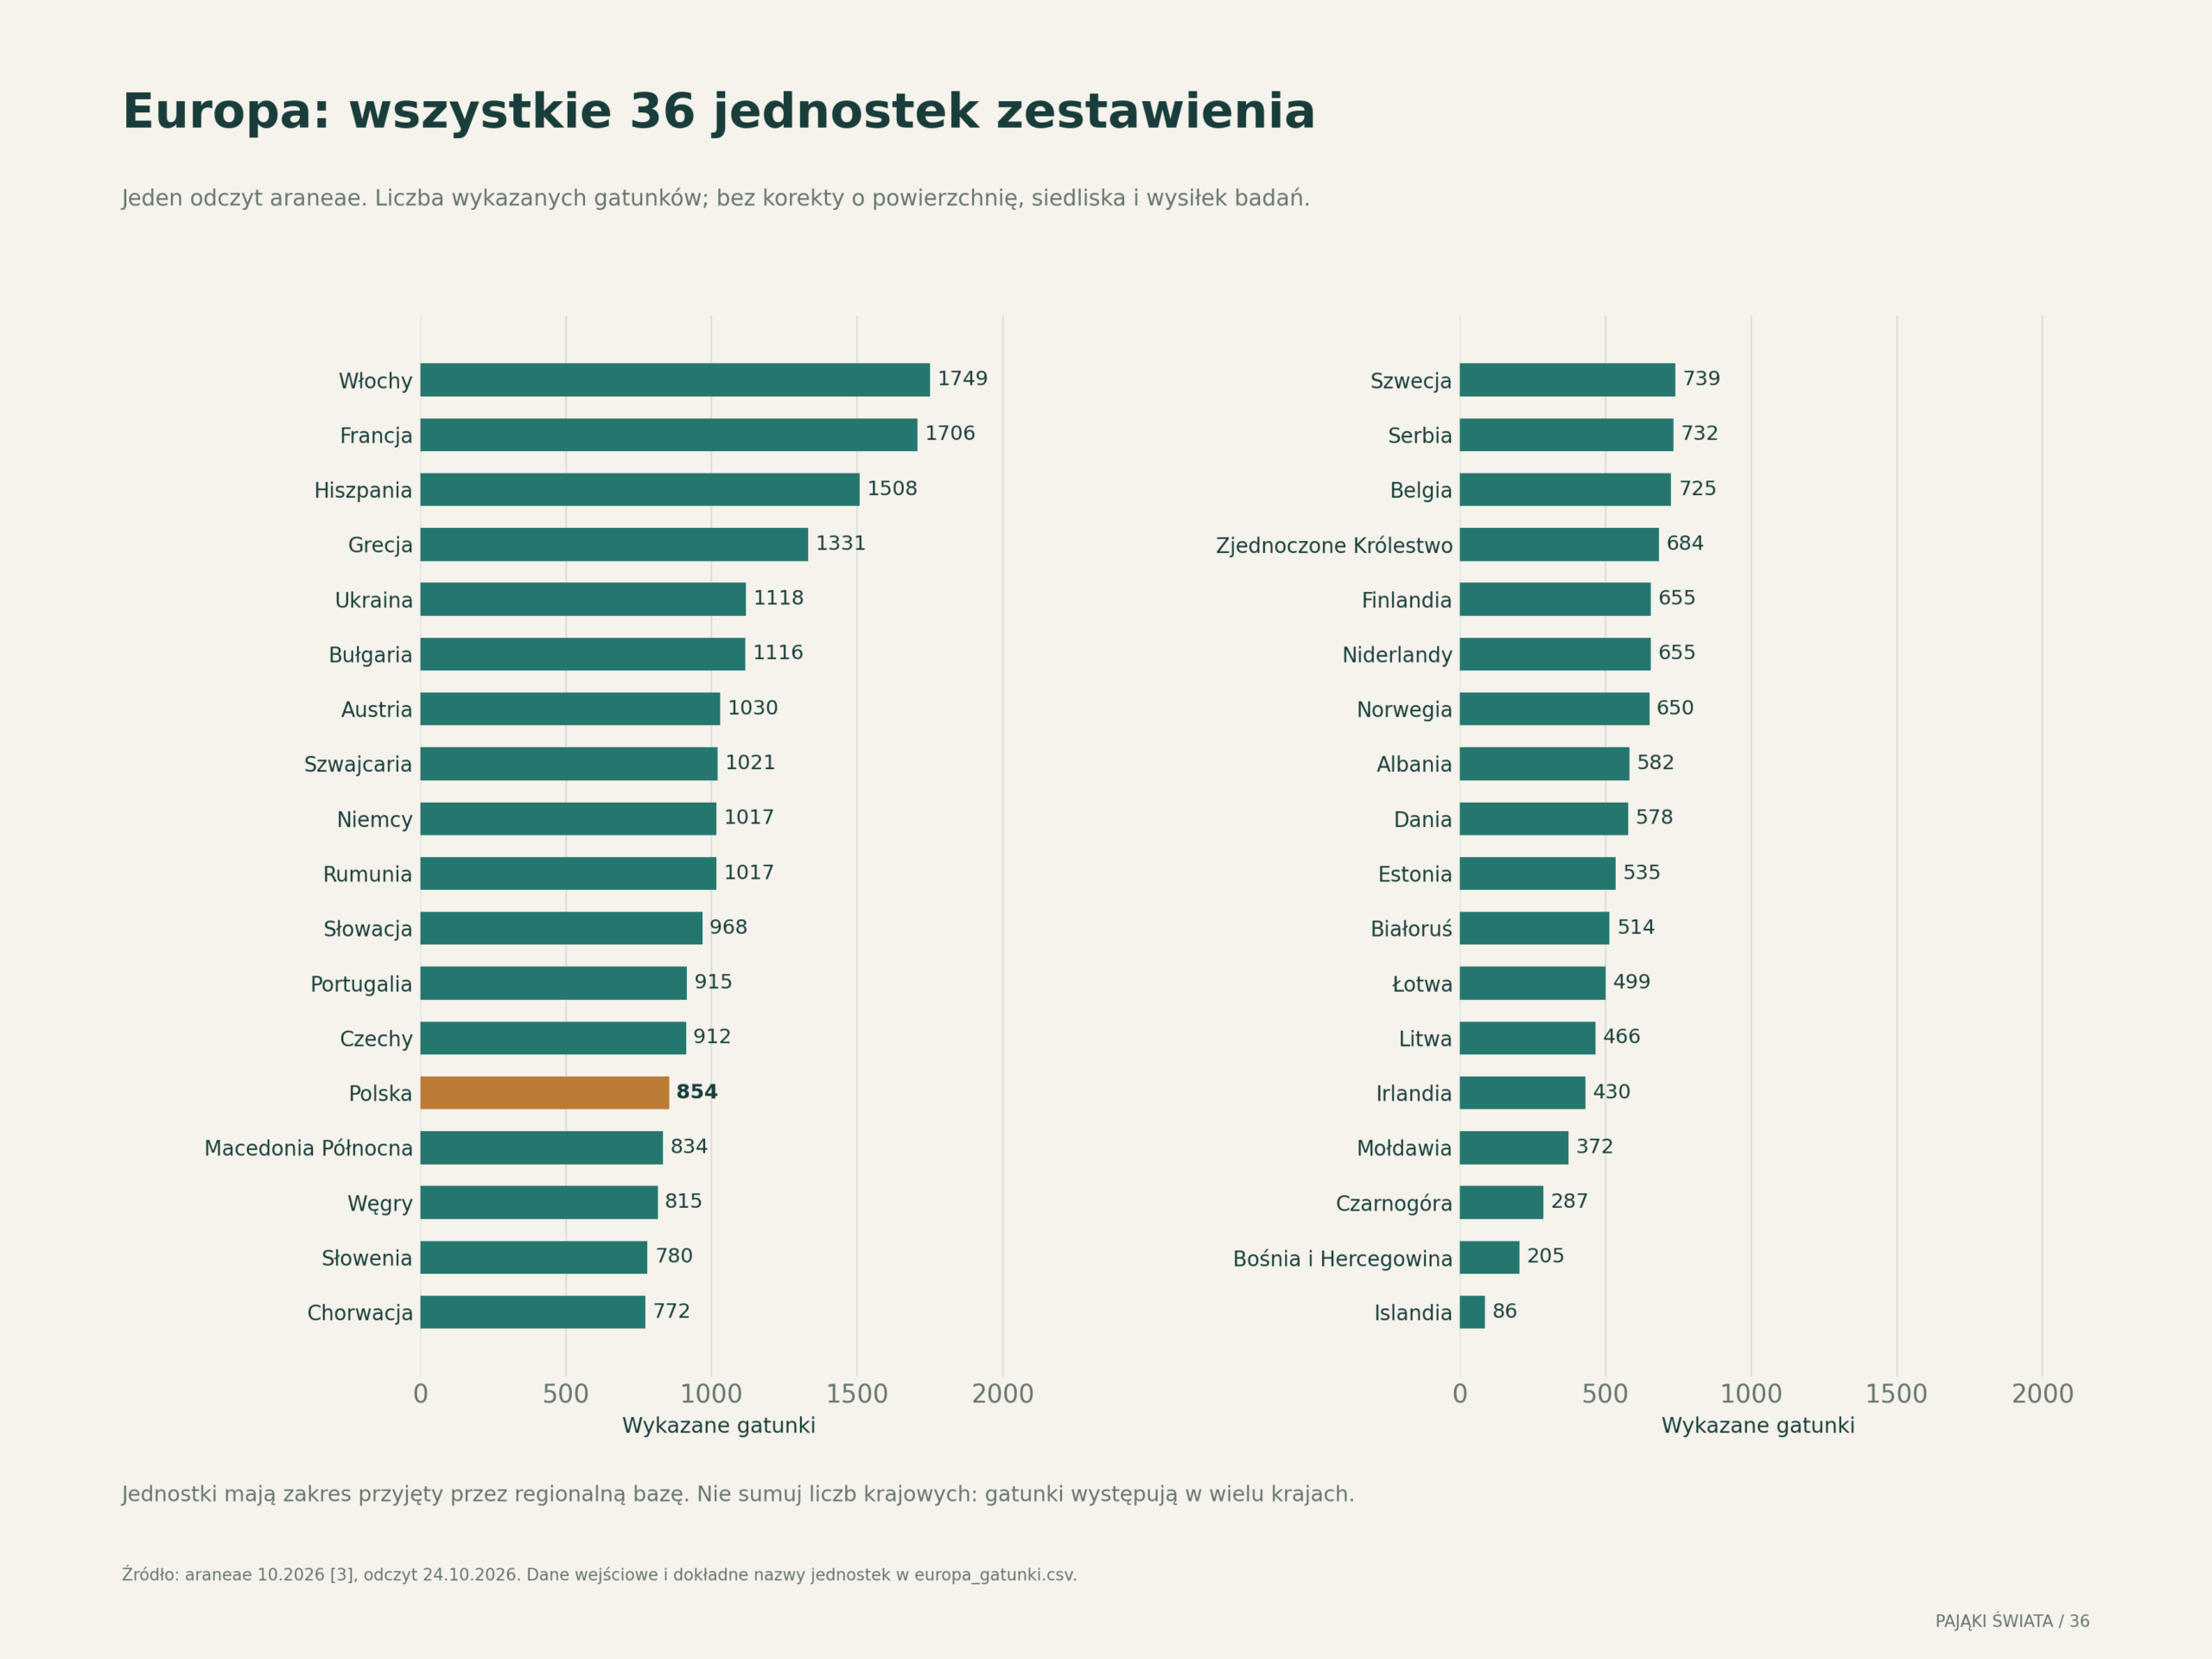
Przy własnej analizie warto przejść tę samą drogę: nazwać jednostkę, zachować dane wejściowe, podać wzór lub metodę i dopiero wtedy interpretować wynik. Pliki dydaktyczne mają jednoznaczne oznaczenie, aby nie pomylić ich z obserwacjami pająków w naturze.
39 Atlas gatunków II: szesnaście kolejnych portretów
Ten atlas uzupełnia rozdział 22, zwiększając liczbę szczegółowych portretów do trzydziestu dwóch. Dobór obejmuje pająki możliwe do spotkania w Europie oraz gatunki, których badanie pomogło wyjaśnić szczególne zjawiska biologiczne. Nie jest to lista „najważniejszych” pająków: znaczenie ekologiczne nie musi iść w parze z wielkością, efektownym wyglądem ani popularnością w internecie.
Przy długości ciała pomija się rozpiętość odnóży. Podane zakresy dotyczą dorosłych osobników w konkretnych źródłach. Nie są rozkładem statystycznym, średnią populacyjną ani granicą umożliwiającą pewne oznaczenie. Występowanie w kraju oznacza udokumentowaną obecność w zakresie katalogu, a nie równomierne zasiedlenie jego powierzchni. Odróżniamy także miejsce przeprowadzenia doświadczenia od całego zasięgu gatunku.
Zoropsis spinimana — duży pająk spotykany również w budynkach
Karta gatunku w atlasie: Zoropsis spinimana
U tego gatunku samce osiągają według araneae 10–13 mm długości ciała, a samice 10–19 mm. W środowisku naturalnym pająk korzysta między innymi z luźnych zadrzewień, przestrzeni pod kamieniami i korą. Bywa też znajdowany wewnątrz budynków. Samica pozostaje przy kokonie w przygotowanej komorze lęgowej. Takie zachowanie przypomina, że opieka nad jajami może być istotną częścią życia pająka, którego najczęściej oglądamy przypadkowo, podczas przemieszczania się. [113]
Fotografia dużego brązowego osobnika na ścianie nie wystarcza do rozpoznania. W praktyce warto oddzielić trzy zapisy: to, co rzeczywiście widać na zdjęciu, proponowaną identyfikację oraz pewność oznaczenia. Sam fakt wejścia do mieszkania nie mówi też, czy obserwowane zwierzę tworzy tam stałą populację, czy pojawiło się przejściowo.
Segestria florentina — kryjówka w szczelinie
Katalog podaje 10–15 mm dla samców i 14–22 mm dla samic. Charakterystyczną cechą samic są metalicznie zielone szczękoczułki. Gatunek zajmuje między innymi szczeliny skał i murów oraz przestrzenie pod korą i kamieniami. W takim mikrosiedlisku otwór kryjówki bywa znacznie bardziej widoczny niż całe zwierzę. Młode mogą przypominać dorosłe osobniki innego gatunku, Segestria bavarica, dlatego wiek jest ważny przy interpretacji cech wyglądu. [114]
To dobry przykład ograniczeń identyfikacji opartej na pojedynczej cesze. Efektowny połysk może pomóc w orientacji, ale jego brak na zdjęciu nie przesądza o nieobecności: znaczenie mają oświetlenie, kąt obserwacji, płeć i stadium rozwojowe. Opis obserwacji powinien obejmować również rodzaj podłoża i wygląd wejścia do kryjówki.
Eresus kollari — kontrast płci i długie życie pod ziemią
Samce mają 8–11 mm, samice 9–16 mm. Czerwony odwłok z czarnymi plamami u samca silnie kontrastuje z ciemnym ubarwieniem samicy. Araneae opisuje nory dochodzące do około 10 cm głębokości i niewielką nadziemną część oprzędu. Samica opiekuje się kokonem, przenosząc go ku nasłonecznieniu; młode pozostają przy niej i po jej śmierci odżywiają się jej ciałem. [115]
Ten portret łączy dwie skale obserwacji: widocznego, przemieszczającego się samca oraz znacznie mniej dostępne życie samicy w norze. Zestawienie samych fotografii terenowych może więc nadmiernie eksponować jedną płeć. Nie należy rozkopywać kryjówki, aby potwierdzić tożsamość jej mieszkanki. Ślad aktywności można udokumentować bez niszczenia miejsca rozrodu.
Scytodes thoracica — lepka wydzielina zamiast sieci łownej
Karta gatunku w atlasie: Scytodes thoracica
Samce mierzą 3,5–4 mm, samice 4–5,5 mm. Ten nocny, powoli poruszający się pająk unieruchamia zdobycz wydzieliną wyrzucaną ze szczękoczułków. W karcie gatunku opisano działanie na odległość do około 20 mm. W południowej Europie występuje także poza budynkami; na północy jest przede wszystkim związany z ich wnętrzem. [116]
Warto rozróżnić materiał używany do obezwładnienia ofiary od jedwabiu wytwarzanego przez gruczoły przędne odwłoka. Zewnętrzne podobieństwo lepkich nitek nie czyni ich automatycznie tym samym produktem. Scytodes pokazuje, że opis „pająk bez sieci” niewiele mówi o stopniu specjalizacji sposobu polowania. Brak rozpiętej pułapki nie oznacza prostszego wyposażenia łowcy.
Pisaura mirabilis — dar godowy i przenoszony kokon
Samce osiągają 10–13 mm, samice 12–15 mm. Gatunek występuje w roślinności otwartych siedlisk, także na wilgotnych łąkach i wśród krzewów. Samiec może przekazywać samicy dar godowy. Samica nosi kokon w szczękoczułkach; przed wykluciem przygotowuje osłaniający młode oprzęd i pilnuje go. Karta araneae podaje 100–300 jaj w kokonie. [117]
Sam widok pająka niosącego jasną kulę nie wystarcza jednak do oznaczenia. Znaczenie ma sposób mocowania kokonu, układ ciała i cechy zwierzęcia. Nie należy też utożsamiać ochronnego oprzędu dla potomstwa z konstrukcją przeznaczoną do chwytania zdobyczy. Jedwab uczestniczy tu przede wszystkim w rozrodzie i opiece, a nie tylko w polowaniu.
Tetragnatha extensa — wydłużona sylwetka w wilgotnej roślinności
Wymiary dorosłych wynoszą 6–9 mm u samców oraz 5–12,2 mm u samic. Wydłużone ciało, srebrzysto-zielonkawe odcienie i silnie rozwinięte szczękoczułki samców są przydatnymi cechami orientacyjnymi. Gatunek zasiedla roślinność zielną wilgotnych, otwartych miejsc, często w sąsiedztwie wody. [118]
Ten przykład uczy ostrożnego czytania zakresów wielkości. Przedziały obu płci nachodzą na siebie, a dolna granica dla samic jest niższa niż dla samców. Nie wynika z tego, że przeciętna samica jest mniejsza: do takiego porównania potrzebne byłyby liczebności prób i rozkłady pomiarów. Podobnie fotografia długiego pająka na trzcinie nie wystarcza do rozdzielenia wszystkich podobnych gatunków rodzaju.
Uloborus plumipes — tropikalny motyw w europejskiej szklarni
Samce mierzą 3–4 mm, samice 3–6 mm. U samicy uwagę zwracają piórkowate włoski na pierwszej parze odnóży oraz dwa wybrzuszenia odwłoka. Gatunek jest związany z ciepłymi obszarami Starego Świata; w środkowej i północnej Europie spotyka się go w szklarniach. [119]
Szklarnia tworzy odmienne warunki niż otaczający ją krajobraz. Dlatego informację o stwierdzeniu warto uzupełnić o to, czy chodzi o ogrzewany obiekt, otwarty teren czy transportowane rośliny. Takie rozróżnienie pozwala później analizować trwałość populacji. Kilka zdjęć samic nie dowodzi rozmnażania bez udziału samców: niewykrycie jednej płci jest przede wszystkim problemem obserwacji, dopóki nie przeprowadzi się odpowiedniego badania rozrodu.
Menemerus semilimbatus — skakun o kontrastowym obramowaniu
Karta gatunku podaje 5,1–7,4 mm dla samców i 6,5–8,4 mm dla samic. Jasne pasy przy bocznych krawędziach głowotułowia oraz kontrastowe nogogłaszczki samca pomagają opisać wygląd. Katalogowy zasięg obejmuje między innymi region śródziemnomorski, Kaukaz i Iran; introdukcje wykazano w Argentynie, Chile i Stanach Zjednoczonych. [120]
W atlasie geograficznym takie dwa rodzaje występowania wymagają odrębnego oznaczenia. Kolorowanie całych państw jednym kolorem zacierałoby historię obecności gatunku. Przy interpretacji nowych doniesień ważne jest także odróżnienie przywiezionego osobnika od populacji utrzymującej się przez kolejne sezony. To pytanie ekologiczne, którego nie rozstrzyga sam poprawny podpis pod zdjęciem.
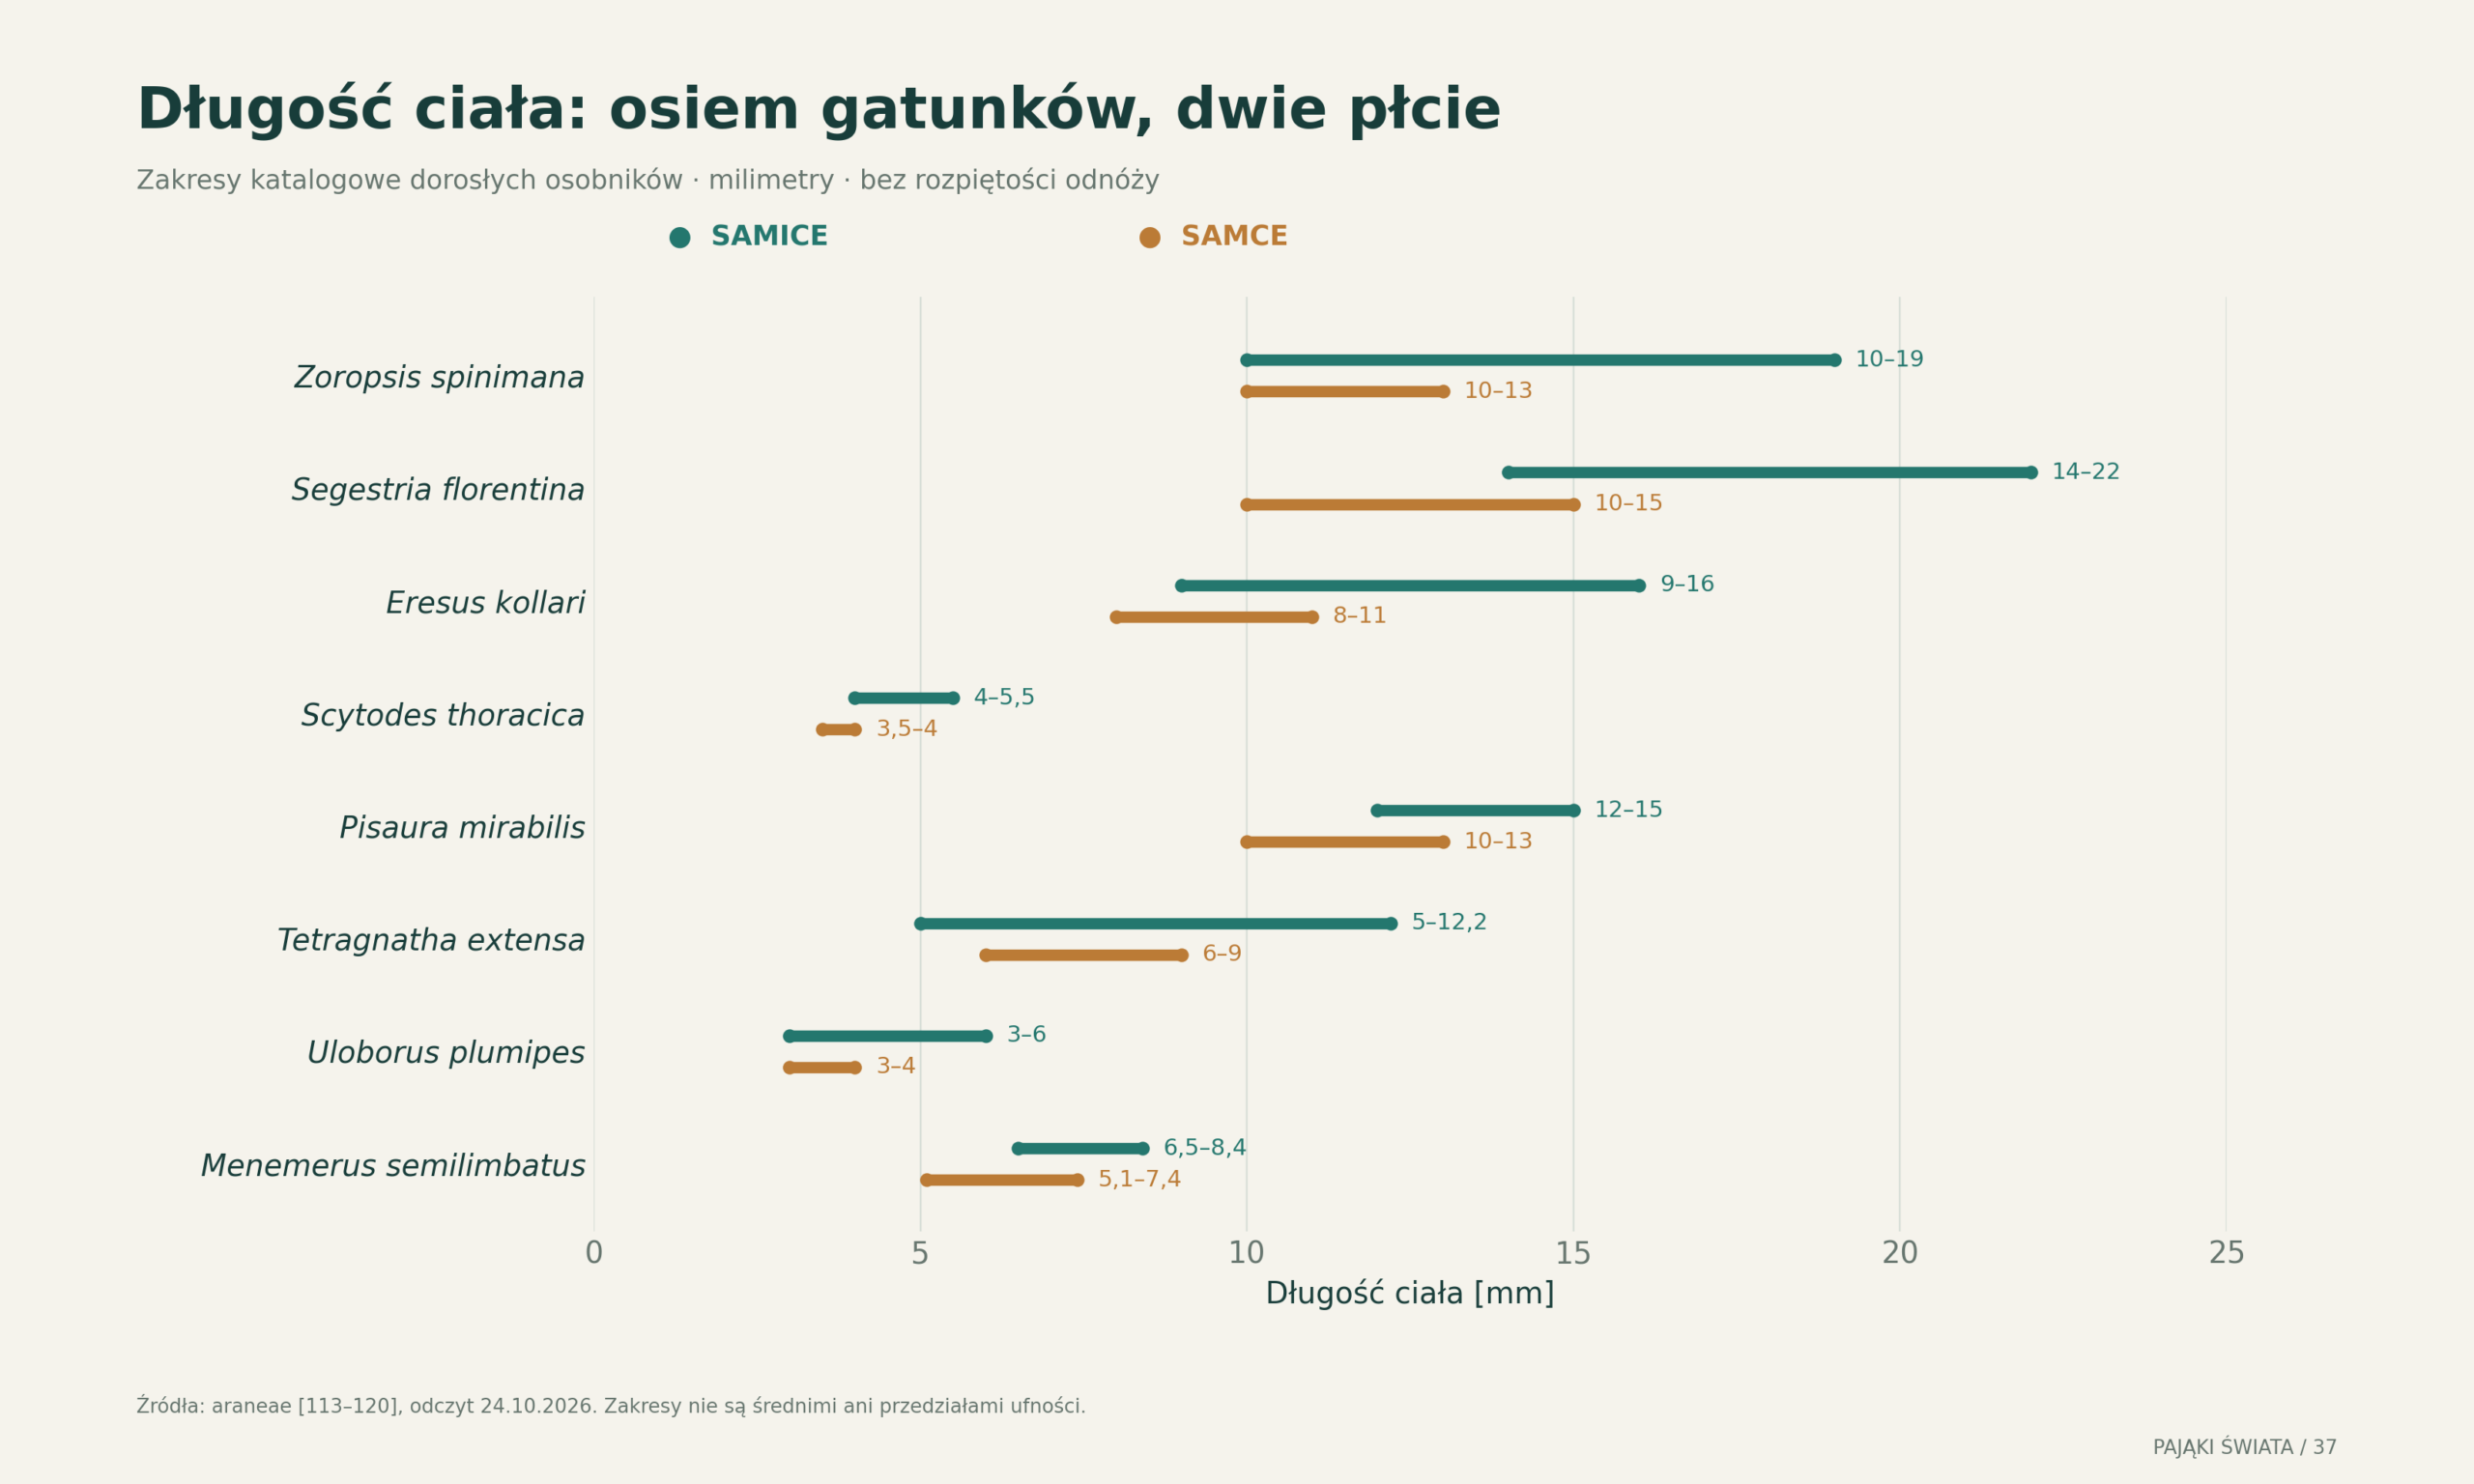
Myrmarachne formicaria — upodobnienie obejmuje również ruch
Ten skakun naśladuje mrówki sylwetką i zachowaniem. Analiza nagrań wykazała jednak, że podczas chodu używa wszystkich ośmiu nóg. Przednią parę unosi w sposób przypominający czułki podczas zatrzymań. Różnica ta ginie przy pobieżnej obserwacji: pozorny „sześcionogi pająk” może być efektem naprzemiennych faz ruchu i bezruchu. [121]
Portret warto zestawić z rozdziałem 40. Podobieństwo oceniane przez człowieka jest punktem wyjścia do hipotezy, nie jej ostatecznym sprawdzianem. Trzeba jeszcze ustalić, jak wzorzec ruchu odbiera drapieżnik i czy przekłada się to na decyzję o ataku.
Aotearoa magna — wolniejszy krewny pomaga zrozumieć rekord
Ten drobny nowozelandzki pająk, o długości ciała około 3–4 mm, został wykorzystany w porównaniu z przedstawicielami rodzaju Zearchaea. Jego uderzenia szczękoczułkami były znacznie wolniejsze. Dzięki temu badanie mogło powiązać różnice w budowie z różnicami działania, zamiast ograniczyć się do pojedynczego niezwykłego wyniku. [131]
Dobry dobór organizmu porównawczego jest ważną częścią doświadczenia. Dla wyjaśnienia mechanizmu więcej może wnieść zestawienie bliskich krewnych niż porównanie rekordowego pająka z przypadkowo wybranym, dużo większym zwierzęciem. Jednostka „metr na sekundę” nie opisuje przy tym wszystkich aspektów ruchu obracającego się przydatka.
Thomisus spectabilis — biały dla człowieka, kontrastowy dla pszczoły
Karta gatunku w atlasie: Thomisus spectabilis
Australijski przedstawiciel ukośnikowatych stał się modelem badania relacji między barwą pająka, kwiatem i wzrokiem zapylacza. W doświadczeniu Heiling i współautorów jego sygnał w ultrafiolecie zmieniał wygląd kwiatu dla pszczół i mógł je przywabiać. [123]
Nie należy przenosić tego wyniku na każdy biały gatunek ani każdy gatunek kwiatu. Kolor w fotografii RGB i bodziec odbierany przez owada nie są tym samym pomiarem. Ten portret należy czytać razem z doświadczeniami nad Misumena vatia w rozdziale 41: różne układy ekologiczne mogą prowadzić do różnych reakcji zapylaczy.
Stegodyphus dumicola — życie w grupie ma także wymiar genetyczny
Jeden ze społecznych przedstawicieli rodzaju Stegodyphus został objęty badaniem genomowym opublikowanym w 2025 roku. Analizowane próbki pochodziły między innymi z Namibii. Badaczy interesowało, jak trwałe życie społeczne i kojarzenie krewniacze wiążą się z różnorodnością genetyczną oraz skutecznością doboru. [124]
Duża liczba osobników we wspólnej konstrukcji nie oznacza automatycznie równie dużej efektywnej populacji. W praktyce znaczenie ma to, ile osobników przekazuje geny następnemu pokoleniu i w jakich proporcjach. Portret tego gatunku prowadzi więc od widocznej kolonii do procesów, których nie da się ocenić na podstawie samej fotografii sieci.
Pardosa glacialis — rozród w krótkim arktycznym sezonie
Wieloletnie dane z Zackenberg w północno-wschodniej Grenlandii pozwoliły badać związek między terminem zaniku śniegu a rozrodem tego pogońcowatego. Wcześniejsza wiosna może umożliwiać wytworzenie drugiej partii jaj w sezonie. [125]
To nie jest równoznaczne z drugim pokoleniem. Kolejne potomstwo tej samej samicy i potomstwo jej dorosłych już dzieci to dwa odmienne zjawiska demograficzne. Rozróżnienie jest szczególnie ważne w tekstach o ociepleniu: efektowny nagłówek o „podwojeniu pokoleń” może opisywać coś, czego przywołane badanie w ogóle nie wykazało.
Desis marina — granica lądu i morza jako siedlisko
Nowozelandzki Desis marina korzysta z kryjówek w strefie pływów, między innymi w szczelinach i jamkach podłoża. Jedwabna osłona pozwala odizolować wnętrze schronienia od otaczającej wody; pająk może przebywać w nim podczas zalania. [126, 136]
Określenie „morski” opisuje tu związek ze środowiskiem przybrzeżnym. Nie należy wyobrażać sobie tego gatunku jako odpowiednika ryby swobodnie żyjącej w toni. Dla interpretacji jego biologii istotny jest cykl dostępu do powietrza, kryjówki i odsłanianego podłoża. Szczegółowy schemat w rozdziale 42 pokazuje to bez udawania przekroju anatomicznego ani modelu przepływu gazów.
Liphistius desultor — nazwa jako punkt odniesienia systematyki
World Spider Catalog uznaje Liphistius desultor za gatunek występujący w Malezji i gatunek typowy rodzaju Liphistius. [127] Sformułowanie „gatunek typowy” oznacza rolę w nomenklaturze: zakotwiczenie nazwy rodzaju. Nie znaczy „najczęstszy”, „przeciętny” ani „najbardziej pierwotny”.
Rodzaj należy do omawianej wcześniej linii Mesothelae. Obecność cech kojarzonych z dawnym planem budowy nie oznacza, że współczesny pająk jest niezmienioną kopią odległego przodka. W atlasie ten gatunek przypomina przede wszystkim o potrzebie oddzielenia trzech spraw: podobieństwa morfologicznego, historii ewolucyjnej oraz formalnych reguł nazewnictwa.
Phidippus audax — północnoamerykański łowca wzrokowy
Karta gatunku w atlasie: Phidippus audax
Według katalogu WSC gatunek występuje w Kanadzie, Stanach Zjednoczonych i Meksyku; introdukcje odnotowano między innymi na Hawajach, Azorach i Nikobarach. [128] Profil University of Michigan podaje 6–13 mm dla samców oraz 8–15 mm dla samic. Ciemne ciało z jasnymi plamami, połyskujące szczękoczułki i aktywność dzienna czynią go rozpoznawalnym przedstawicielem skakunowatych. Poluje, wykorzystując wzrok, a przy skokach stosuje nić asekuracyjną. [137]
Aktualną informację katalogową o rozmieszczeniu oddzielono tu od starszego opracowania biologii. Jest to użyteczny sposób pracy ze źródłami: starszy opis zachowania nie musi być bezwartościowy, ale nie powinien automatycznie wyznaczać dzisiejszego zasięgu ani aktualnego statusu ochronnego.
40 Naśladowanie i szybkość: dwa sposoby zmiany wyniku spotkania
Podobieństwo zależy od obserwatora
O kamuflażu można mówić dopiero w odniesieniu do konkretnego tła i aparatu percepcyjnego odbiorcy. Mimetyczne upodobnienie do innego zwierzęcia stawia dodatkowe pytanie: czy odbiorca traktuje podobny obiekt jak model, który naśladuje? Własne wrażenie człowieka jest przydatne do opisu, lecz nie zastępuje doświadczenia. Ta zasada łączy badania ruchu mrówkopodobnych skakunów z omówionymi wcześniej pomiarami barw.
W pracy nad Myrmarachne formicaria wykorzystano szybkie nagrania oraz prezentacje wideo dla drapieżnych skakunów Phidippus audax. Reakcje na mrówkę i jej naśladowcę różniły się od reakcji na zwykłego skakuna. Wynik wspiera interpretację ochronnej roli naśladownictwa. Zapis ruchu ujawnił zarazem, dlaczego liczenie nóg na pojedynczym kadrze może dawać mylny obraz lokomocji. [121]
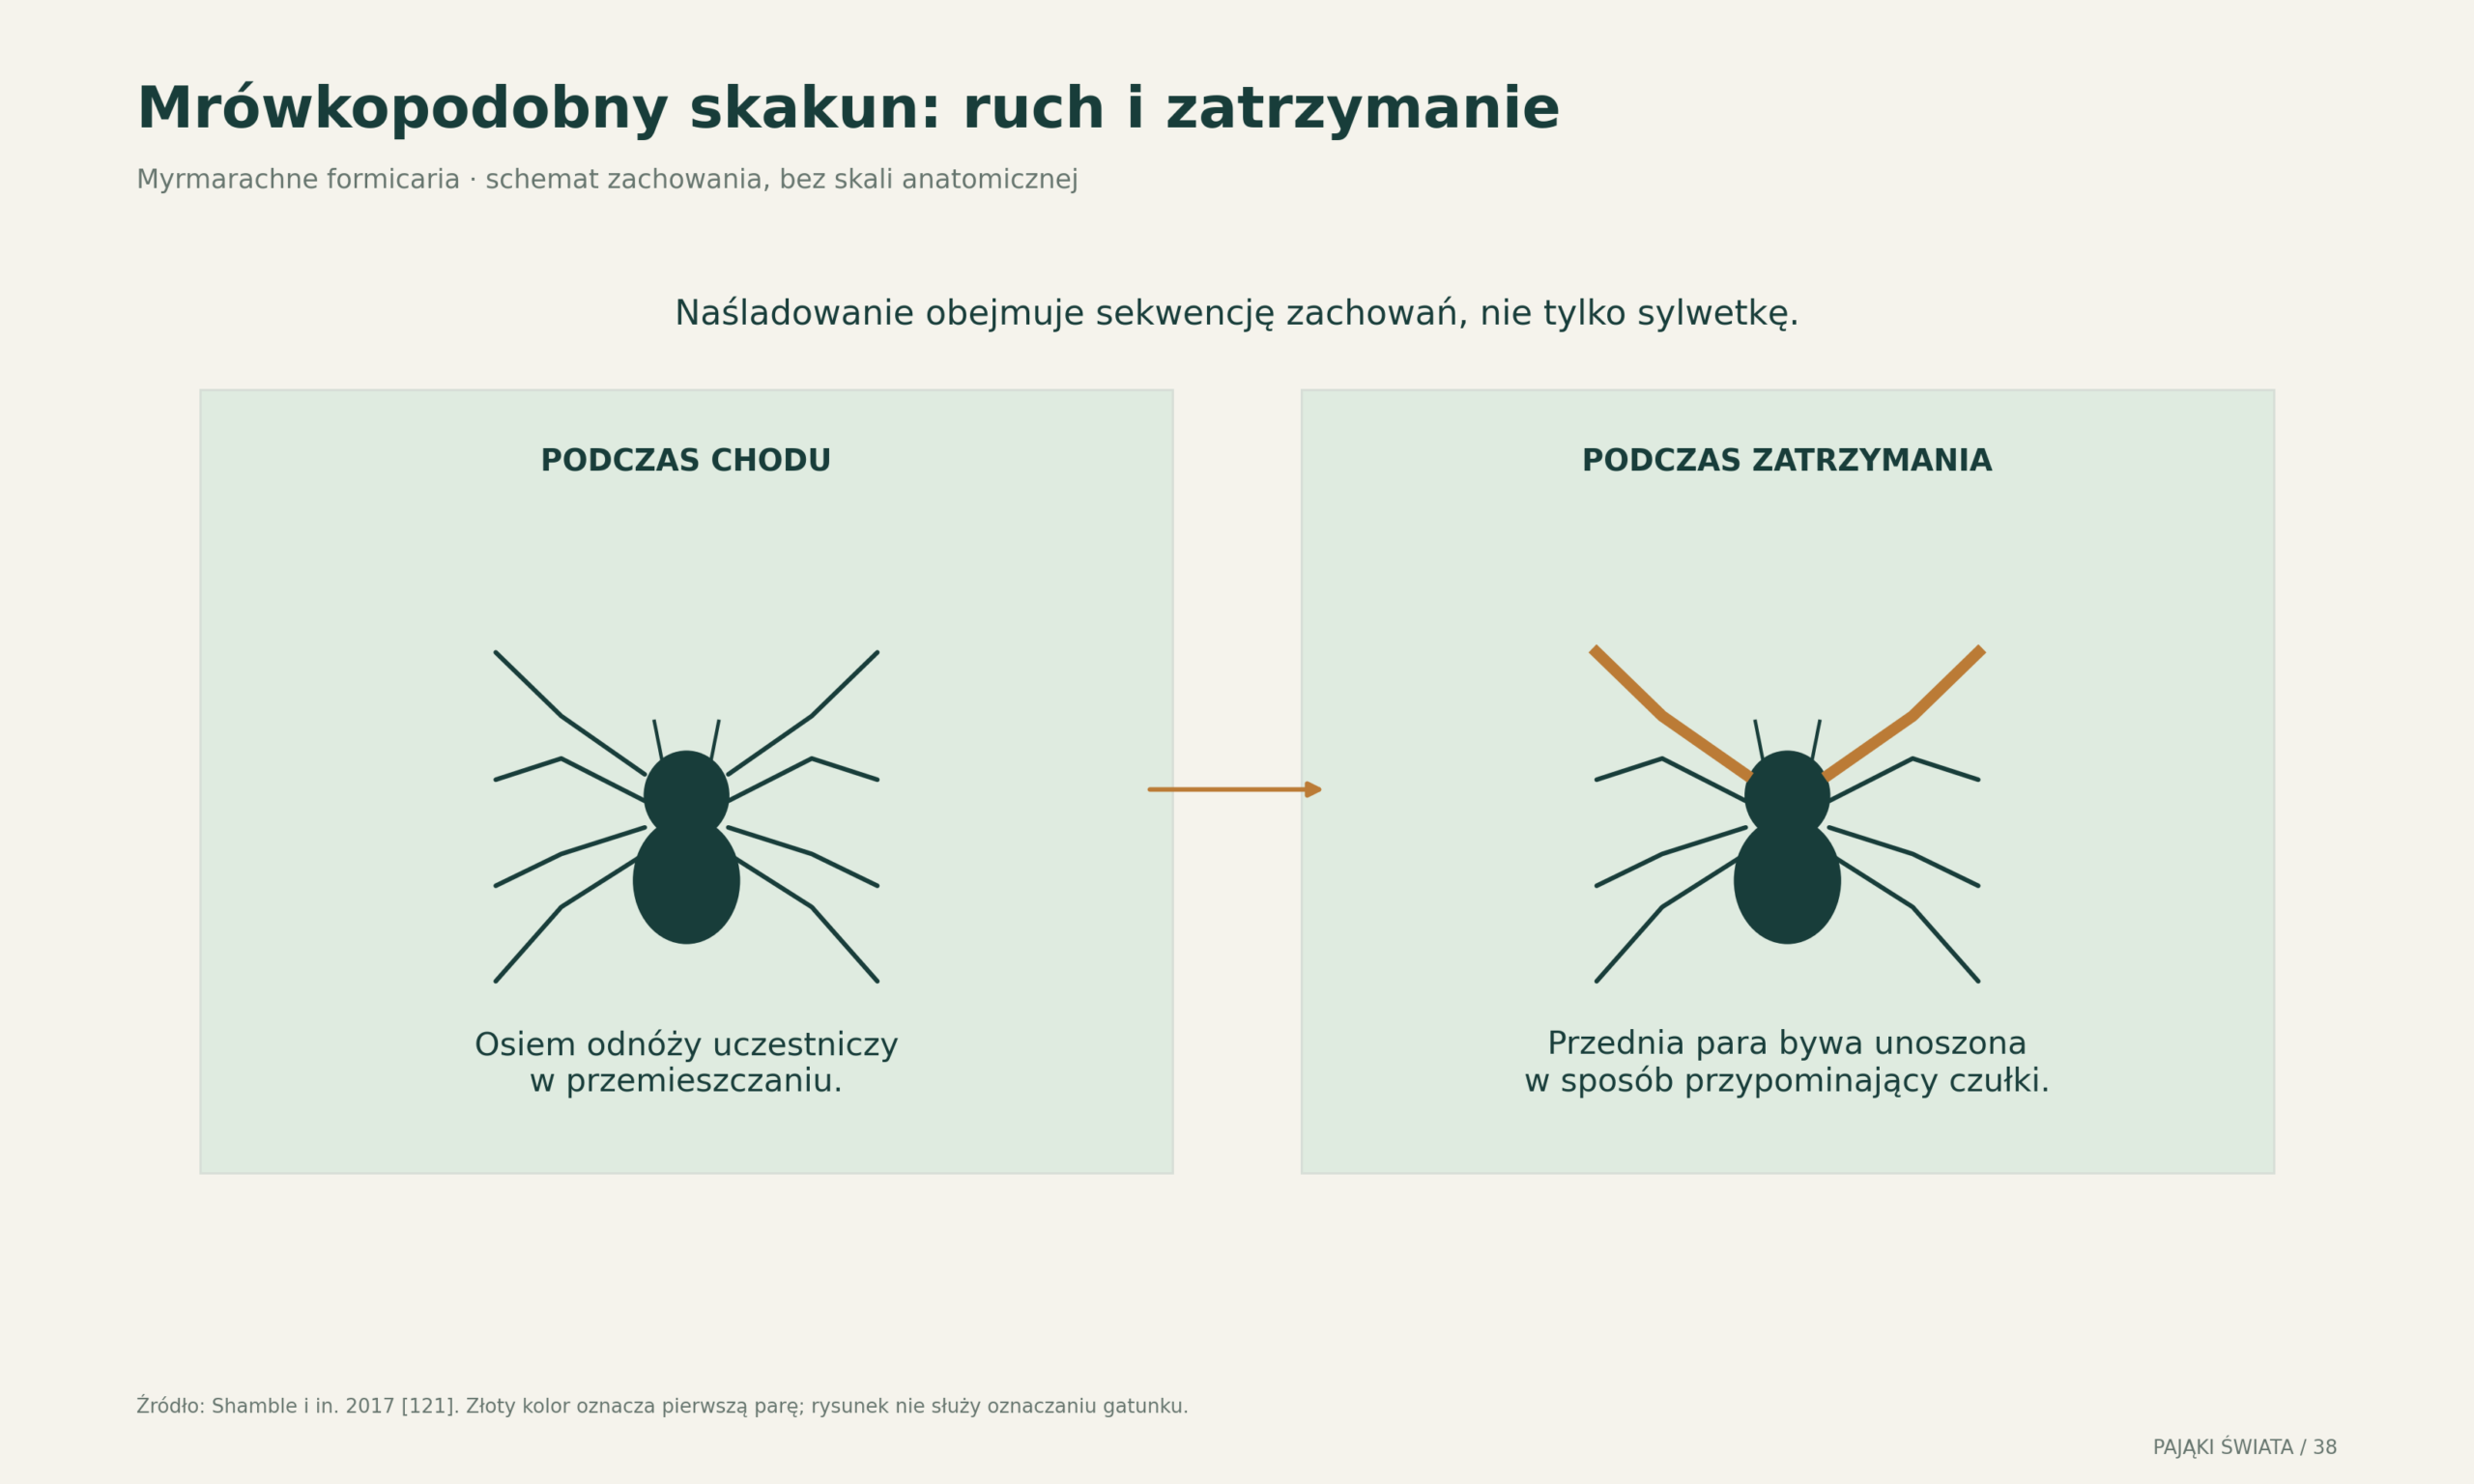
W eksperymencie z wideo kontrolujemy bodziec wizualny, ale ograniczamy zapach, dotyk, drgania podłoża i możliwość naturalnej ucieczki. Tak skonstruowany test dobrze rozdziela pewne hipotezy, nie odtwarza jednak całego spotkania w przyrodzie. Mocny opis wyniku powinien wymienić zarówno reakcję badanego zwierzęcia, jak i rodzaj bodźca, na który reagowało. Oglądanie obrazu ofiary oraz schwytanie żywej ofiary nie są identycznymi miarami.
Mały aparat, ogromne przyspieszenie
U Mecysmaucheniidae wyewoluowały wielokrotnie wyjątkowo szybkie uderzenia szczękoczułkami. Badanie z 2016 roku wykazało cztery niezależne początki silnego zwiększenia mocy ataku w analizowanej historii grupy. [122] Późniejsza analiza Zearchaea podała średnią szczytowej prędkości kątowej 25,0 tys. radianów na sekundę oraz średni czas ruchu 0,0843 ms. Podane odchylenia standardowe wynosiły odpowiednio 4,8 tys. rad/s i 0,017 ms. Materiał Zearchaea mógł obejmować kilka gatunków. [131]
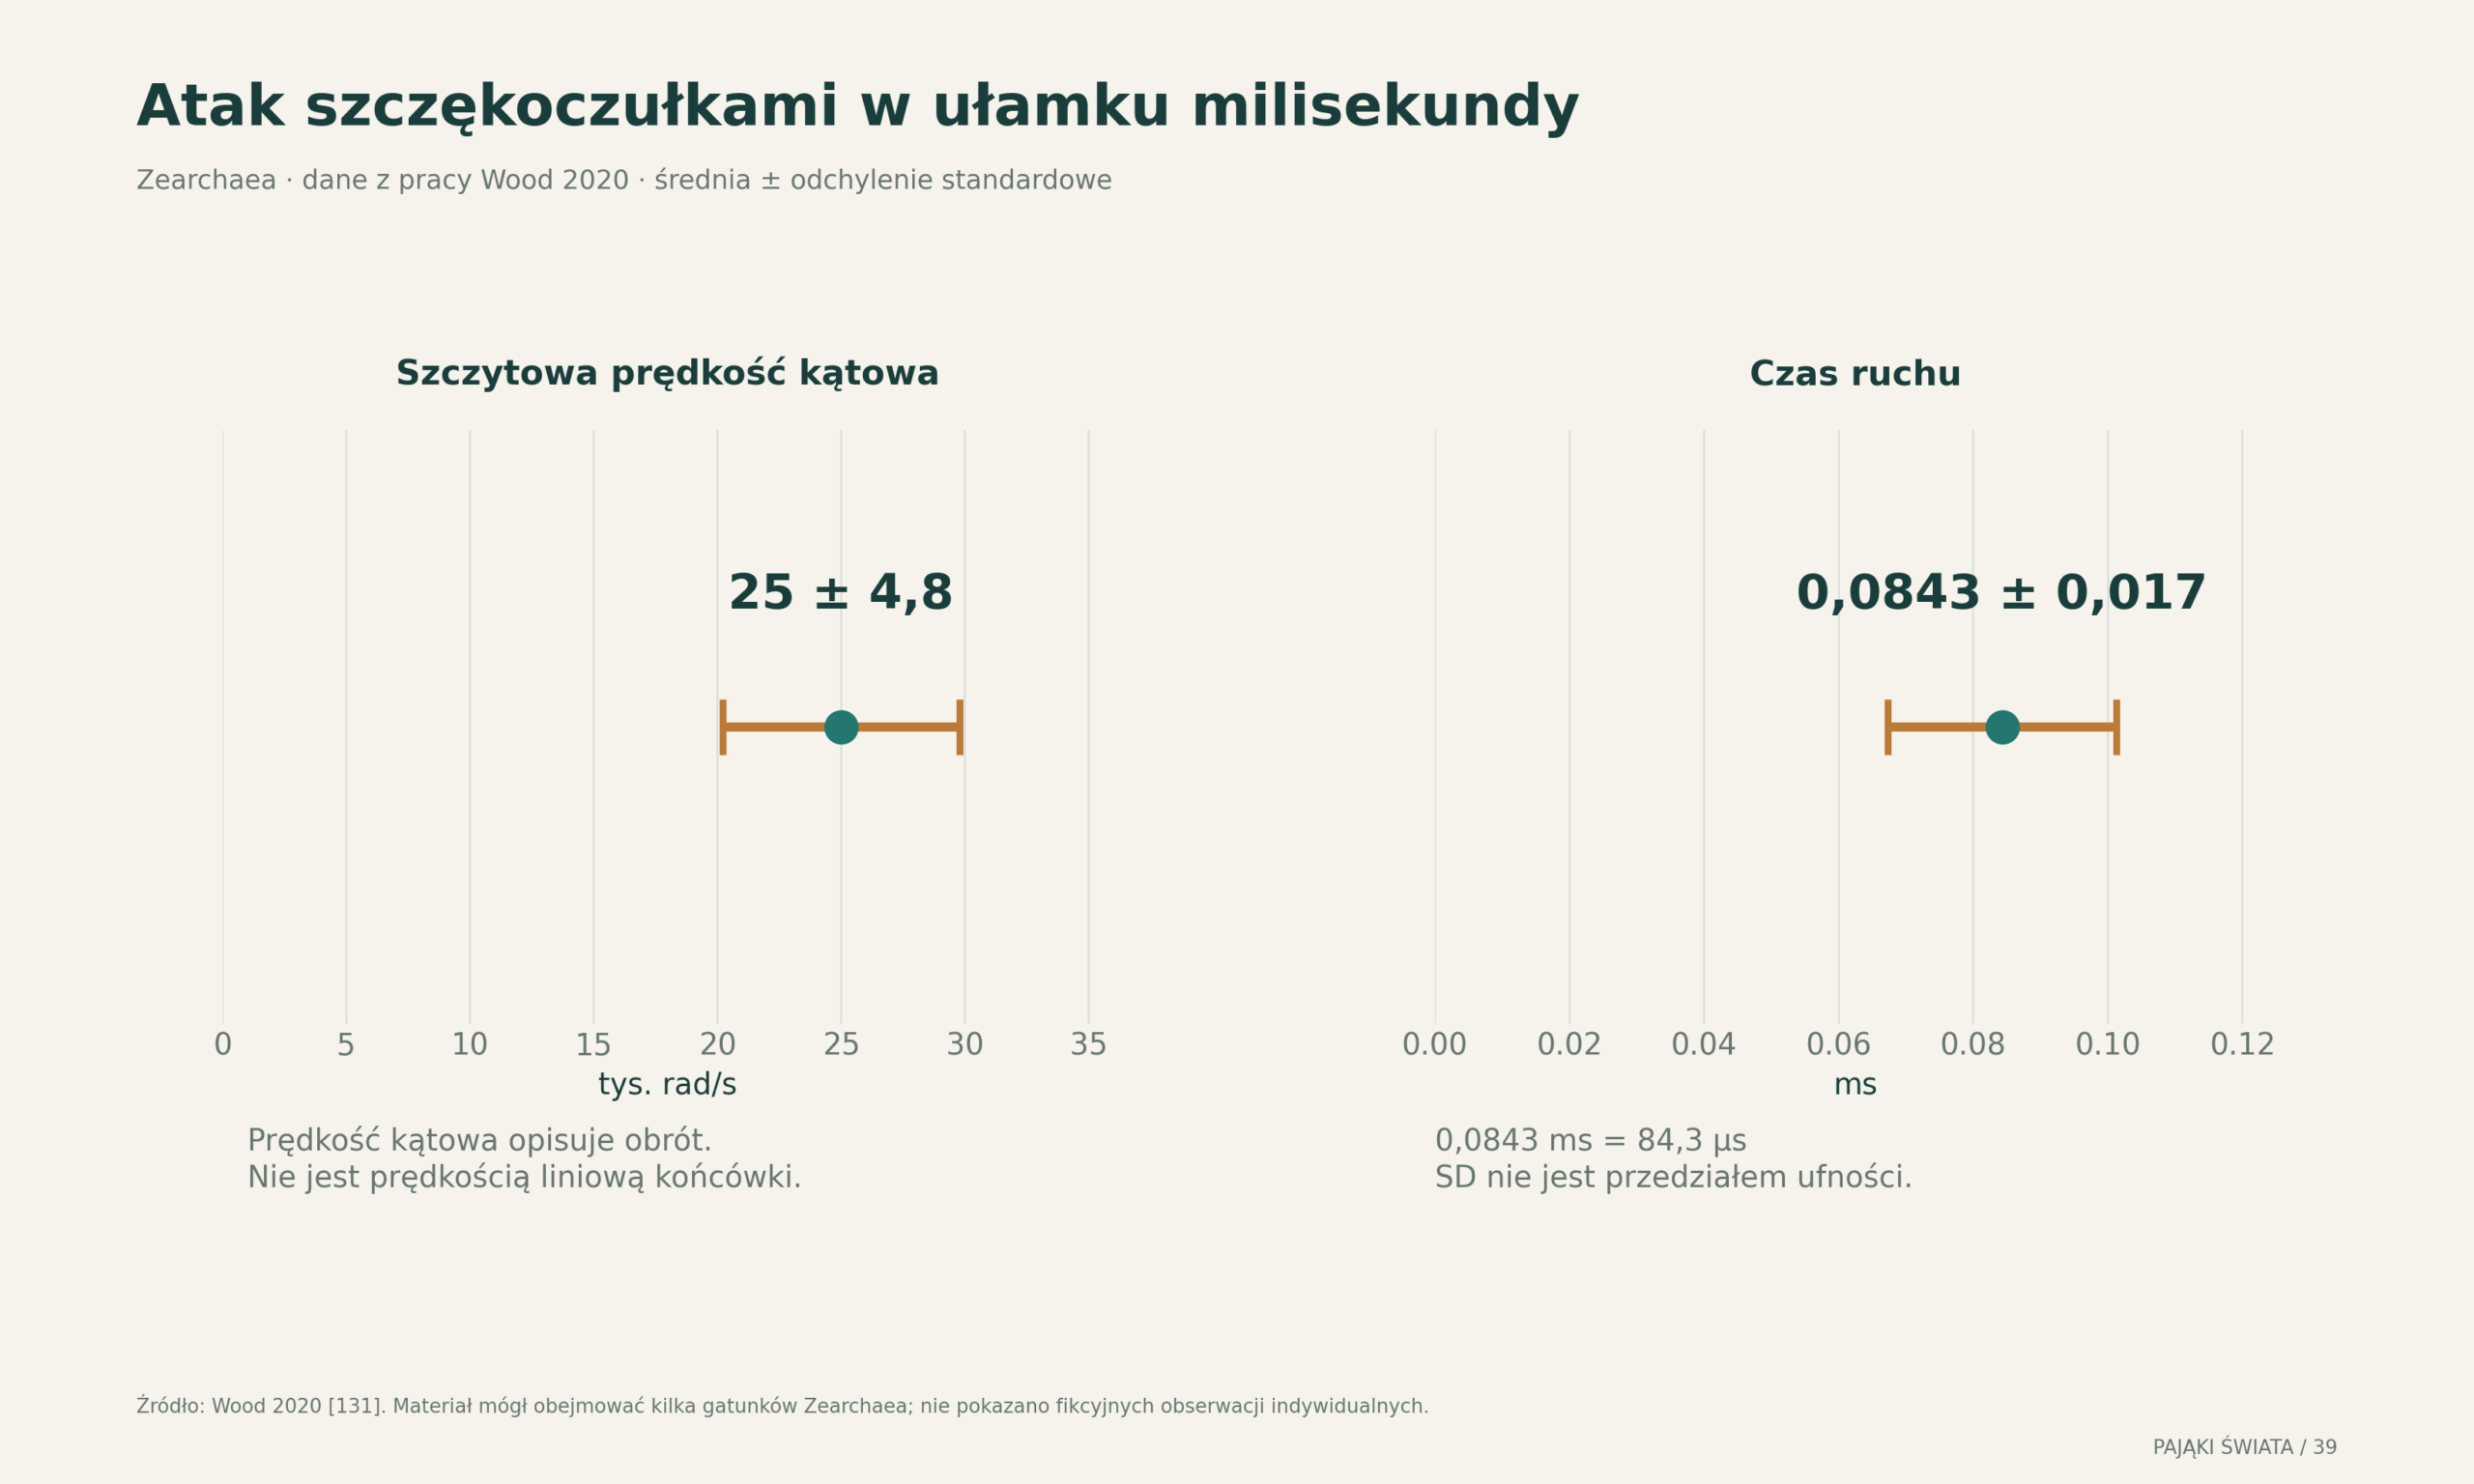
Rozróżnienie prędkości kątowej i liniowej jest niezbędne. Pierwsza mówi o tempie obrotu, druga zależy również od odległości punktu od osi. To samo tempo obrotu daje inną prędkość końcówki krótkiego i długiego przydatka. Z tego powodu rekordów nie można bezpośrednio układać w jedną tabelę bez wskazania mierzonej wielkości.
Kolejne rozróżnienie dotyczy średniej i maksimum. Średnia charakteryzuje zbiór zarejestrowanych zdarzeń; pojedynczy najszybszy ruch odpowiada na pytanie o najlepszy wynik w tej próbie. Odchylenie standardowe opisuje rozrzut, a nie przedział ufności średniej. Na rycinie zachowano osobne panele i jawne jednostki, aby atrakcyjna liczba nie przesłoniła konstrukcji pomiaru.
Dlaczego mechanizm jest ciekawszy od rekordu
Model magazynowania energii sprężystej i szybkiego jej uwolnienia wyjaśnia, jak krótki ruch może osiągać parametry niedostępne dla prostego, bezpośredniego skurczu mięśnia. W badaniach tej grupy łączono filmowanie, obrazowanie struktury i analizę działania aparatu. [122, 131] Wniosek nie brzmi jednak, że każdy gatunek rodziny używa identycznego mechanizmu. Różnorodność bliskich krewnych jest częścią problemu do wyjaśnienia.
Naśladowanie mrówki i gwałtowny atak szczękoczułkami działają na różnych etapach spotkania. Pierwsze może zmieniać decyzję innego zwierzęcia jeszcze przed atakiem; drugie wpływa na przebieg samego kontaktu. Zestawienie tych strategii pokazuje, dlaczego pojedyncza skala „sprawności drapieżnika” byłaby mało informacyjna. Każde rozwiązanie ma inny mechanizm, innego odbiorcę i inny koszt.
41 Pająk na kwiecie: drapieżnictwo, sygnały i zapylanie
Jeden kwiat, kilka interesów
Kwiat może być jednocześnie miejscem pobierania pokarmu przez owada i miejscem zasadzki. Pojawienie się drapieżnika zmienia nie tylko ryzyko śmierci zapylacza. Może zmieniać czas oglądania kwiatu, decyzję o lądowaniu i wybór kolejnego płatu roślin. Dla rośliny znaczenie ma jednak ostateczny przepływ pyłku i powodzenie rozrodu. Nie każdy etap tego łańcucha zmienia się w tym samym kierunku.
W doświadczeniu z Thomisus spectabilis biały pająk na białym kwiecie nie był po prostu niewidoczny dla pszczoły. Różnice odbicia ultrafioletu mogły tworzyć atrakcyjny sygnał. [123] Rycina przedstawia tę zależność jako schemat interpretacyjny. Nie symuluje dosłownie „obrazu widzianego oczami pszczoły”: taki obraz wymagałby pomiarów widmowych, modelu receptorów i założeń o oświetleniu.
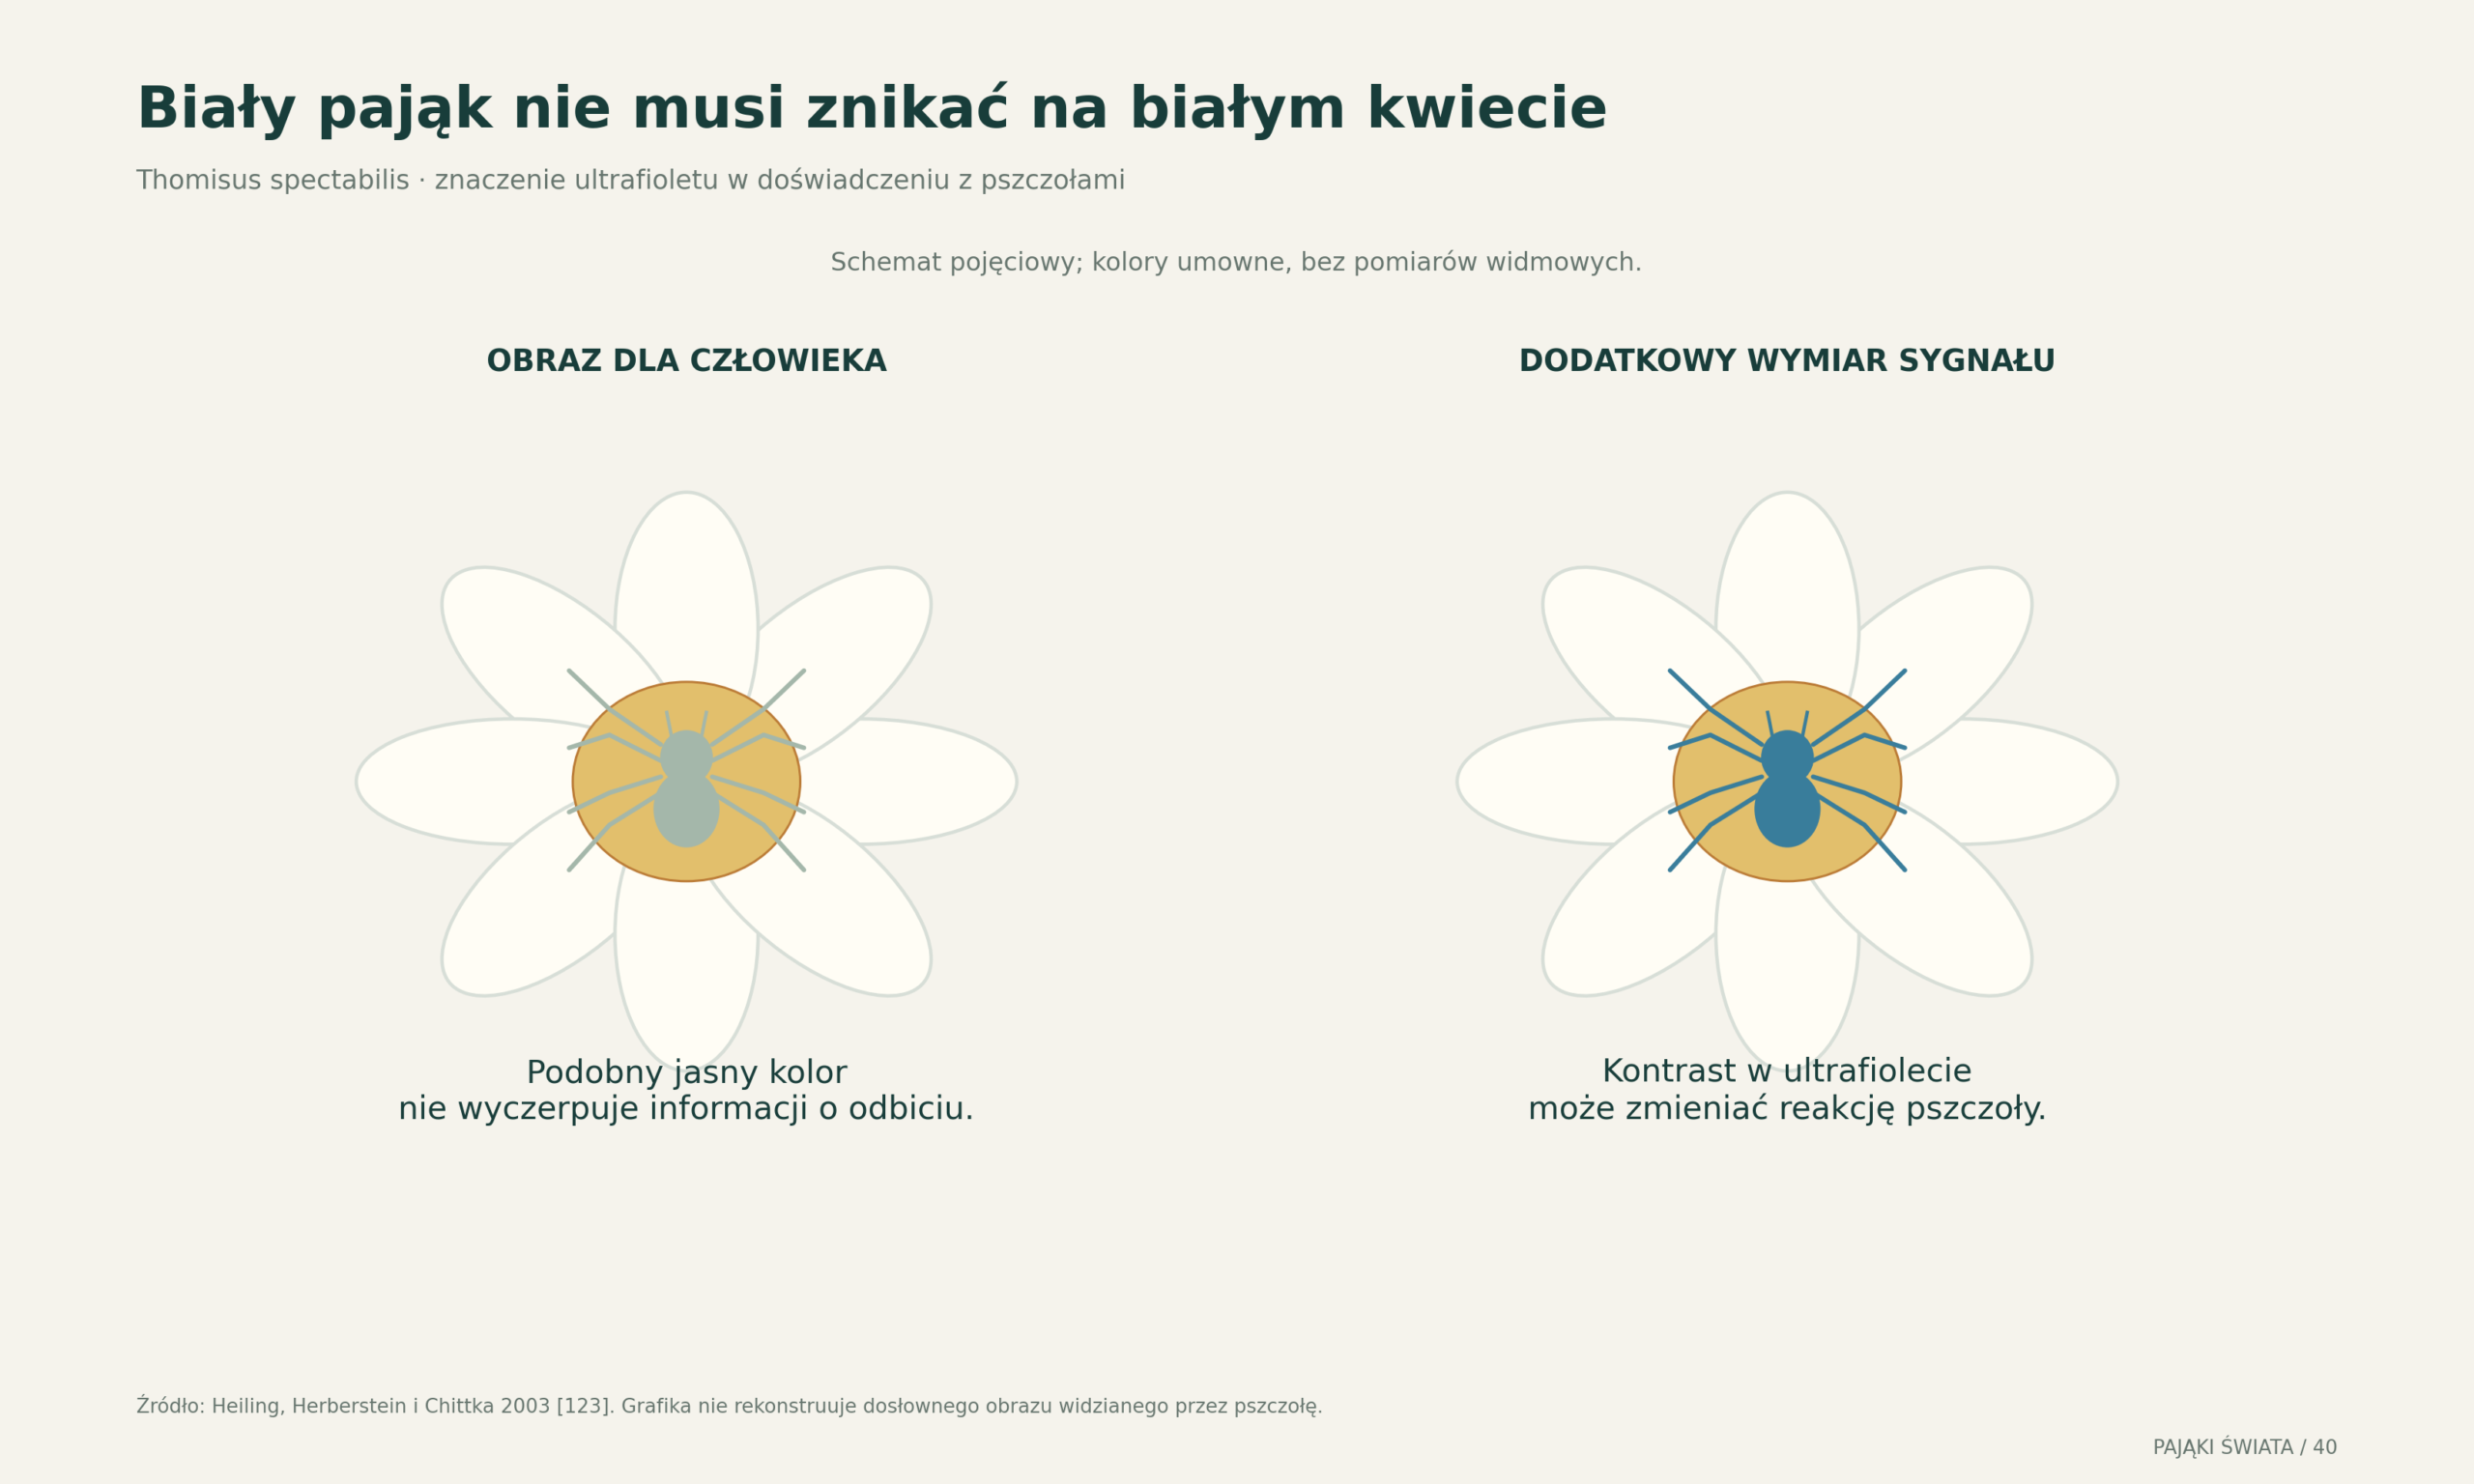
Różne gatunki zapylaczy reagują odmiennie
Dukas i Morse w eksperymencie terenowym z 2003 roku stwierdzili rzadsze odwiedziny trzmiela Bombus ternarius na płatach roślin z Misumena vatia. Dwa inne badane gatunki trzmieli nie unikały takich płatów. Dla pszczoły miodnej podobny kierunek różnicy nie osiągnął istotności statystycznej. [132] Zestawienie tych wyników uniemożliwia prosty wniosek, że „pszczoły zawsze rozpoznają i omijają pająki”.
W innym doświadczeniu tych autorów, opublikowanym w 2005 roku, porównano dziesięć par płatów roślin. Obecność pająków wiązała się z mniejszą liczbą wizyt pszczół miodnych, ale nie wykazano wpływu na usuwanie pyłkowin ani na liczbę i masę nasion. [133] To szczególnie ważne rozróżnienie między zmianą zachowania zwierzęcia a końcowym wynikiem reprodukcyjnym rośliny.
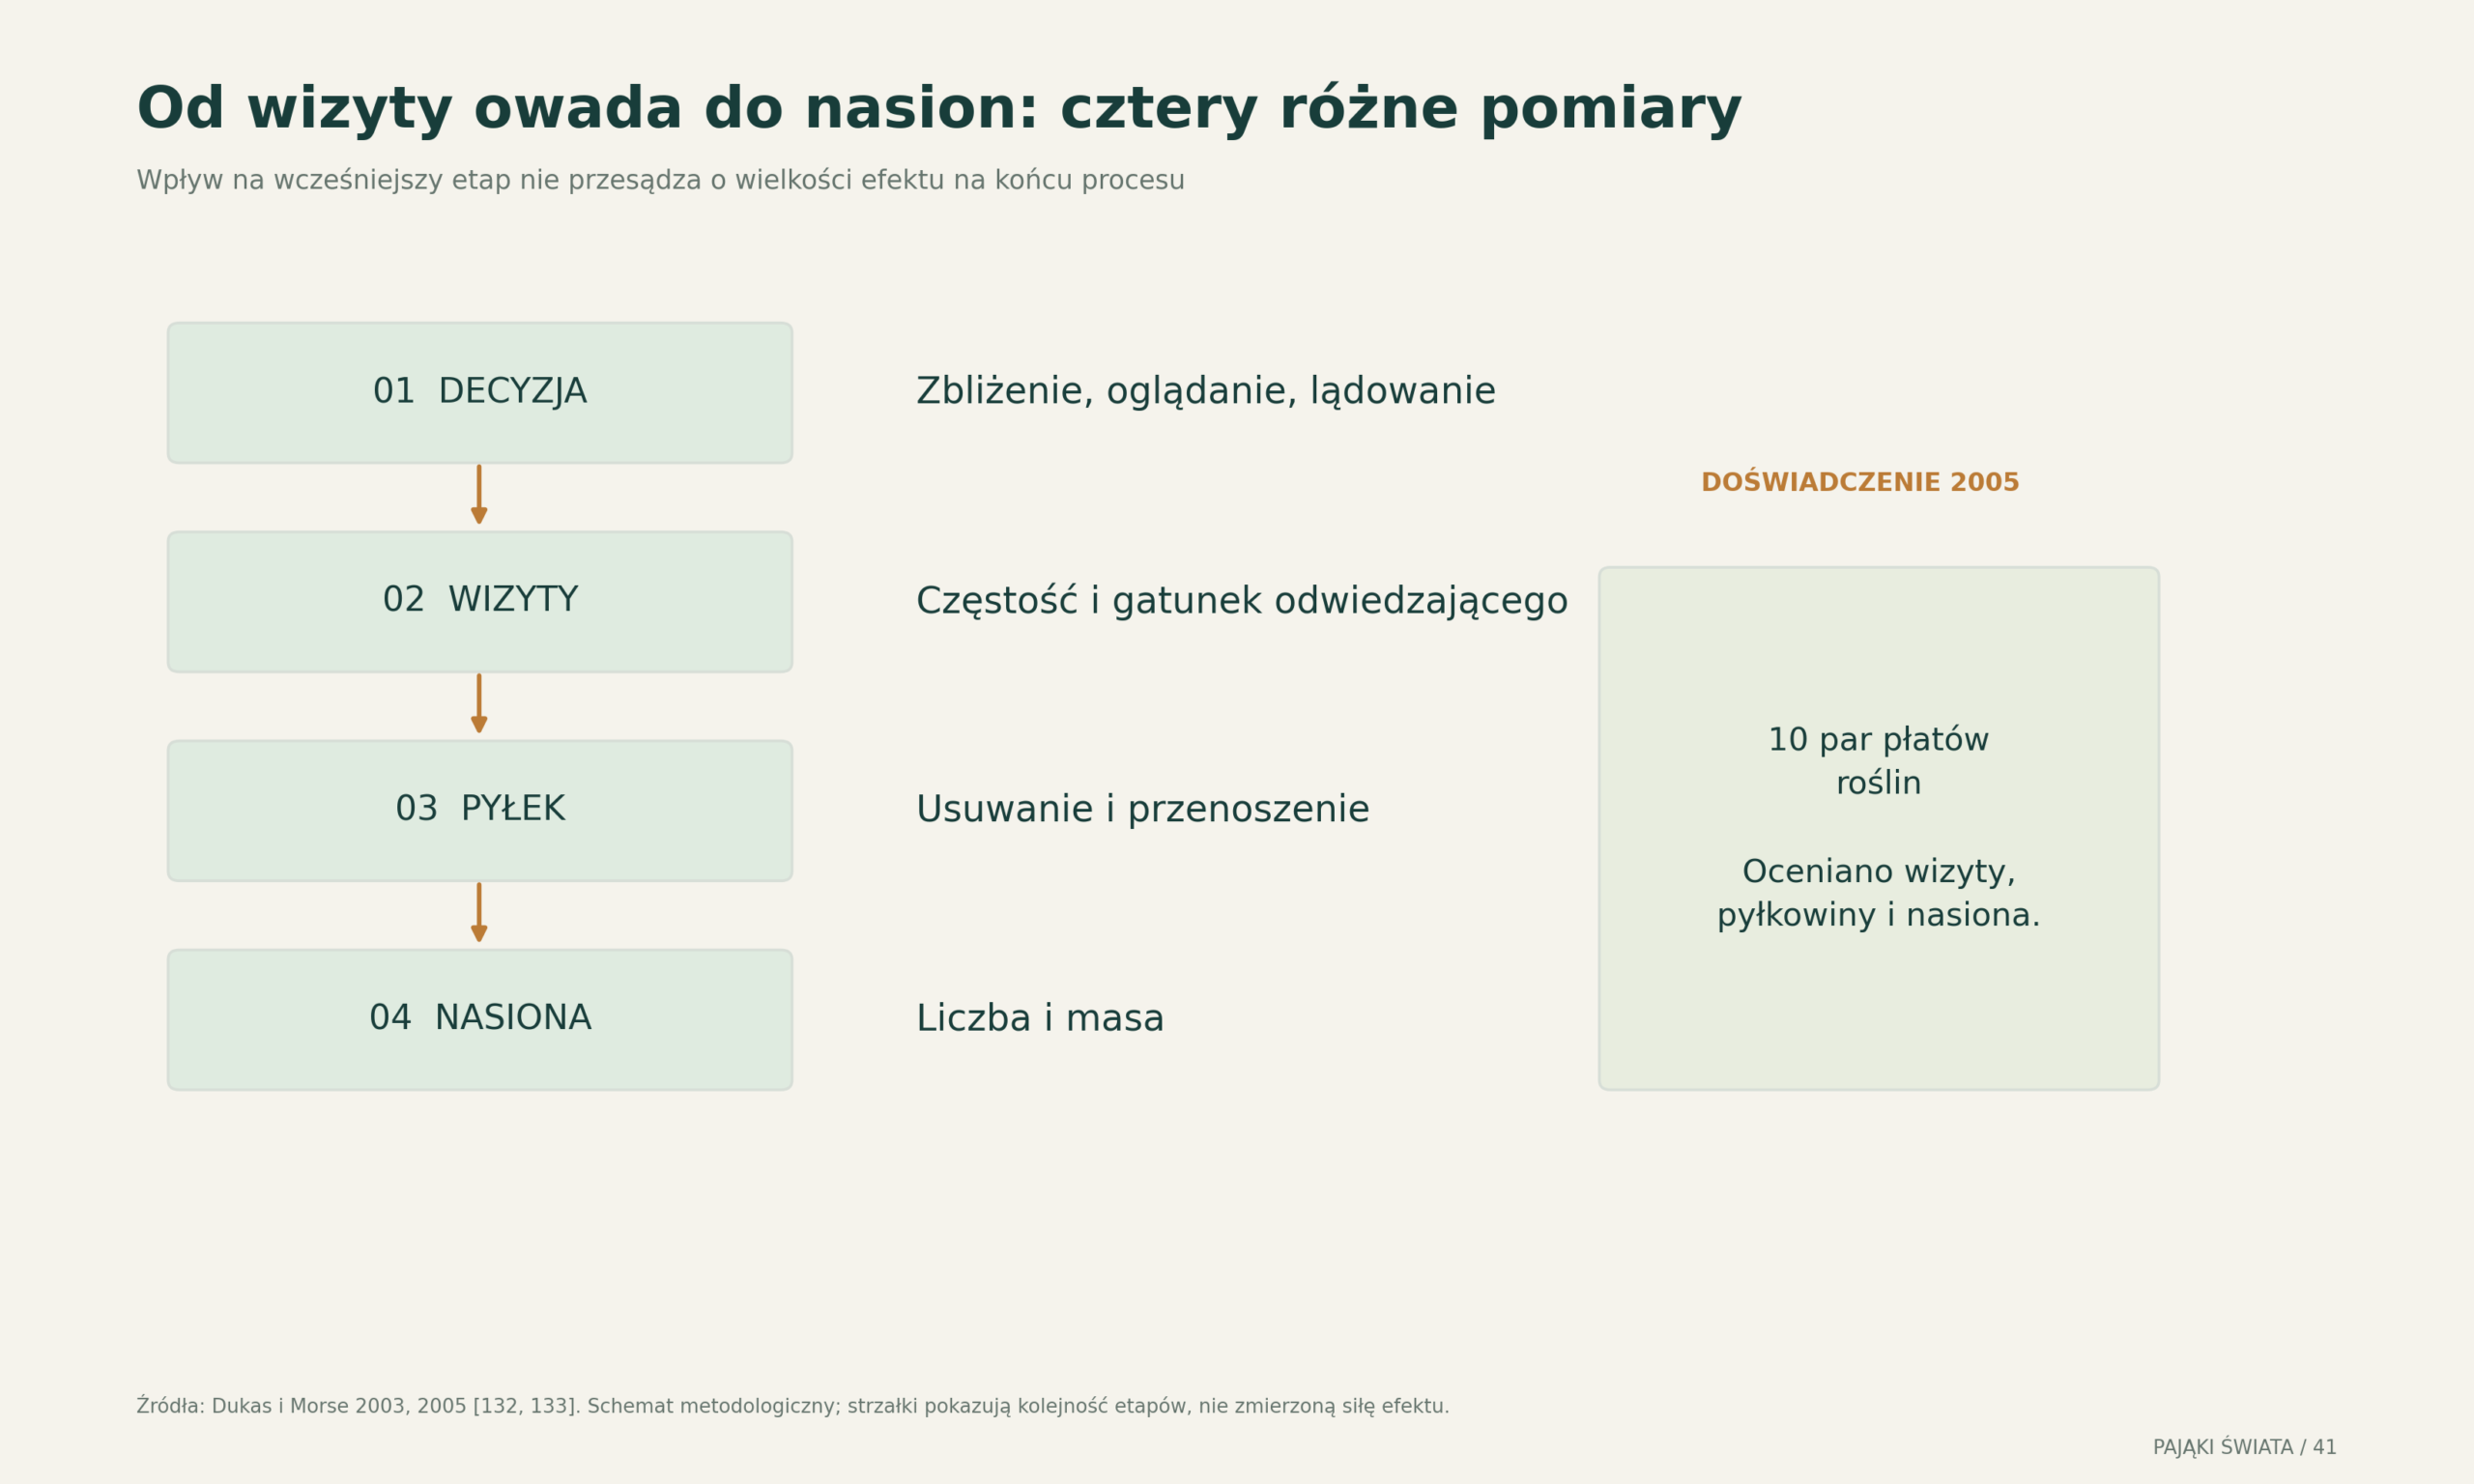
Nieistotny statystycznie wynik nie dowodzi, że efekt jest dokładnie równy zeru. Zależy także od precyzji pomiaru i siły testu. Z kolei istotna różnica w liczbie wizyt nie gwarantuje dużej różnicy biologicznej. Gdy pozostałe wizyty wystarczają do zapylenia, dodatkowe odwiedziny mogą mieć małe znaczenie. To rozumowanie wyjaśnia, dlaczego należy mierzyć kilka etapów procesu, zamiast wybierać jeden najbardziej efektowny wskaźnik.
Jak zaplanować rzetelne porównanie
Własny projekt terenowy powinien rozdzielać obecność pająka od różnic między roślinami. Płaty z drapieżnikiem mogą różnić się liczbą kwiatów, nasłonecznieniem lub fazą kwitnienia. Rozsądny układ obejmuje porównywalne płaty, powtarzane obserwacje i pomiary wyniku rozrodu. Trzeba też odnotować gatunki odwiedzających owadów: połączenie ich w jedną kategorię może ukryć przeciwne odpowiedzi.
W zastosowaniach rolniczych nie wystarczy więc stwierdzić, że pająk schwytał zapylacza, aby obliczyć stratę plonu. Potrzebny jest bilans uwzględniający również pozostałe interakcje i ograniczenia rozrodu rośliny. Analogicznie schwytanie owada roślinożernego nie pozwala od razu przypisać konkretnej korzyści ekonomicznej. Wartość doświadczeń polega właśnie na przejściu od pojedynczego zdarzenia do porównania całego procesu.
42 Arktyka i strefa pływów: życie w rytmie środowiska
Kalendarz śniegu zmienia kalendarz rozrodu
Badanie Pardosa glacialis w Zackenberg wykorzystało monitoring z lat 1996–2014. Analizowano wielkość samic oraz zawartość kokonów, aby powiązać strukturę rozrodu z terminem zaniku pokrywy śnieżnej. Wcześniejsze wiosny sprzyjały pojawieniu się drugiej partii jaj. [125] Wartość tego przykładu polega na długości szeregu obserwacji i połączeniu dat środowiskowych z cechą biologiczną.
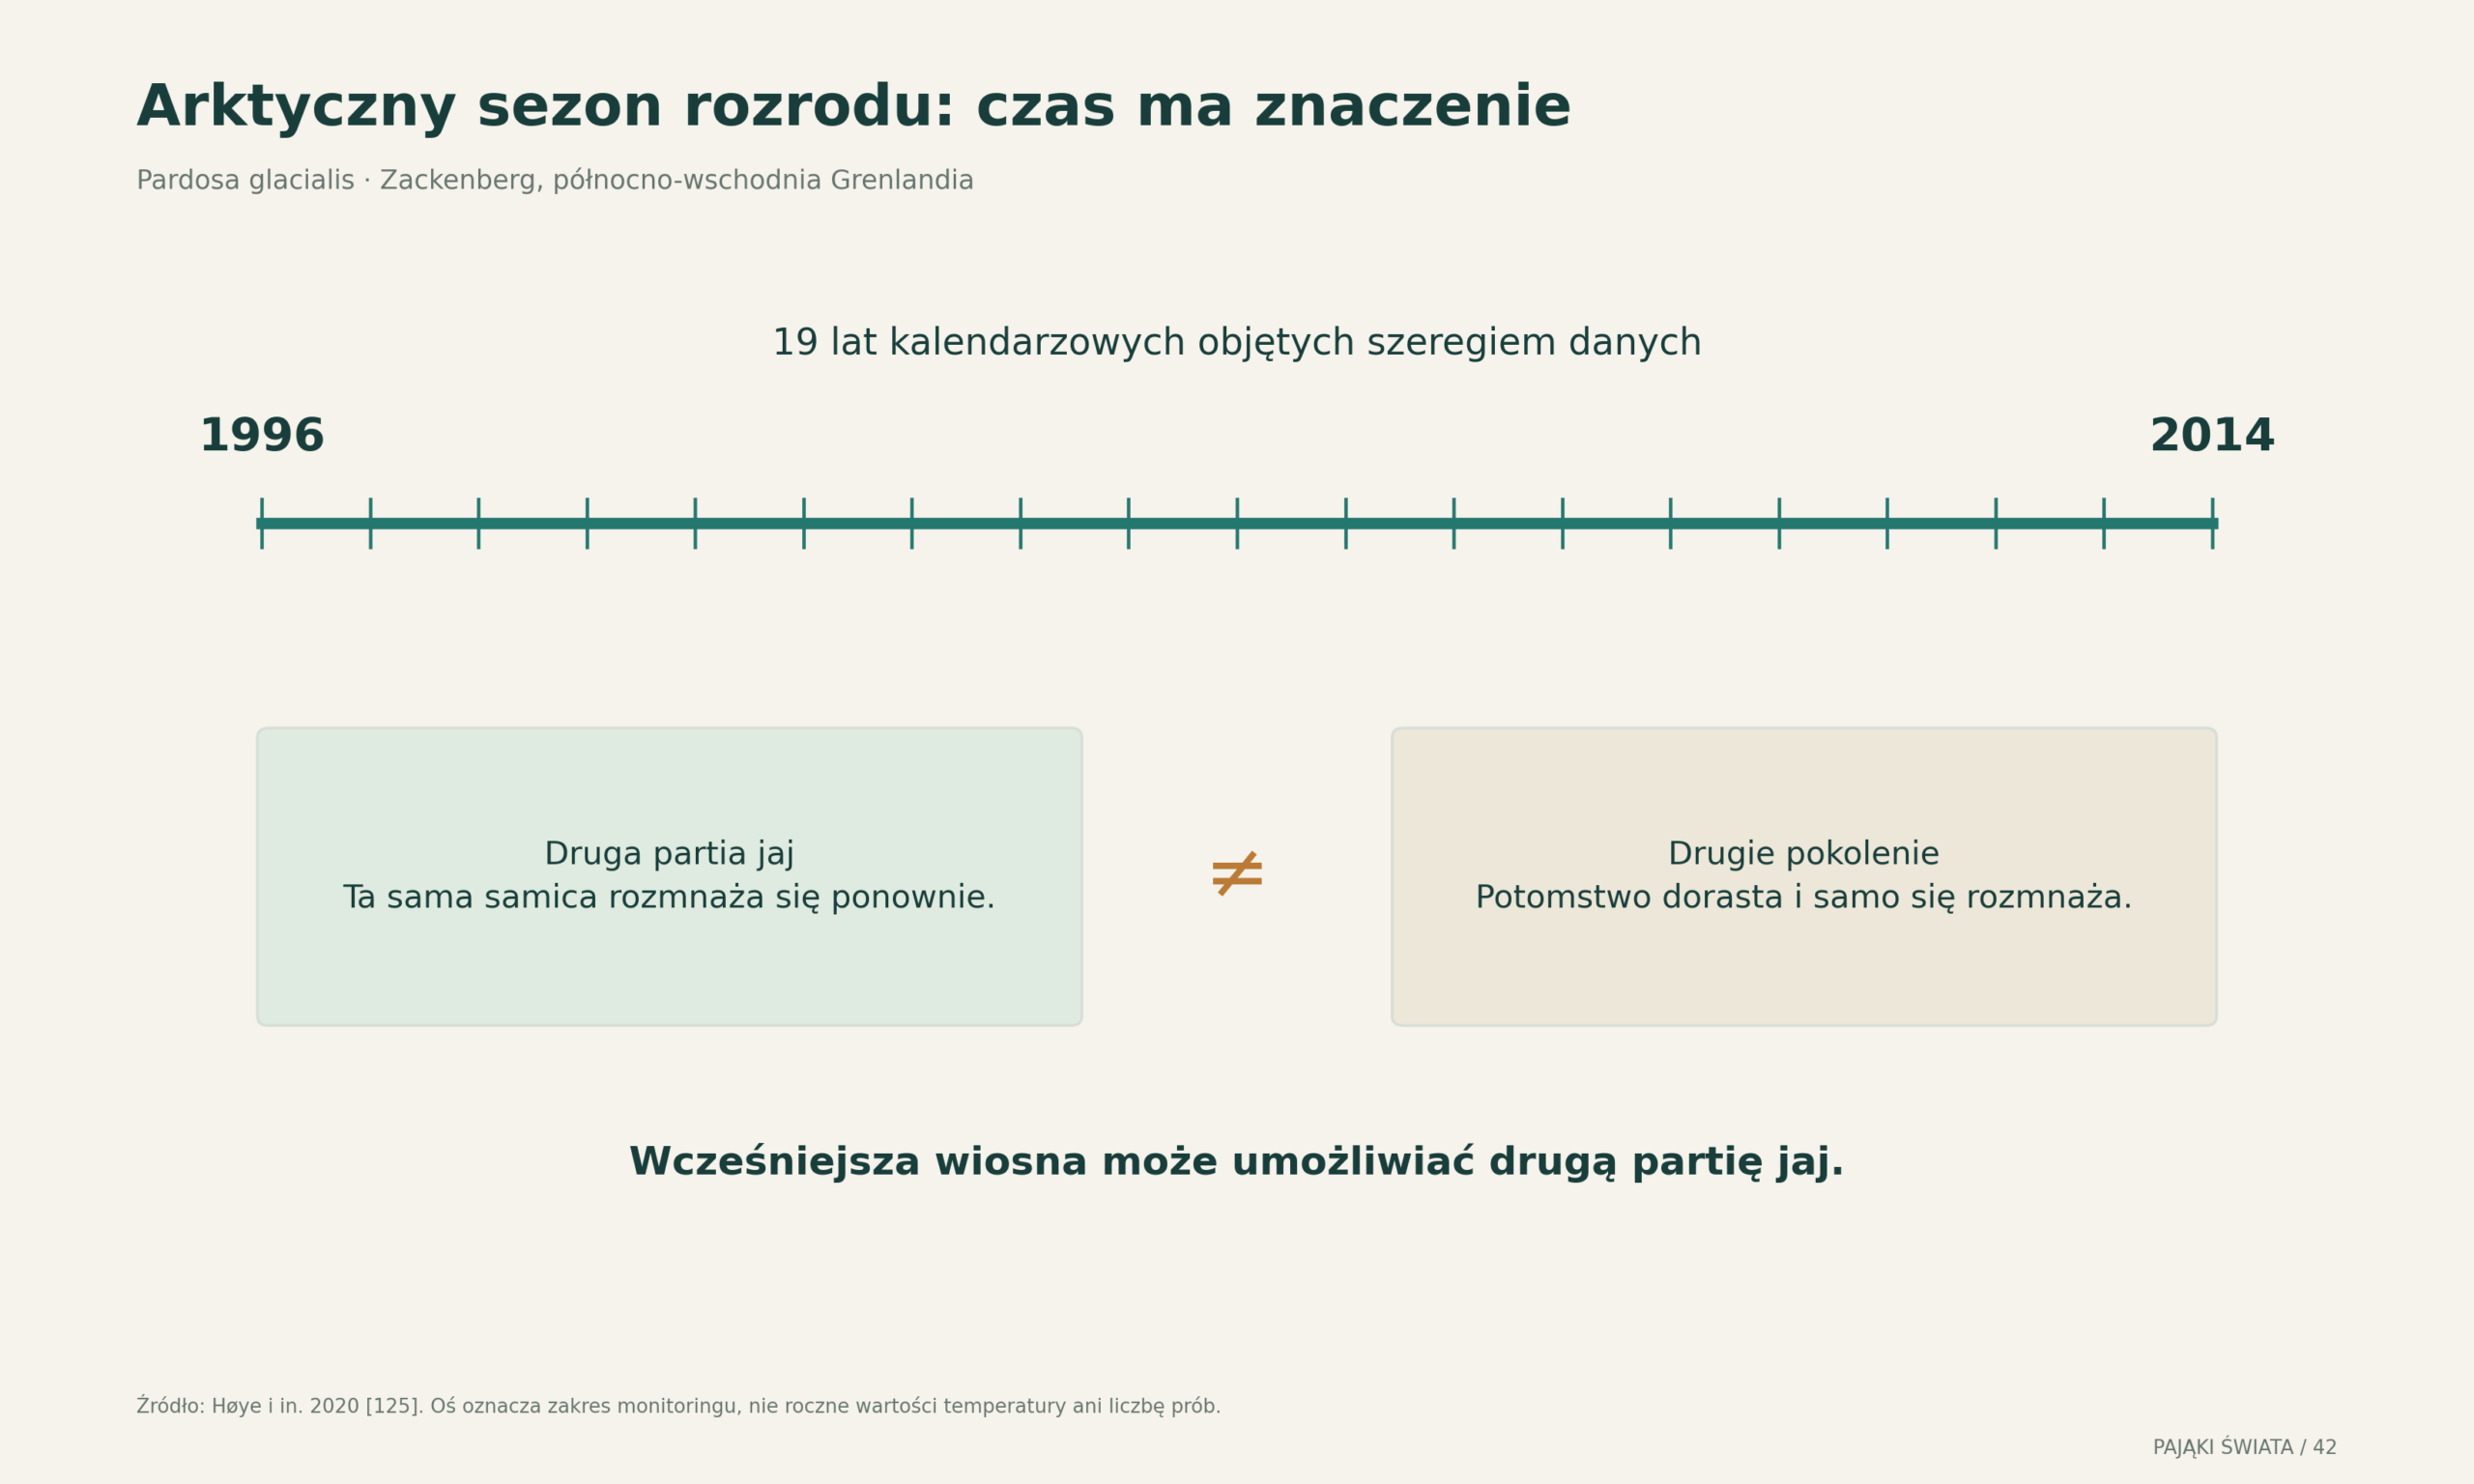
Sam wzrost produkcji jaj nie rozstrzyga o przyszłej liczebności populacji. Między złożeniem jaj a dojrzałością kolejnego pokolenia znajdują się etapy przeżycia, zdobywania pokarmu, linienia i zimowania. Możliwy dodatni efekt na jednym etapie może zostać osłabiony na innym. Dlatego odpowiedź populacji na klimat powinna być badana przez cały cykl życia, a nie jedynie w momencie najbardziej dogodnym do poboru prób.
Drapieżnik może oddziaływać także na rozkład ściółki
Eksperyment Koltz i współautorów na tundrze północnej Alaski łączył manipulację temperaturą z różnym zagęszczeniem pogońcowatych. W warunkach temperatury otoczenia większe zagęszczenie wiązało się z szybszym rozkładem materiału w warstwie ściółki; przy ocieplaniu kierunek odpowiedzi ulegał odwróceniu. Autorzy analizowali rolę skoczogonków i pośrednich oddziaływań w sieci pokarmowej. [134]
Nie daje to podstawy do ogólnego hasła, że pająki „hamują ocieplenie”. Doświadczenie mierzyło proces w określonym układzie tundrowym. Jego siłą jest wykazanie, że temperatura może zmienić charakter interakcji, a nie tylko zwiększyć szybkość wszystkiego, co już zachodzi. Przeniesienie wniosku na cały region wymagałoby informacji o powierzchni siedlisk, sezonowości i zmienności przestrzennej.
Kryjówka w strefie pływów
W strefie pływów dostępność powierzchni zmienia się wielokrotnie, a schronienie jest elementem funkcjonowania zwierzęcia. Desis marina wykorzystuje jedwab w osłanianiu kryjówek. Badania nad jedwabiem tego gatunku, topika Argyroneta aquatica i lądowego Badumna longinqua wykazały łącznie 47 homologów z rodziny genów spidroin oraz interesujące motywy aminokwasowe związane z właściwościami hydrofobowymi. [136]
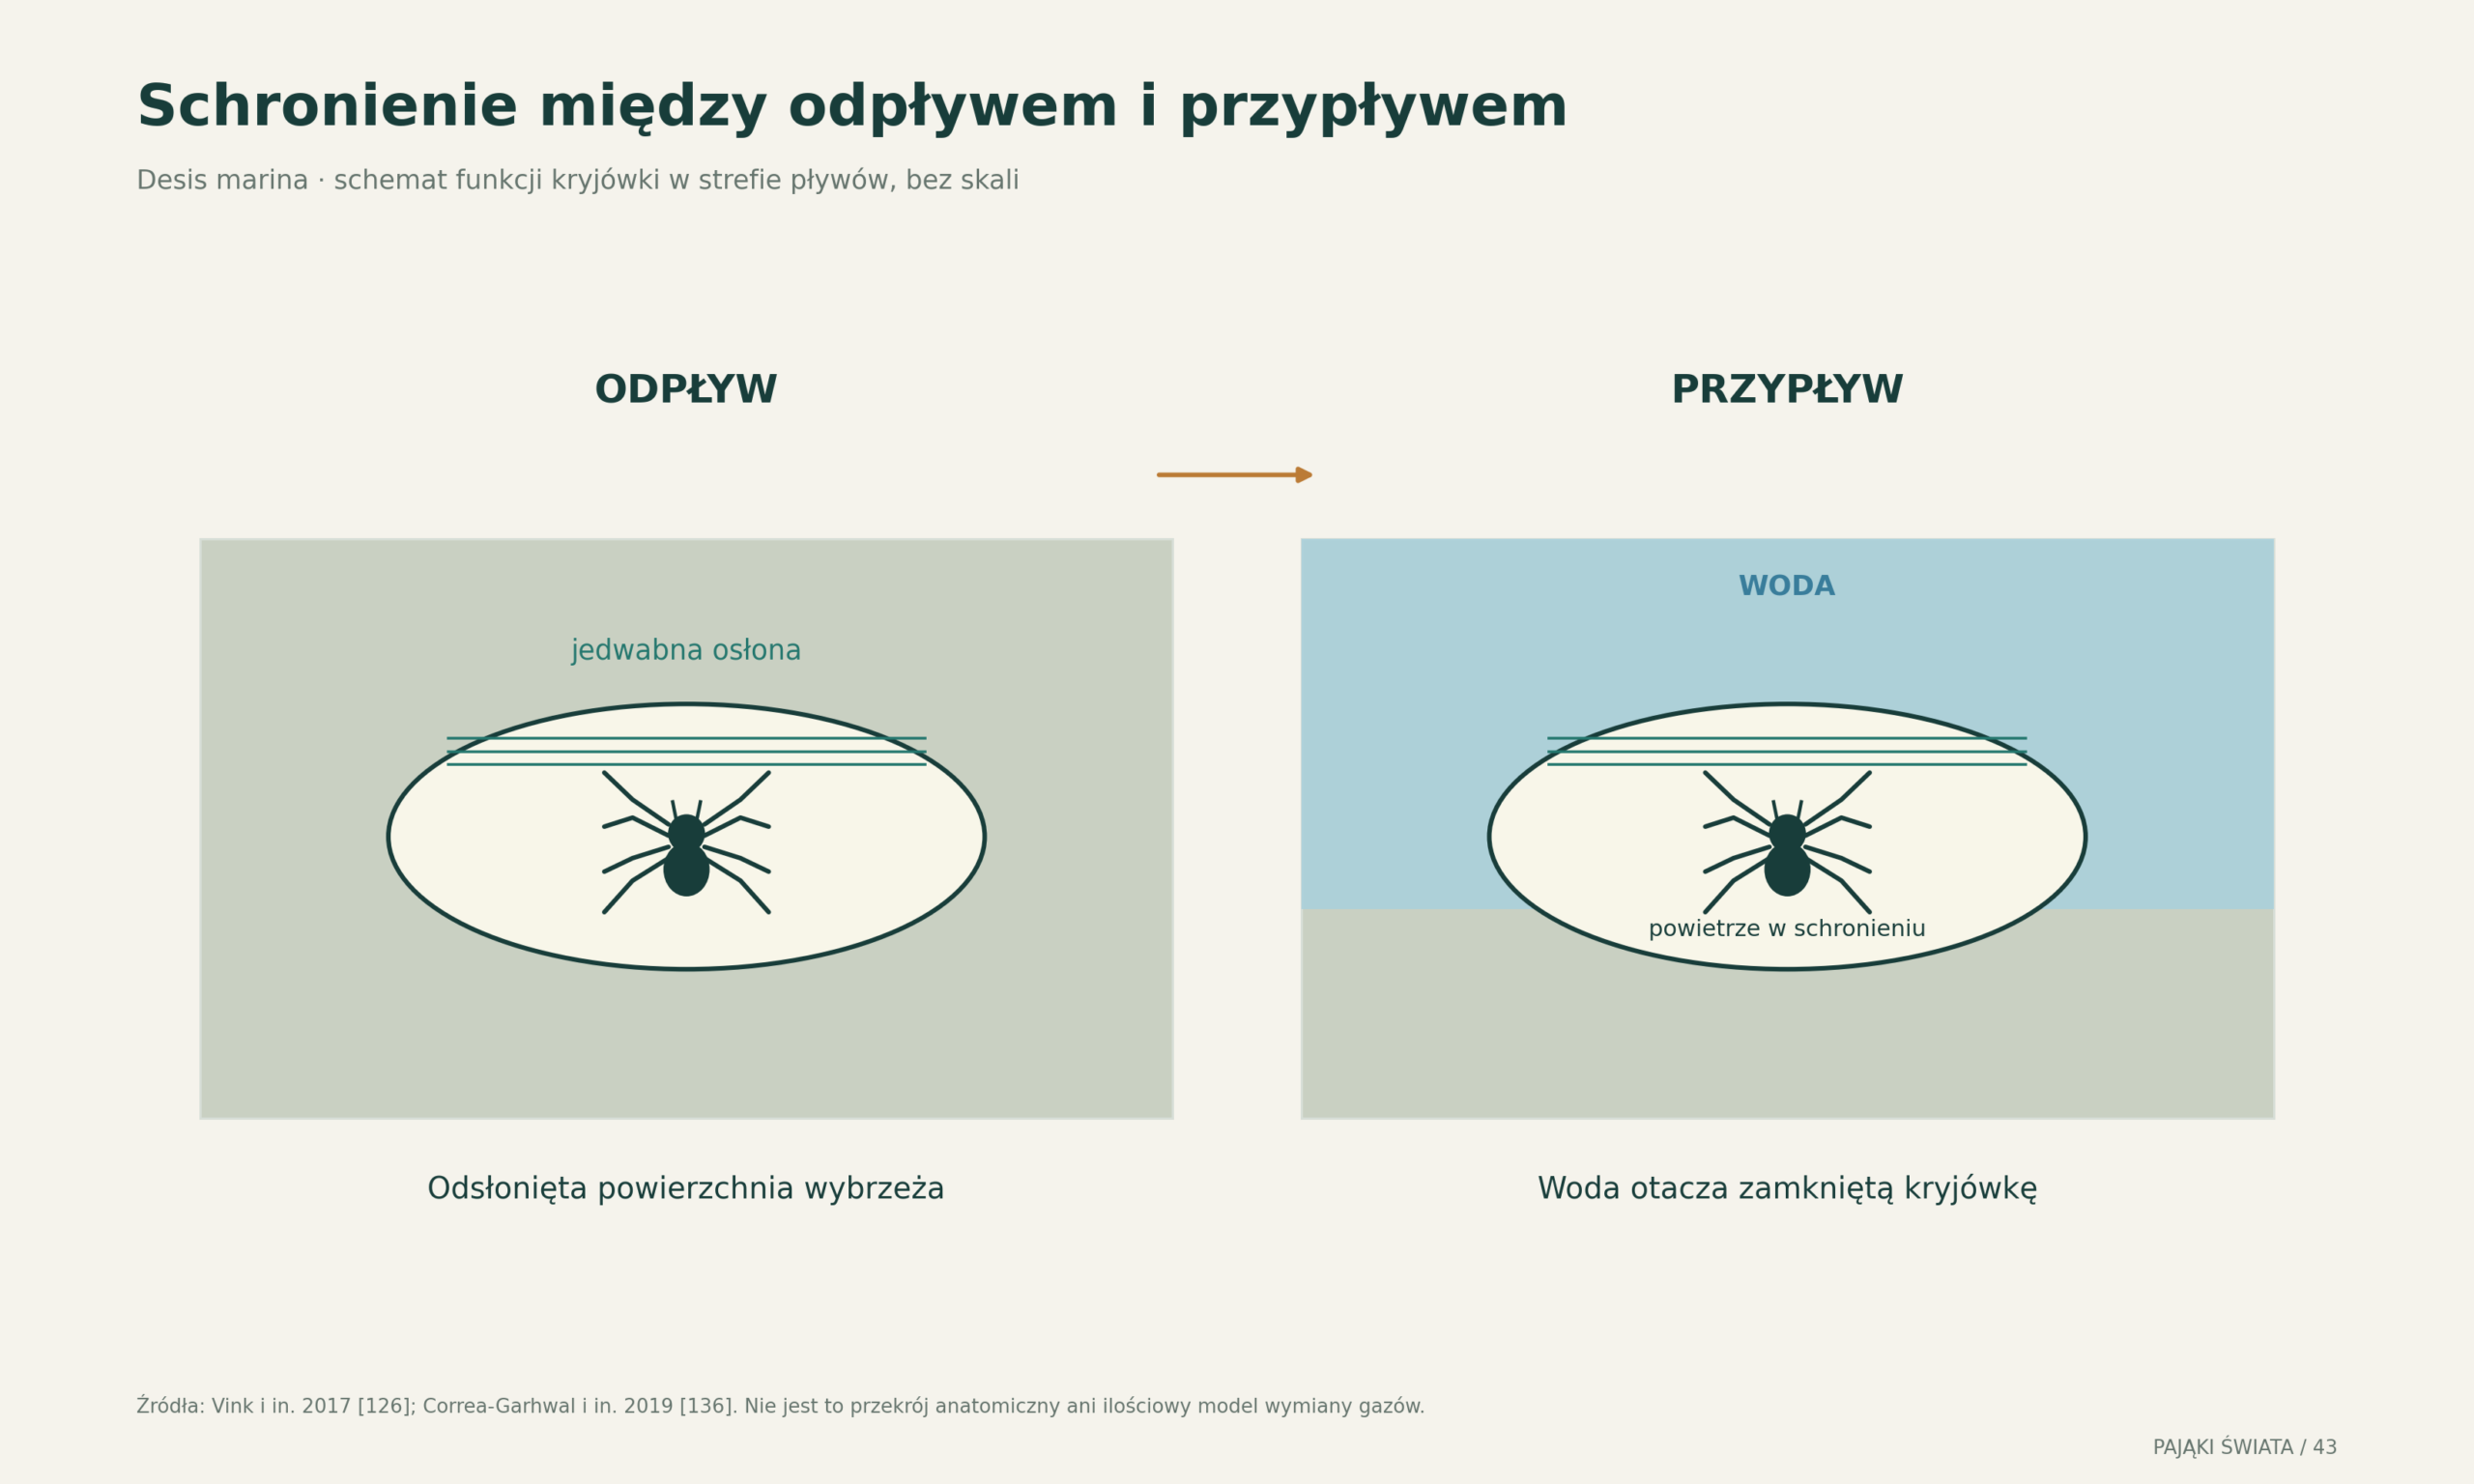
Liczby homologów genów nie należy utożsamiać z liczbą rodzajów gotowej nici. Przejście od sekwencji do materiału obejmuje ekspresję genów, skład białek, sposób przędzenia i warunki użycia. Podobnie obecność hydrofobowego motywu jest wskazówką mechanizmu, ale nie zastępuje pomiaru właściwości całej konstrukcji w środowisku.
Oba przykłady łączy pytanie o czas dostępny na żerowanie i rozród. Długość sezonu oraz rytm zalewania opisują warunki, których nie dałoby się odczytać z mapy samych temperatur średnich.
43 Społeczność od sieci łownej do genomu
Koordynacja bez centralnego dowodzenia
U społecznego Anelosimus eximius polowanie może obejmować wiele osobników przemieszczających się ku wspólnej zdobyczy. Chiara, Arrufat i Jeanson połączyli doświadczenia terenowe z modelem reguł zachowania. Naprzemienne fazy ruchu i zatrzymania zależały od relacji między drganiami wytwarzanymi przez zdobycz a sygnałami poruszających się współtowarzyszy. Synchronizacja ograniczała zakłócenia przy lokalizowaniu ofiary. [135]
Nie wymaga to założenia, że jeden pająk wydaje polecenia pozostałym. Zbiorowy wzorzec może powstawać z lokalnych decyzji osobników. Jest to jednak wyjaśnienie konkretnego zachowania, nie dowód na dowolnie szeroko rozumianą „inteligencję kolonii”. Model należy oceniać na podstawie tego, czy odtwarza mierzone reakcje i przewiduje ich zmianę po modyfikacji warunków.
Efektywna liczebność to nie liczba mieszkańców sieci
Badanie Ma i współautorów z 2025 roku powiązało ewolucję społeczności Stegodyphus ze spadkiem efektywnej liczebności populacji i skuteczności doboru oczyszczającego. Autorzy rozważali długookresowe konsekwencje kojarzenia krewniaczego i przewagi samic. Wyniki wspierają hipotezę ograniczonej trwałości takich linii, ale nie określają daty wymarcia współczesnego gatunku. [124]
Efektywna liczebność opisuje proces genetyczny. Dwie równie liczne grupy mogą różnić się liczbą rodziców pozostawiających potomstwo, a przez to tempem utraty zmienności. To przykład pojęciowy, bez przypisywania fikcyjnych wartości konkretnemu gatunkowi.
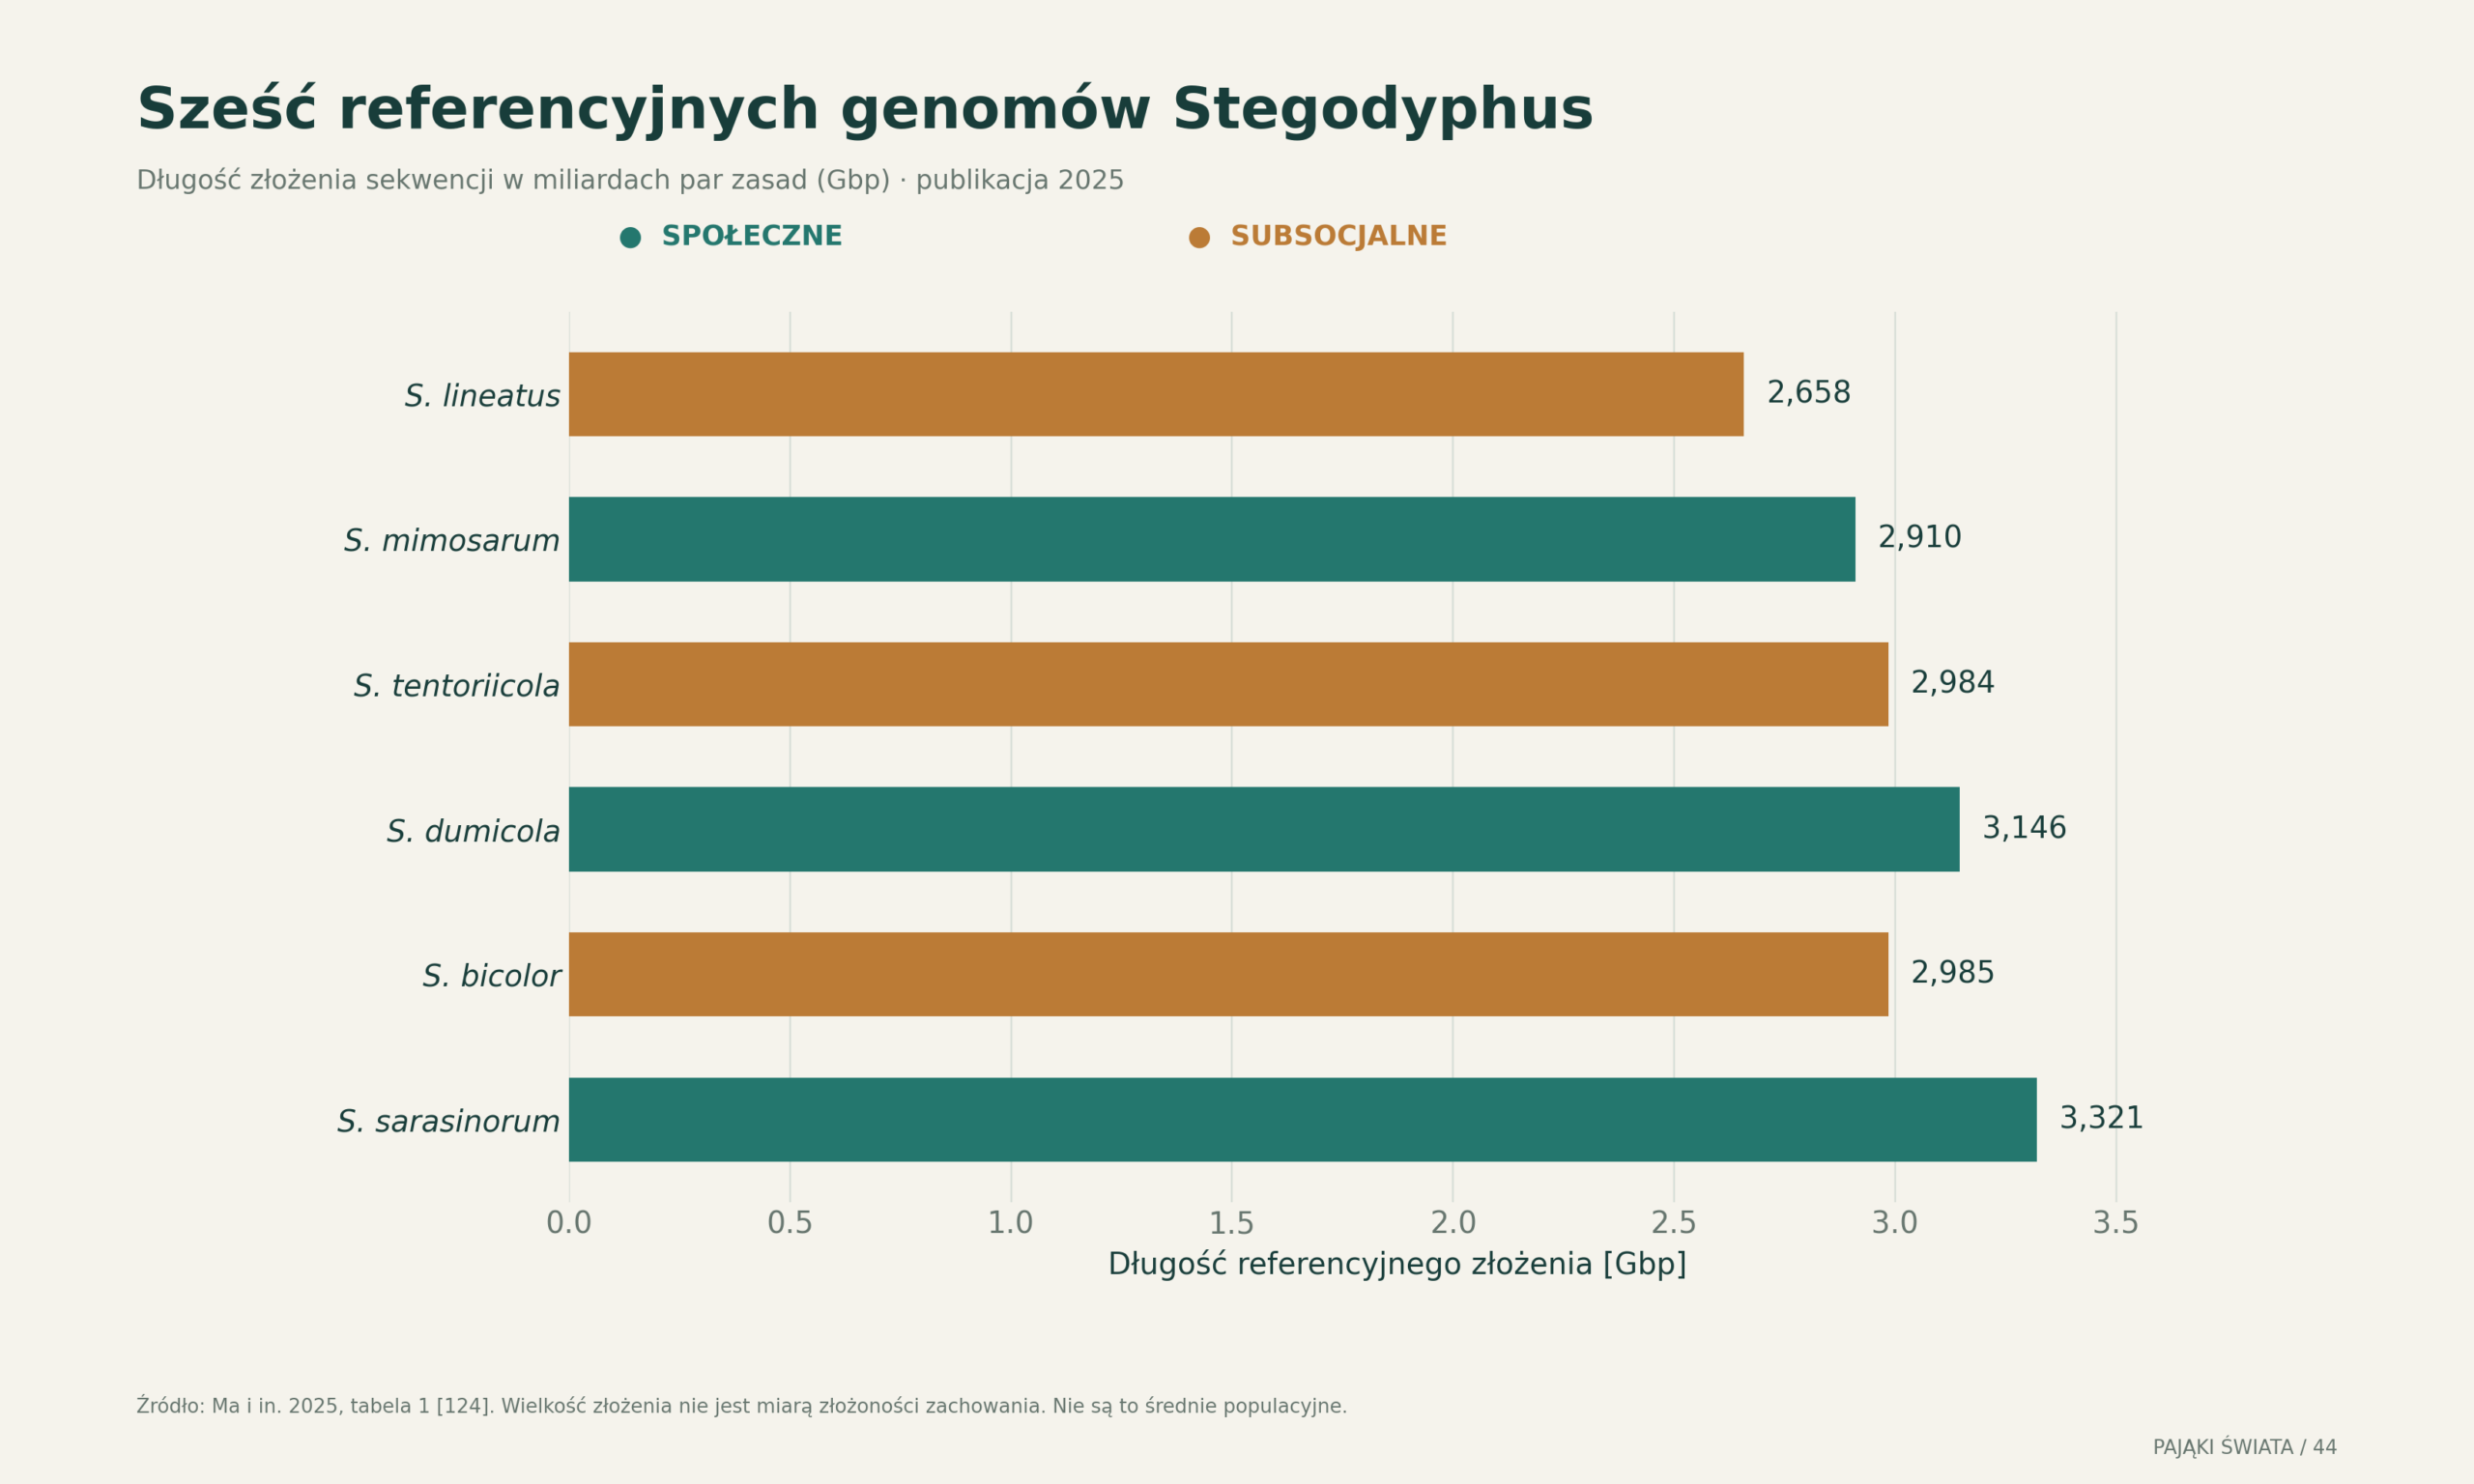
Wykres genomów wymaga innego rodzaju ostrożności. Dłuższe złożenie nie oznacza „bardziej rozwiniętego” zwierzęcia, większej inteligencji ani silniejszej społeczności. Znaczenie mają powtórzenia, kompletność rekonstrukcji oraz sposób obróbki danych. Umieszczone na rycinie wartości są długościami konkretnych opublikowanych złożeń referencyjnych, a nie średnimi z populacji.
Wspólny dach nie wystarcza do diagnozy społeczności
Kilka osobników w tej samej przestrzeni może oznaczać chwilowe skupienie, opiekę samicy nad młodymi, współdzielenie zasobu albo trwałą społeczność z kooperacją. W dokumentacji trzeba wskazać zachowanie, czas utrzymywania się grupy i relacje między jej członkami. Słowo „kolonia” użyte bez definicji może połączyć układy o bardzo odmiennej biologii.
Koordynacja polowania opisuje współpracę w danej chwili. Konsekwencje genetyczne dotyczą reprodukcji i dziedziczenia przez wiele pokoleń. Zrozumienie społeczności wymaga połączenia obu skal czasu.
44 Ochrona w liczbach: inwentarz, niepewność i handel
Republika Południowej Afryki: nowszy wykaz, jawna jednostka
Wykaz opublikowany w 2023 roku, obejmujący dane do końca grudnia 2022 roku, zestawia 2265 gatunków i podgatunków, 495 rodzajów oraz 71 rodzin. Autorzy podali 1325 taksonów endemicznych dla RPA. Wartość 58,5% opisuje zatem udział w konkretnym wykazie, a nie procent wszystkich pająków żyjących na terenie kraju. [129]
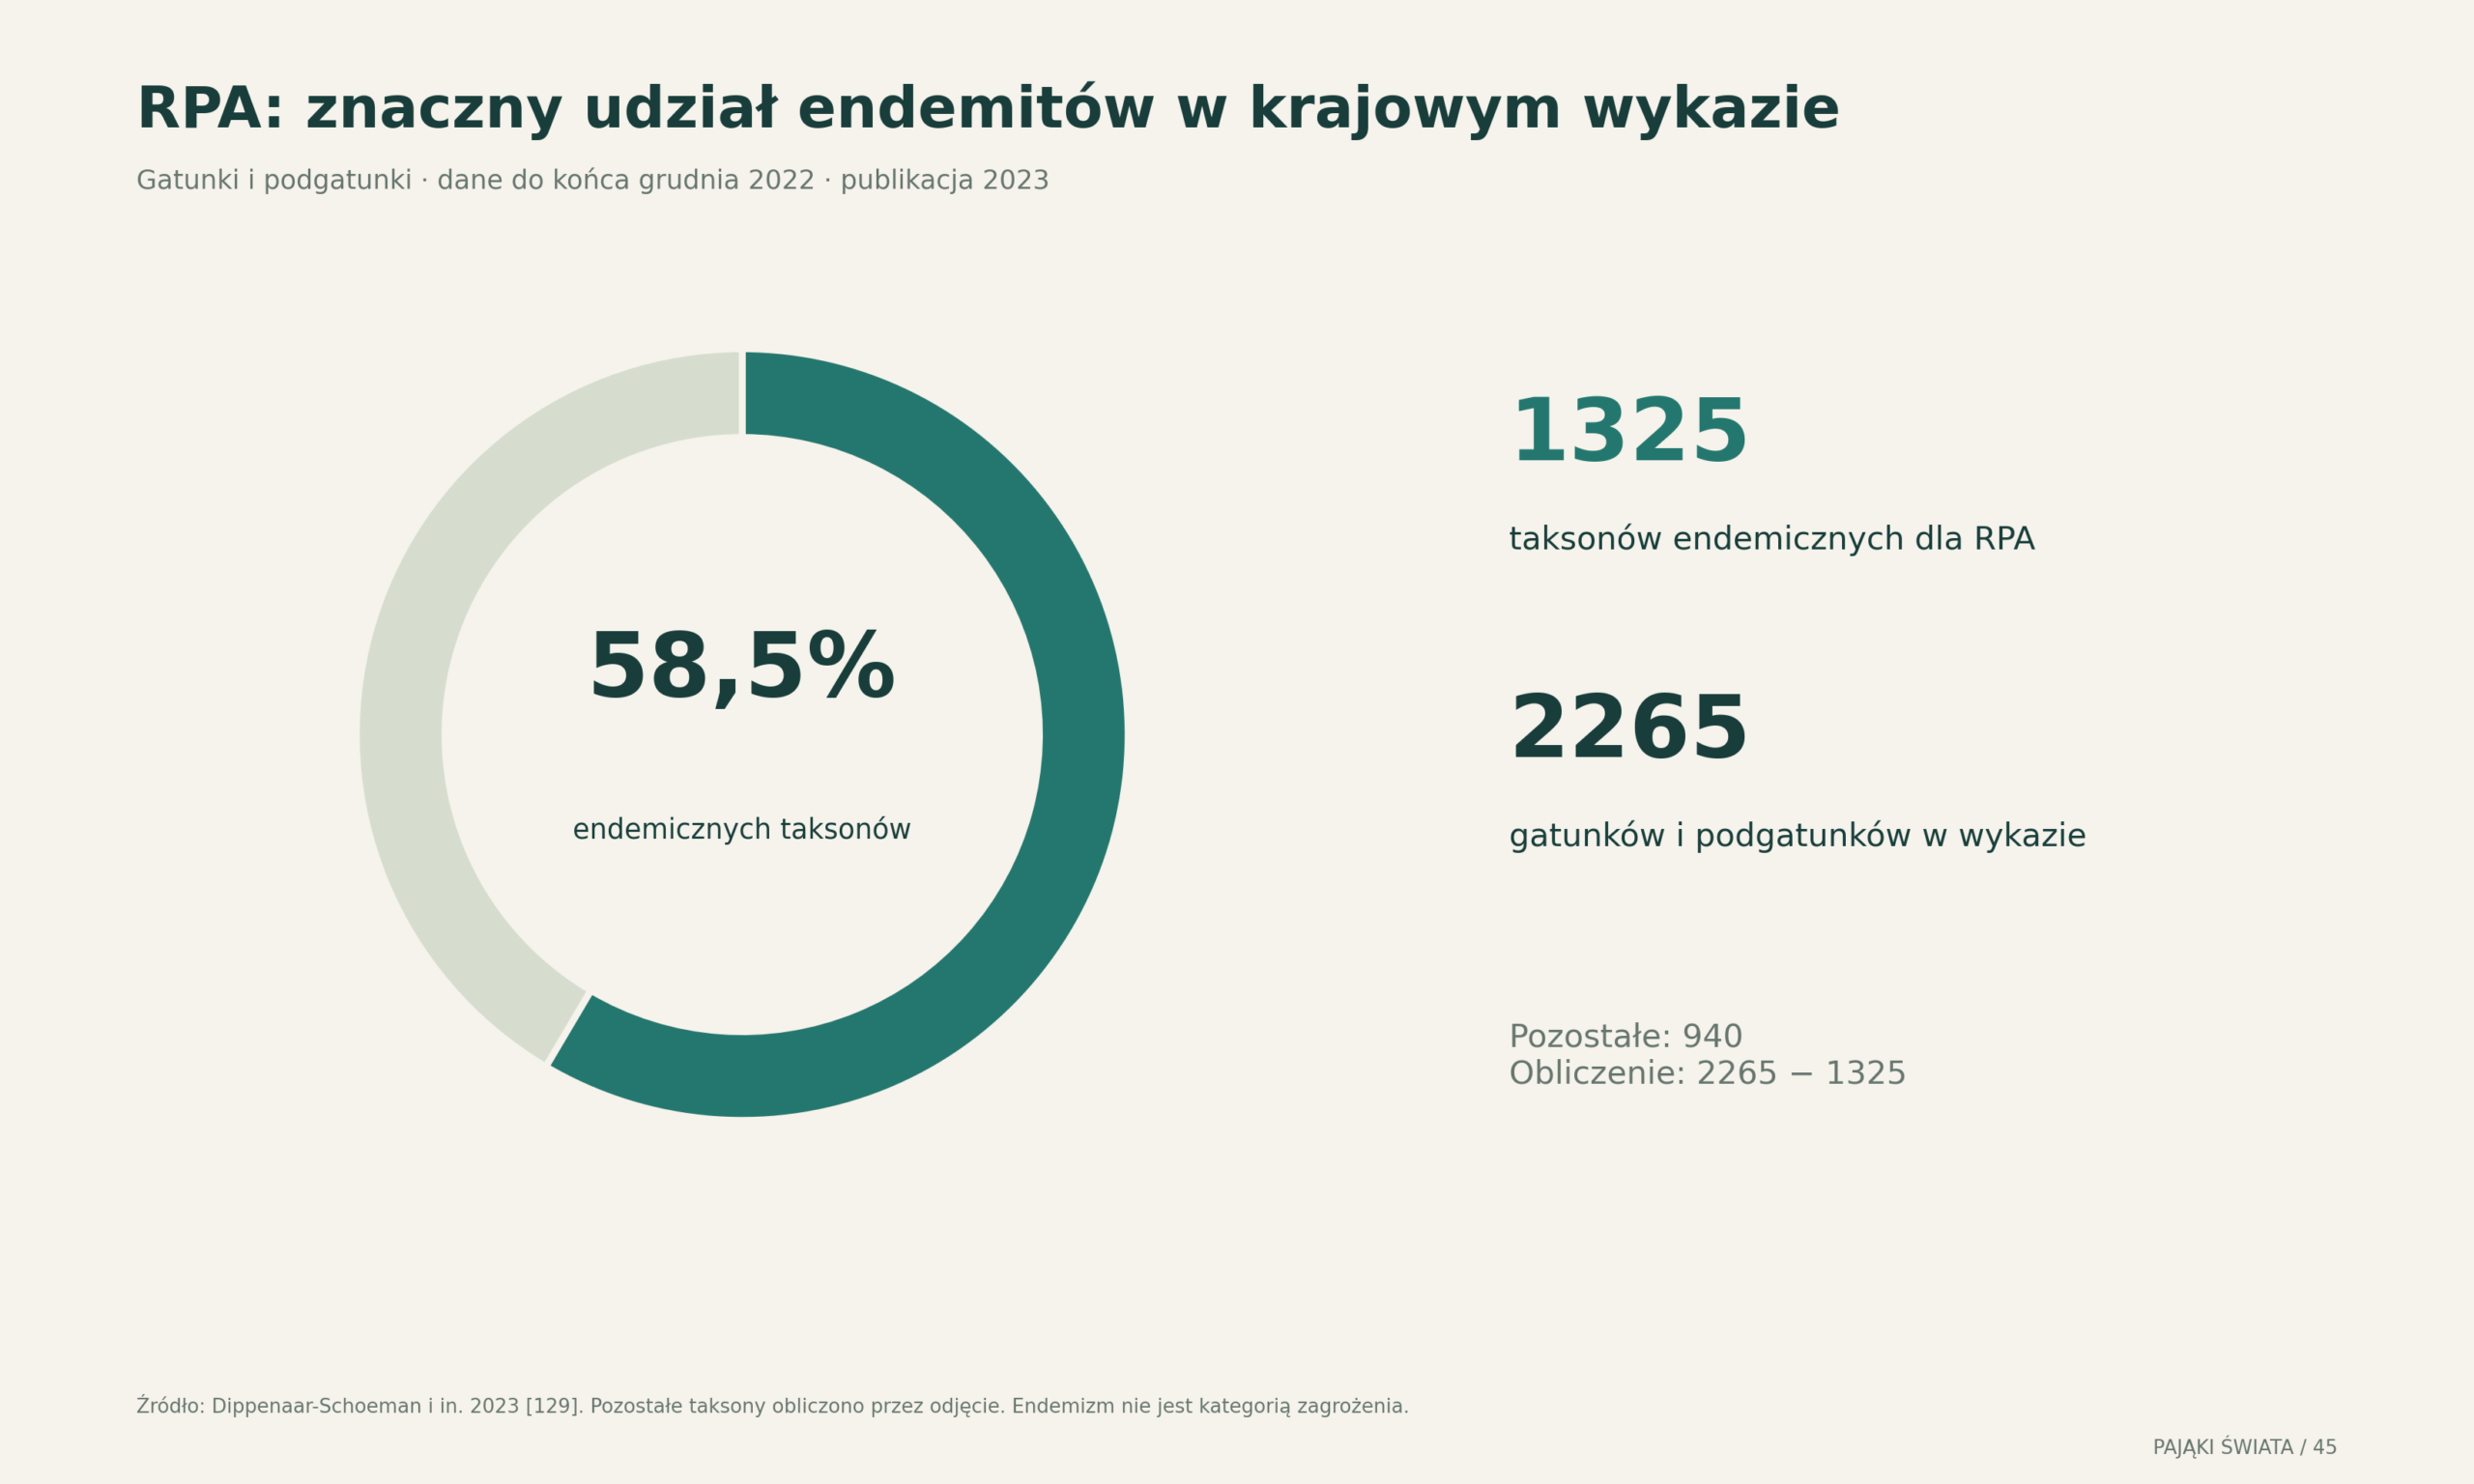
Ten wykaz należy odróżnić od starszych sum przywołanych w profilu kraju. Różnica między nimi może wynikać z nowych opisów, zmian systematyki, rozszerzenia dokumentacji i sposobu liczenia. Bez prześledzenia list nazw nie wolno interpretować samej różnicy sum jako przyrostu biologicznej różnorodności w ciągu kilku lat.
W publikacji wskazano również 693 taksony z niedostatkiem danych oraz 126 określonych jako wymagające szczególnej uwagi. Pierwsza liczba odpowiada po zaokrągleniu 30,6% wykazu. Drugi termin zachowano zgodnie ze źródłem; nie zastąpiono go automatycznie zbiorczą kategorią zagrożenia. [129] Endemizm i niedostatek danych to różne cechy, które mogą dotyczyć tych samych zwierząt.
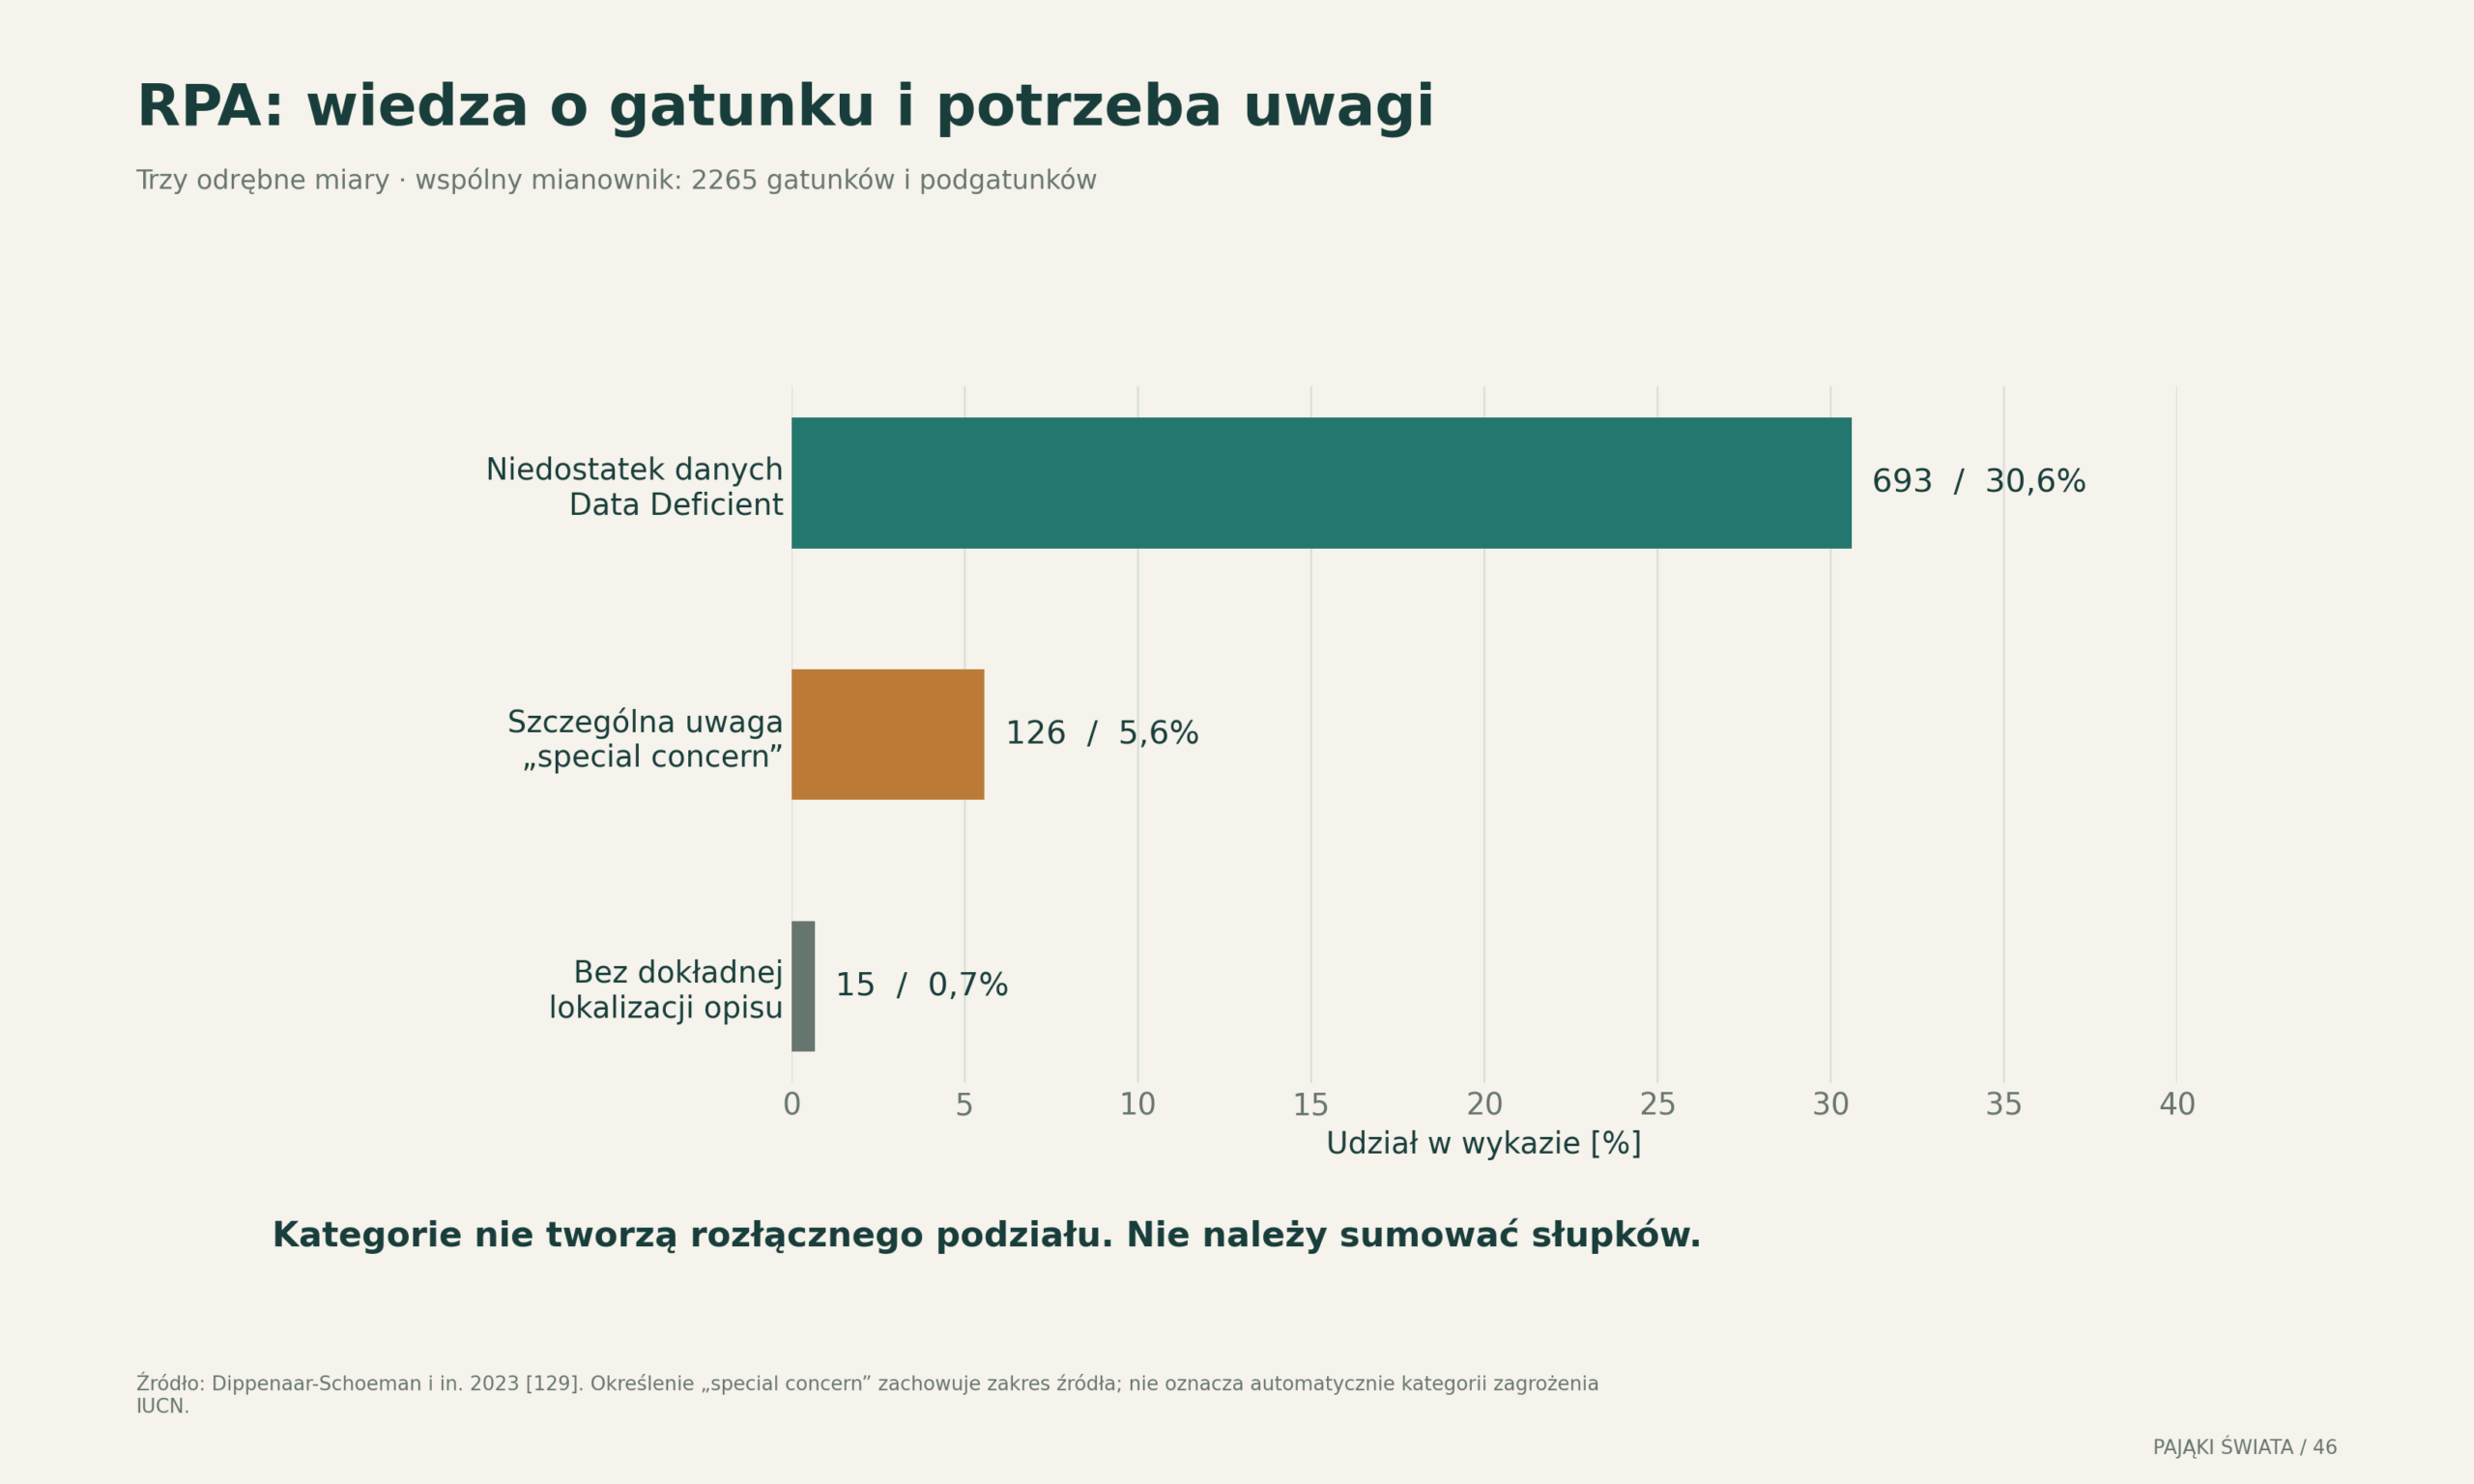
Dlaczego brak oceny nie jest dobrą wiadomością
Niepewność ma praktyczne znaczenie. Może oznaczać potrzebę odnalezienia historycznego stanowiska, sprawdzenia oznaczeń, zbadania sezonowości albo porównania zmian siedliska. Nie stanowi dowodu bezpieczeństwa, lecz nie jest też automatycznym dowodem zagrożenia. W projekcie ochronnym warto zapisywać, jaka dodatkowa informacja rzeczywiście zmieniłaby decyzję.
Dobry opis problemu jest bardziej konkretny niż „potrzeba więcej badań”. Może brzmieć: brakuje potwierdzenia po określonym roku, stanowisko ma zbyt małą dokładność geograficzną, oznaczenie oparto na osobniku młodocianym albo nie wiadomo, czy dwa doniesienia dotyczą tego samego taksonu. Każda z tych luk wymaga innej pracy. Samo pomnożenie liczby obserwacji nie musi jej zamknąć.
Handel: pająki są częścią szerszej grupy
Marshall i współautorzy w analizie z 2022 roku połączyli internetowe oferty z bazami LEMIS i CITES. Uzyskali 1264 gatunki pajęczaków: 903 pająki, 350 skorpionów i 11 przedstawicieli Uropygi. Wartości te opisują wykryty zakres taksonomiczny, a nie liczbę sprzedanych zwierząt. [130]
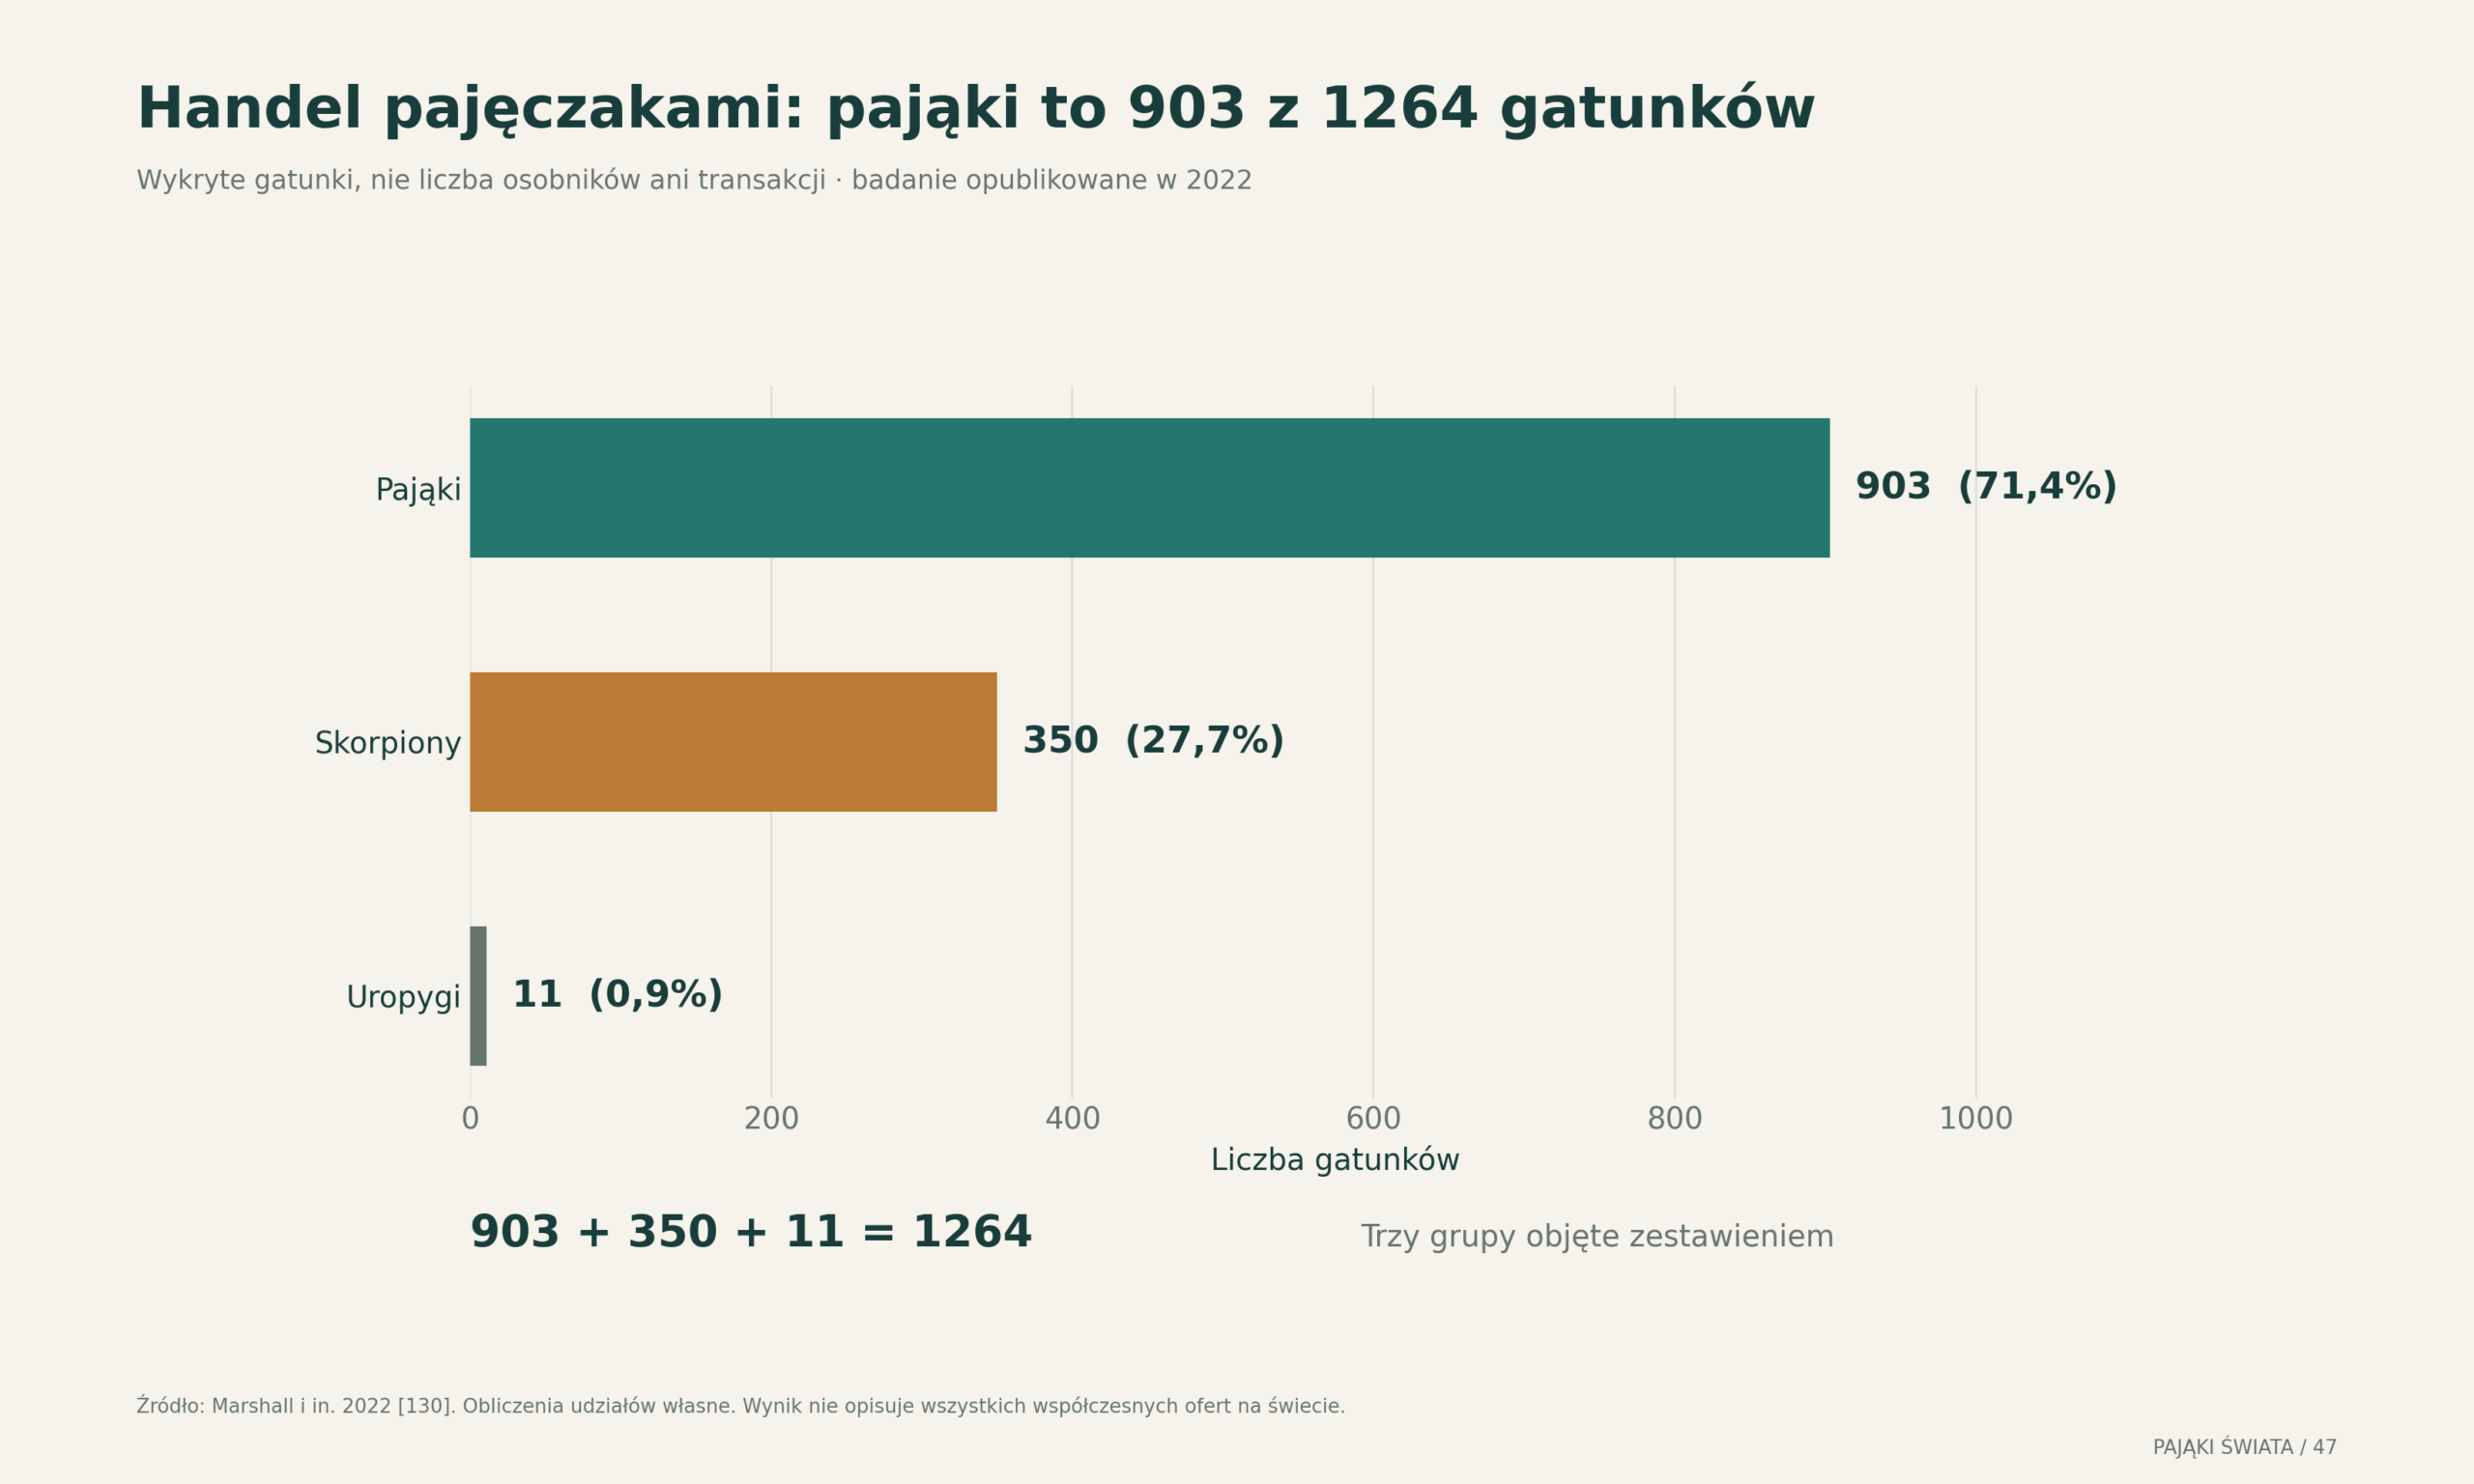
Źródła silnie różniły się pokryciem: internet ujawnił 1248 gatunków, LEMIS 267, a dane handlowe CITES 30. List nie wolno sumować, ponieważ się przecinają. Aż 993 gatunki odnotowano wyłącznie online, czyli 78,6% sumy po własnym zaokrągleniu do jednego miejsca. [130] Ta relacja pokazuje lukę między strumieniami informacji, nie odsetek nielegalnych transakcji.
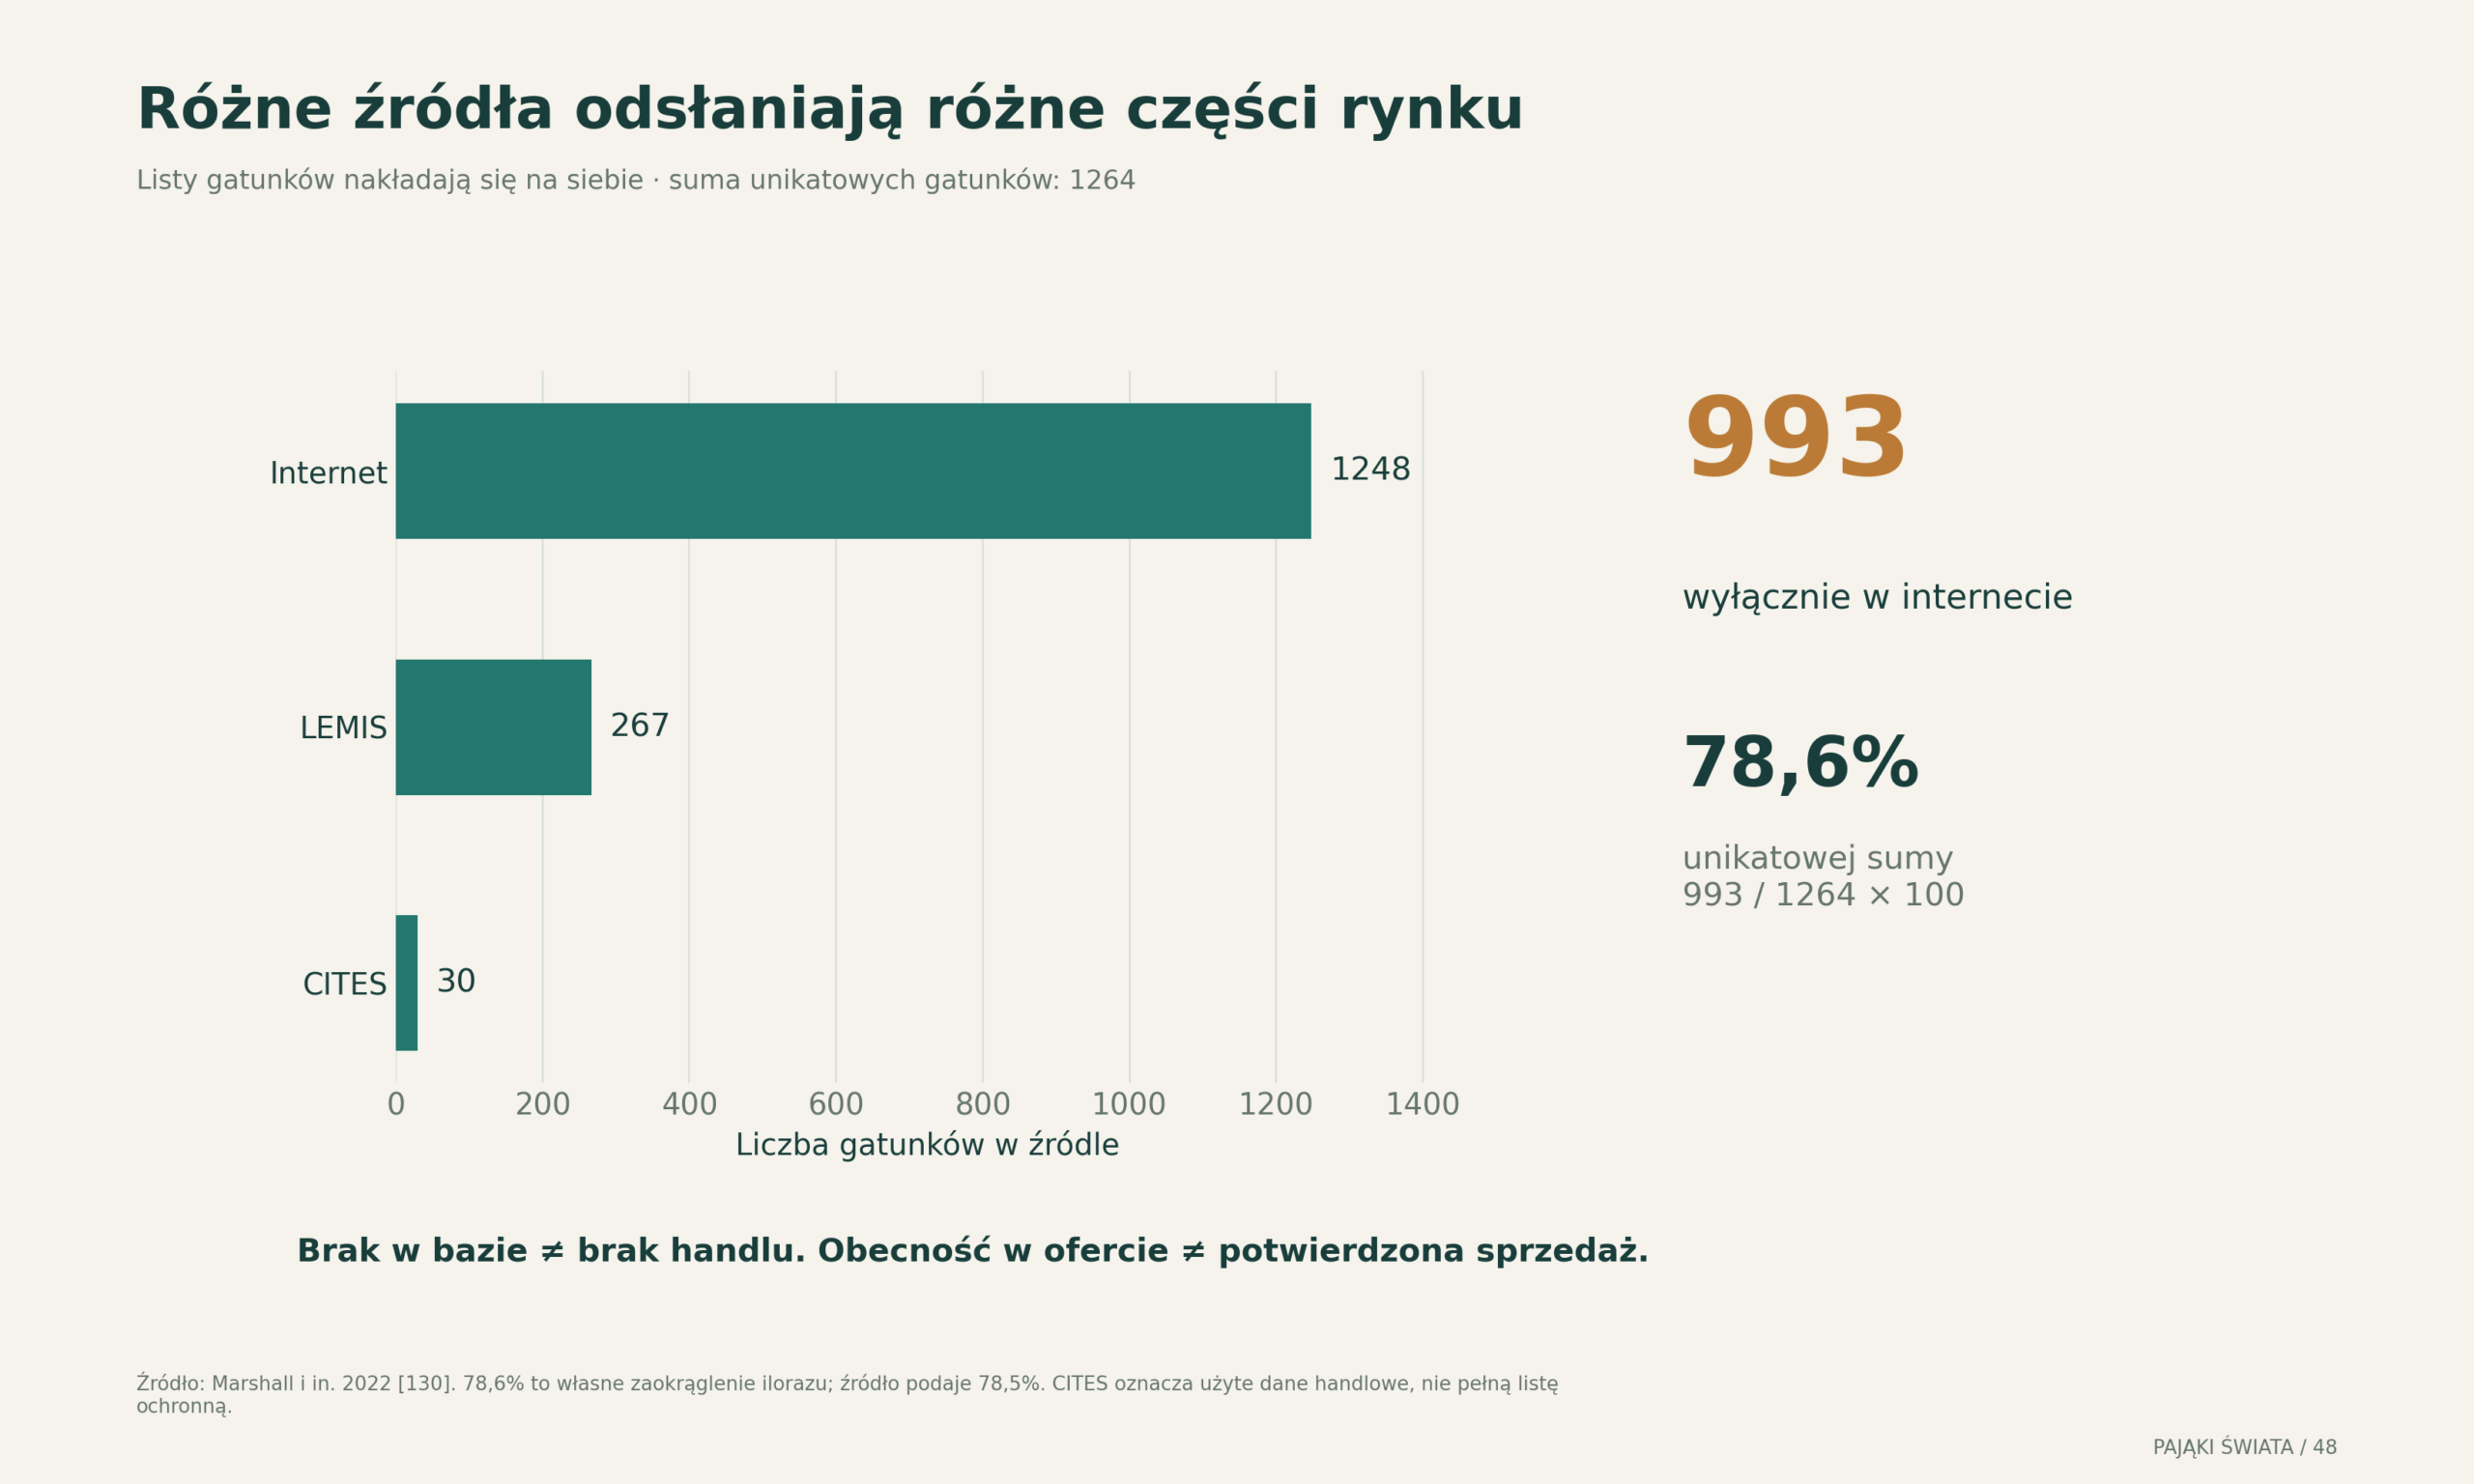
Obecność nazwy w ofercie nie gwarantuje poprawnego oznaczenia, dostępności żywego osobnika ani dokonania sprzedaży. Z kolei zapis transakcji nie określa samodzielnie wpływu odłowu na populację. Trzeba znać pochodzenie zwierząt, skalę pozyskania, biologię rozrodu i stan miejscowej populacji. Brak gatunku w danym zbiorze również nie dowodzi braku handlu: baza mogła go nie obejmować.
Jak połączyć monitoring rynku z ochroną siedlisk
Użyteczny system łączy poprawne nazwy, udokumentowane rozmieszczenie i historię zmian populacji. Jedna część odpowiada na pytanie, co występuje w ofertach; druga — co dzieje się w przyrodzie. Bez takiego rozdzielenia łatwo stworzyć ranking popularności, który wygląda jak ocena zagrożenia, chociaż opiera się na zupełnie innym zjawisku.
W praktyce trzeba też utrzymywać wersje danych. Zmiana nazwy może wyglądać jak pojawienie się nowego produktu, a połączenie synonimów może pozornie zmniejszyć różnorodność rynku. Rzetelne porównanie kolejnych lat wymaga przejrzystego słownika nazw i zapisanej daty odczytu. Analiza z 2022 roku pozostaje datowanym badaniem, a nie opisem aktualnego stanu prawnego w każdym kraju.
45 Jak obserwować i dokumentować pająki
Przewodnik: jak hodować pająki
Dobra obserwacja nie wymaga chwytania zwierzęcia. Warto zanotować datę, przybliżoną lokalizację, typ siedliska i zachowanie. Fotografia całości, ujęcie od przodu wykonane bez manipulowania oraz zdjęcie sieci mogą dostarczyć różnych informacji. Skala pomaga ocenić rozmiar, ale nie należy przykładać jej tak, by prowokować pająka.
Najbardziej użyteczna dokumentacja rozróżnia fakt od interpretacji. „Pająk siedział pod korą” jest obserwacją. „Gatunek obowiązkowo żyje pod korą” to szersza hipoteza, której pojedyncze zdjęcie nie potwierdza. Podobnie „nie znaleziono pająków przez dziesięć minut” nie jest dowodem ich nieobecności.
W przypadku trudnego oznaczenia uczciwe pozostawienie nazwy rodziny lub rodzaju jest lepsze od nadmiernej pewności. Oznaczenie do gatunku powinno wynikać z widocznych cech i opinii kompetentnego obserwatora, nie tylko z automatycznej sugestii aplikacji. Zdjęcie może być wartościowym rekordem nawet wtedy, gdy nie da się oznaczyć gatunku.
Przy publikowaniu stanowisk rzadkich gatunków warto rozważyć wrażliwość miejsca. Dokładna lokalizacja może pomagać badaczom, lecz publiczne rozpowszechnienie współrzędnych niewielkiego stanowiska może zwiększać presję odwiedzających. Dane należy przekazywać odpowiedniej instytucji w formie zgodnej z jej zasadami.
W domu rozpoznanego, zwykłego pająka można pozostawić w spokojnym miejscu lub bez bezpośredniego kontaktu przenieść pojemnikiem i kartką do odpowiedniej kryjówki. W regionie występowania gatunków istotnych medycznie, przy niepewnej identyfikacji, lepiej zachować odległość i skorzystać z lokalnej pomocy. Samo zabijanie kolejnych osobników nie rozwiązuje długofalowo przyczyn ich obecności. [53]
46 Najczęstsze nieporozumienia
| Stwierdzenie | Co należy powiedzieć precyzyjniej |
|---|---|
| Każdy pająk buduje pajęczynę łowną | Wszystkie pająki mają zdolność produkowania jedwabiu, ale wiele poluje bez sieci łownej |
| Pająk jest owadem | Pająki należą do pajęczaków, a nie do owadów |
| Każdy pająk ma osiem oczu | Osiem to częsty układ; istnieją gatunki z mniejszą liczbą oczu i formy bezoczne |
| Długie nogi oznaczają ptasznika | Ptasznikowate to określona rodzina; spachacze, kątniaki i nasoszniki należą do innych rodzin |
| Wszystkie pająki są groźne dla ludzi | Znaczenie medyczne jest silnie zróżnicowane i dotyczy ograniczonej części grupy |
| Samica zawsze zjada samca | Kanibalizm seksualny występuje u części gatunków i zależy od okoliczności |
| Kraj z większą liczbą gatunków jest bardziej niebezpieczny | Bogactwo gatunkowe nie jest miarą prawdopodobieństwa ciężkiego ukąszenia |
| Brak rekordu oznacza brak gatunku | Obszar lub mikrosiedlisko mogą być niedostatecznie zbadane |
| Nowy gatunek powstał w roku jego opisu | Rok opisu to data formalnego rozpoznania naukowego |
| Każda martwica skóry jest po pająku | Podobne zmiany mają liczne inne przyczyny i wymagają diagnostyki |
| Pająki nie żyją w Arktyce | Pająki występują w regionach arktycznych; Antarktyda to odrębny przypadek |
| Jedwab jest zawsze mocniejszy od stali | Porównanie wymaga konkretnego parametru i warunków badania |
Tabela podsumowuje rozróżnienia omówione w tekście, zwłaszcza w źródłach [9–16, 34, 35, 38].
47 Słownik najważniejszych pojęć
Araneologia to dział zoologii zajmujący się pająkami. Arachnologia obejmuje szerzej pajęczaki, w tym również inne grupy, takie jak skorpiony i kosarze.
Takson to jednostka klasyfikacji organizmów, na przykład gatunek, rodzaj lub rodzina. Synonim taksonomiczny oznacza inną nazwę odnoszoną do tego samego taksonu. Rewizja jest ponownym opracowaniem grupy i granic jej taksonów.
Endemit występuje naturalnie tylko na określonym obszarze. Gatunek rodzimy należy do naturalnej fauny regionu. Gatunek zawleczony dotarł w wyniku działalności człowieka. Zawleczenie nie jest automatycznie równoznaczne z zadomowieniem lub inwazyjnością.
Mikrosiedlisko to lokalny fragment środowiska o określonych warunkach, na przykład wilgotna szczelina pod kamieniem. Fenologia opisuje sezonowy rytm zjawisk życiowych. Dyspersja oznacza przemieszczanie prowadzące do rozproszenia organizmów.
Dymorfizm płciowy to różnice między samicami i samcami. Nogogłaszczki są parą przydatków przy aparacie gębowym; u dorosłych samców ich końcowe części przekazują nasienie. Kądziołki przędne to struktury, przez które wyprowadzany jest jedwab.
Biomasa to masa organizmów w określonym zbiorze. Standaryzowana wielkość efektu pozwala porównywać wyniki różnych badań; nie musi oznaczać procentowej zmiany. Przedział ufności opisuje niepewność oszacowania zgodnie z przyjętą metodą statystyczną, a nie zakres wszystkich możliwych lokalnych wyników.
Pojęcia uzupełniające
| Termin | Znaczenie w tej publikacji |
|---|---|
| Radiacja adaptacyjna | Różnicowanie linii na gatunki związane z odmiennymi rolami ekologicznymi |
| Konwergencja | Niezależne powstawanie podobnych cech w różnych liniach |
| Ekomorf | Forma odróżniana przez związek budowy lub zachowania z rolą ekologiczną |
| Filogenomika | Badanie pokrewieństwa przy użyciu wielu regionów genomu |
| Grupa siostrzana | Najbliższa grupa porównywana w danym drzewie pokrewieństwa |
| Troglobiont | Organizm obligatoryjnie związany ze środowiskiem podziemnym |
| Parazytoid | Organizm, którego rozwój na gospodarzu lub w nim prowadzi ostatecznie do śmierci gospodarza |
| Barwa strukturalna | Barwa wynikająca z oddziaływania światła z mikro- lub nanostrukturą |
| Wykrywalność | Prawdopodobieństwo odnotowania obecnego organizmu przy określonej procedurze |
| Rarefakcja | Standaryzowane porównanie przez matematyczne zmniejszenie liczebności próby |
| Liczby Hilla | Miary różnorodności wyrażone jako efektywna liczba gatunków |
| Niepewność współrzędnych | Zakres możliwego położenia obserwacji wokół zapisanej lokalizacji |
48 Nota metodyczna i odpowiedzialne wykorzystanie danych
Zakres i daty
Kwerendę zamknięto 24 października 2026 roku. WSC wykorzystano w wersji 27, a araneae w wersji 10.2026. Bazy są aktualizowane na bieżąco. Statystyki europejskie przeniesiono z bezpośredniego odczytu strony, zamiast mieszać wartości z wcześniejszych kopii indeksowanych przez wyszukiwarki. Przy danych historycznych zachowano daty źródeł.
Dobór krajów i mapy
Mapa europejska obejmuje 36 wybranych pozycji krajowych. Pominięto Rosję w kolorowaniu ze względu na regionalny zakres bazy. Dla krajów z kilkoma regionami wykorzystano agregaty źródła: samodzielne dodawanie list powielałoby gatunki. Bogactwo gatunków nie rośnie liniowo z powierzchnią, więc prosty iloraz tych wartości także nie tworzyłby neutralnego rankingu.
Podkład Natural Earth w skali 1:110 mln uogólnia granice i małe wyspy. Odwzorowanie świata to Equal Earth, a Europy azymutalne równopowierzchniowe z centrum około 15°E i 52°N. Mapa świata wskazuje kraje opisane w artykule; nie przedstawia liczebności pająków ani zasięgów gatunków. [54]
Obliczenia i ilustracje
Wykres rodzin obejmuje 12 największych rodzin w jednym odczycie WSC. Historia opisów korzysta z pracy z datą graniczną 2024. Liczbę 33 458 otrzymano przez odjęcie 19 159 od 52 617; procenty zaokrąglono do jednego miejsca. Wykres ekologiczny rozdziela biomasę od rocznego przepływu pokarmu, a wykres metaanalizy zachowuje efekty standaryzowane i przedziały ufności.
Nowe wykresy ilościowe obejmują wszystkie 139 rodzin, porównanie rodzajów i gatunków w Europie, zakresy długości ciała ośmiu gatunków, mediany i minima–maksima właściwości jedwabiu oraz średnie wieku dojrzałości z eksperymentu ze światłem. Zakres katalogowy, zakres minimum–maksimum i przedział ufności mają różne znaczenia i są każdorazowo podpisane. W danych o jedwabiu wykorzystano równoważność 1 MPa = 1 MJ/m³ przy wyrażaniu energii na jednostkę objętości. Nie odtwarzano nieudostępnionych pomiarów indywidualnych ani nie dodawano wymyślonych punktów.
Trzecia mapa przedstawia orientacyjne położenia wybranych obszarów badawczych lub pochodzenia materiału, a nie zasięgi gatunków. Rycina nie służy analizie odległości ani wnioskowaniu o intensywności badań na kontynentach.
Schematy budowy, klasyfikacji, sieci, cyklu życia, mechanizmów sensorycznych i jedwabiu są oryginalnymi uproszczeniami edukacyjnymi. Nie służą oznaczaniu okazów. WebP przygotowano do publikacji cyfrowej, a SVG do skalowania i edycji. Nie wykorzystano syntetycznych fotografii jako dokumentacji gatunków.
Zakres atlasu rozszerzonego
Niniejsze wydanie zawiera 48 numerowanych rozdziałów, 137 źródeł oraz 48 map, wykresów i schematów. W stosunku do wydania pogłębionego dodano 16 portretów gatunków, sześć rozdziałów i dwanaście rycin. Osobny indeks łączy wszystkie 32 szczegółowe portrety z odpowiednimi miejscami w artykule.
Wykresy wymiarów przedstawiają katalogowe przedziały, nie pomiary własne. Wartości prędkości i czasu są średnimi z odchyleniami standardowymi. Długości złożeń genomowych odnoszą się do sześciu referencji, a nie średnich populacji. Schematy sygnałów, pływów i fenologii nie zawierają fikcyjnych serii pomiarowych. Zestawienie handlu zachowuje rozróżnienie pająków i pozostałych pajęczaków oraz nakładanie się źródeł. Własne zaokrąglenie 993/1264 daje 78,6%; tekst publikacji źródłowej podaje 78,5%.
Źródła i dalsze wykorzystanie
Paczka nie zawiera pełnych kopii cudzych artykułów ani atlasów. Bibliografia prowadzi do publikacji i instytucji źródłowych. Dane katalogowe przedstawiono w ograniczonych zestawieniach z atrybucją. Dalsze wykorzystanie źródeł wymaga uwzględnienia ich warunków, w tym zasad WSC. [1]
Artykuł jest syntezą edukacyjną. Jego liczby opisują określone katalogi, obszary i badania. Zachowanie tych definicji przy dalszym cytowaniu jest warunkiem rzetelnego wykorzystania całego opracowania.
Indeks gatunków
Alfabetyczny indeks 32 portretów gatunków z rozdziałów 22 i 39. Odnośnik prowadzi do portretu w tym kompendium, a jeśli gatunek ma kartę w atlasie serwisu, także do niej.
- Aotearoa magnarozdział 39
- Araneus diadematusrozdział 22karta w atlasie
- Argiope bruennichirozdział 22karta w atlasie
- Argyroneta aquaticarozdział 22karta w atlasie
- Caerostris darwinirozdział 22
- Desis marinarozdział 39
- Dolomedes plantariusrozdział 22karta w atlasie
- Dysdera crocatarozdział 22karta w atlasie
- Eresus kollarirozdział 39
- Evarcha culicivorarozdział 22
- Gaius villosusrozdział 22
- Heteropoda maximarozdział 22
- Hortophora biapicatarozdział 22
- Latrodectus katiporozdział 22
- Liphistius desultorrozdział 39
- Maratus volansrozdział 22karta w atlasie
- Menemerus semilimbatusrozdział 39
- Misumena vatiarozdział 22karta w atlasie
- Myrmarachne formicariarozdział 39
- Pardosa glacialisrozdział 39
- Phidippus audaxrozdział 39karta w atlasie
- Pholcus phalangioidesrozdział 22karta w atlasie
- Pisaura mirabilisrozdział 39
- Portia africanarozdział 22
- Salticus scenicusrozdział 22karta w atlasie
- Scytodes thoracicarozdział 39karta w atlasie
- Segestria florentinarozdział 39
- Stegodyphus dumicolarozdział 39
- Tetragnatha extensarozdział 39
- Thomisus spectabilisrozdział 39karta w atlasie
- Uloborus plumipesrozdział 39
- Zoropsis spinimanarozdział 39karta w atlasie
Bibliografia
137 źródeł w kolejności numerów użytych w tekście. Linki do źródeł zewnętrznych otwierają się w nowej karcie.
- 1World Spider Catalog (2026). World Spider Catalog, wersja 27. Natural History Museum Bern. DOI 10.24436/2. Dostęp: 2026-10-24.źródło DOI↩
- 2World Spider Catalog (2026). Families, wersja 27. Dostęp: 2026-10-24.źródło↩
- 3Nentwig W., Blick T., Bosmans R., Kropf C., Stäubli A. (2026). Spiders of Europe, wersja 10.2026. Europe Species numbers. DOI 10.24436/1. Dostęp: 2026-10-24.źródło DOI↩
- 4Nentwig W. i in. (2026). Spiders of Europe. Europe Country lists. Dostęp: 2026-10-24.źródło↩
- 5Zhang X.-Q. i in. (2025). Spider taxonomy A historical and global perspective. Zoological Research 46(6), 1387–1395. Dostęp: 2026-10-24.źródło↩
- 6Nyffeler M., Birkhofer K. (2017). An estimated 400–800 million tons of prey are annually killed by the global spider community. The Science of Nature 104, 30. Dostęp: 2026-10-24.źródło↩
- 7Michalko R., Pekár S., Dul’a M., Entling M.H. (2019). Global patterns in the biocontrol efficacy of spiders A meta-analysis. Global Ecology and Biogeography 28, 1366–1378. Dostęp: 2026-10-24.źródło↩
- 8Michalko R., Pekár S., Entling M.H. (2019). An updated perspective on spiders as generalist predators in biological control. Oecologia 189, 21–36. Dostęp: 2026-10-24.źródło↩
- 9Australian Museum. Spider structure. Dostęp: 2026-10-24.źródło↩
- 10Australian Museum. Classifying spiders. Dostęp: 2026-10-24.źródło↩
- 11Australian Museum. Egg sacs spiderlings and dispersal. Dostęp: 2026-10-24.źródło↩
- 12Hendry L., Natural History Museum. What are spider webs made of And how do they spin them. Dostęp: 2026-10-24.źródło↩
- 13Hendry L., Natural History Museum. Spider webs not just for Halloween. Dostęp: 2026-10-24.źródło↩
- 14Morley E.L., Robert D. (2018). Electric Fields Elicit Ballooning in Spiders. Current Biology 28, 2324–2330.e2. Dostęp: 2026-10-24.źródło↩
- 15Agnarsson I., Kuntner M., Blackledge T.A. (2010). Bioprospecting Finds the Toughest Biological Material Extraordinary Silk from a Giant Riverine Orb Spider. PLOS ONE 5, e11234. Dostęp: 2026-10-24.źródło↩
- 16Seymour R.S., Hetz S.K. (2011). The diving bell and the spider the physical gill of Argyroneta aquatica. Journal of Experimental Biology 214, 2175–2181. Dostęp: 2026-10-24.źródło↩
- 17Meehan C.J., Olson E.J., Reudink M.W., Kyser T.K., Curry R.L. (2009). Herbivory in a spider through exploitation of an ant–plant mutualism. Current Biology 19, R892–R893. Dostęp: 2026-10-24.źródło↩
- 18Australian Museum. Wolf Spiders. Dostęp: 2026-10-24.źródło↩
- 19Australian Museum. Huntsman Spiders. Dostęp: 2026-10-24.źródło↩
- 20Australian Museum. Australian tarantulas. Dostęp: 2026-10-24.źródło↩
- 21Love M., Australian Museum (2017). Spiders Myth or Fact. Dostęp: 2026-10-24.źródło↩
- 22Branco V.V., Cardoso P. (2020). An expert-based assessment of global threats and conservation measures for spiders. Global Ecology and Conservation 24, e01290. Dostęp: 2026-10-24.źródło↩
- 23British Arachnological Society. Conservation. Dostęp: 2026-10-24.źródło↩
- 24Smithsonian Institution (2018). Newly Discovered Pelican Spiders of Madagascar. Dostęp: 2026-10-24.źródło↩
- 25Museum of New Zealand Te Papa Tongarewa. Katipō spider. Dostęp: 2026-10-24.źródło↩
- 26Araneae of Canada (2019). ZooKeys 819, 41–56. Dostęp: 2026-10-24.źródło↩
- 27Zoological Survey of India (2024). Fauna of India Checklist Arthropoda Arachnida Araneae. Dostęp: 2026-10-24.źródło↩
- 28Dippenaar-Schoeman A. i in. (2013). The diversity of South African spiders. Dostęp: 2026-10-24.źródło↩
- 29Japan Spider Catalog (2026). Japanese Spider Distribution Database. Dostęp: 2026-10-24.źródło↩
- 30Schwendinger P.J. A revision of the trapdoor spider genus Liphistius. Revue suisse de Zoologie 126(2). Dostęp: 2026-10-24.źródło↩
- 31World Spider Catalog (2026). Sparassidae, wpis Heteropoda maxima. Dostęp: 2026-10-24.źródło↩
- 32World Spider Catalog (2026). Maratus volans. Dostęp: 2026-10-24.źródło↩
- 33Moeller W., Galleti-Lima A., Guadanucci J.P.L. (2024). New species of tarantulas from Brazil and notes on the Hapalopini tribe. European Journal of Taxonomy 947, 53–87. Dostęp: 2026-10-24.źródło↩
- 34Centers for Disease Control and Prevention NIOSH (2026). Venomous Spiders at Work. Dostęp: 2026-10-24.źródło↩
- 35Mayo Clinic. Spider bites Diagnosis and treatment. Dostęp: 2026-10-24.źródło↩
- 36Victoria State Government, Better Health Channel. Bites and stings first aid. Dostęp: 2026-10-24.źródło↩
- 37Healthdirect Australia. Spider bites treatment symptoms and first aid. Dostęp: 2026-10-24.źródło↩
- 38Mammola S., Michalik P., Hebets E.A., Isaia M. (2017). Record breaking achievements by spiders and the scientists who study them. PeerJ 5, e3972. Dostęp: 2026-10-24.źródło↩
- 39Wang B. i in. (2018). Cretaceous arachnid Chimerarachne yingi gen. et sp. nov. illuminates spider origins. Nature Ecology and Evolution. Dostęp: 2026-10-24.źródło↩
- 40Chen Z. i in. (2018). Prolonged milk provisioning in a jumping spider. Science 362, 1052–1055. Dostęp: 2026-10-24.źródło↩
- 41Genomic signatures of recent convergent transitions to social life in spiders (2022). Nature Communications. Dostęp: 2026-10-24.źródło↩
- 42Spiders of Europe (2026). Argiope bruennichi. Dostęp: 2026-10-24.źródło↩
- 43World Spider Catalog (2026). Dolomedes plantarius. Dostęp: 2026-10-24.źródło↩
- 44Asian Society of Arachnology (2024). Checklists in Asia. Dostęp: 2026-10-24.źródło↩
- 45Natural History Museum. The world’s most extreme spiders. Dostęp: 2026-10-24.źródło↩
- 46Natural History Museum. House spider. Dostęp: 2026-10-24.źródło↩
- 47Australian Museum (2026). Spiders. Dostęp: 2026-10-24.źródło↩
- 48British Arachnological Society (2025). The spiders of Great Britain and Ireland 2025 checklist. Dostęp: 2026-10-24.źródło↩
- 49Osorio Moreno C.M., Casas Hurtado C.M., Villareal Blanco E.R., Universidad del Atlántico (2023). Checklist of Spider in the Caribbean of Colombia. GBIF. Dostęp: 2026-10-24.źródło↩
- 50Ballarin F., Nagai T., Yamasaki T., Eguchi K. (2026). New species and new records of cave-dwelling money spiders from Japan. Zootaxa 5828(3), 401–449. Dostęp: 2026-10-24.źródło↩
- 51Museum of New Zealand Te Papa Tongarewa. Spiders destination New Zealand. Dostęp: 2026-10-24.źródło↩
- 52Secretaria da Saúde do Paraná. Acidentes por Aranhas. Dostęp: 2026-10-24.źródło↩
- 53Australian Museum. Spiders in the House and Garden. Dostęp: 2026-10-24.źródło↩
- 54Natural Earth. Terms of Use; Admin 0 Countries, 1:110m. Dostęp: 2026-10-24.źródło↩
- 55Australian Museum (2025). Net-casting Spiders. Dostęp: 2026-10-24.źródło↩
- 56World Spider Catalog (2026). Argyroneta. Dostęp: 2026-10-24.źródło↩
- 57Nentwig W. i in. (2026). Araneus diadematus. Spiders of Europe, 10.2026. Dostęp: 2026-10-24.źródło↩
- 58Nentwig W. i in. (2026). Salticus scenicus. Spiders of Europe, 10.2026. Dostęp: 2026-10-24.źródło↩
- 59Nentwig W. i in. (2026). Pholcus phalangioides. Spiders of Europe, 10.2026. Dostęp: 2026-10-24.źródło↩
- 60Nentwig W. i in. (2026). Misumena vatia. Spiders of Europe, 10.2026. Dostęp: 2026-10-24.źródło↩
- 61Nentwig W. i in. (2026). Argyroneta aquatica. Spiders of Europe, 10.2026. Dostęp: 2026-10-24.źródło↩
- 62Nentwig W. i in. (2026). Dolomedes plantarius. Spiders of Europe, 10.2026. Dostęp: 2026-10-24.źródło↩
- 63Nentwig W. i in. (2026). Dysdera crocata. Spiders of Europe, 10.2026. Dostęp: 2026-10-24.źródło↩
- 64Bruce M. i in. (2021). Attention and distraction in the modular visual system of a jumping spider. Journal of Experimental Biology 224: jeb231035. Dostęp: 2026-10-24.źródło↩
- 65Stafstrom J.A. i in. (2020). Ogre-Faced, Net-Casting Spiders Use Auditory Cues to Detect Airborne Prey. Current Biology 30: 5033–5039.e3. Dostęp: 2026-10-24.źródło↩
- 66Zhou J. i in. (2022). Outsourced hearing in an orb-weaving spider that uses its web as an auditory sensor. PNAS 119: e2122789119. Dostęp: 2026-10-24.źródło↩
- 67Cross F.R., Jackson R.R. (2019). Portia’s capacity to decide whether a detour is necessary. Journal of Experimental Biology 222: jeb203463. Dostęp: 2026-10-24.źródło↩
- 68Rößler D.C. i in. (2022). Regularly occurring bouts of retinal movements suggest an REM sleep-like state in jumping spiders. PNAS 119: e2204754119. Dostęp: 2026-10-24.źródło↩
- 69Yeargan K.V. (1988). Ecology of a bolas spider, Mastophora hutchinsoni: phenology, hunting tactics, and evidence for aggressive chemical mimicry. Oecologia 74: 524–530. Dostęp: 2026-10-24.źródło↩
- 70Stowe M.K., Tumlinson J.H., Heath R.R. (1987). Chemical mimicry: bolas spiders emit components of moth prey species sex pheromones. Science 236: 964–967. Dostęp: 2026-10-24.źródło↩
- 71Yanoviak S.P., Munk Y., Dudley R. (2015). Arachnid aloft: directed aerial descent in neotropical canopy spiders. Journal of the Royal Society Interface 12: 20150534. Dostęp: 2026-10-24.źródło↩
- 72Lowe E.C., Wilder S.M., Hochuli D.F. (2014). Urbanisation at Multiple Scales Is Associated with Larger Size and Higher Fecundity of an Orb-Weaving Spider. PLOS ONE 9: e105480. Dostęp: 2026-10-24.źródło↩
- 73Krehenwinkel H., Tautz D. (2013). Northern range expansion of European populations of the wasp spider Argiope bruennichi is associated with global warming-correlated genetic admixture and population-specific temperature adaptations. Molecular Ecology 22: 2232–2248. Dostęp: 2026-10-24.źródło↩
- 74Wolz M. i in. (2020). Dispersal and life-history traits in a spider with rapid range expansion. Movement Ecology 8. Dostęp: 2026-10-24.źródło↩
- 75Willmott N.J., Henneken J., Selleck C.J., Jones T.M. (2018). Artificial light at night alters life history in a nocturnal orb-web spider. PeerJ 6: e5599. Dostęp: 2026-10-24.źródło↩
- 76Malumbres-Olarte J., Scharff N., Pape T., Coddington J.A., Cardoso P. (2017; online 2016). Gauging megadiversity with optimized and standardized sampling protocols: A case for tropical forest spiders. Ecology and Evolution 7: 494–506. Dostęp: 2026-10-24.źródło↩
- 77Andersson M. i in. (2017). Biomimetic spinning of artificial spider silk from a chimeric minispidroin. Nature Chemical Biology 13: 262–264. Dostęp: 2026-10-24.źródło↩
- 78Chassagnon I.R. i in. (2017). Potent neuroprotection after stroke afforded by a double-knot spider-venom peptide that inhibits acid-sensing ion channel 1a. PNAS 114: 3750–3755. Dostęp: 2026-10-24.źródło↩
- 79Mason L.D., Wardell-Johnson G., Main B.Y. (2018). The longest-lived spider: mygalomorphs dig deep, and persevere. Pacific Conservation Biology 24: 203–206. Dostęp: 2026-10-24.źródło↩
- 80Fen Raft Spider Conservation (odczyt 2026). Translocated Populations. Dostęp: 2026-10-24.źródło↩
- 81Fen Raft Spider Conservation (odczyt 2026). Redgrave and Lopham Fen. Dostęp: 2026-10-24.źródło↩
- 82IUCN UK Peatland Programme (odczyt 2026). Species showcase: Fen raft spider. Dostęp: 2026-10-24.źródło↩
- 83World Spider Catalog (2026). Hortophora biapicata. Dostęp: 2026-10-24.źródło↩
- 84World Spider Catalog (2026). Trichonephila plumipes. Dostęp: 2026-10-24.źródło↩
- 85Gregorič M., Yu K.-P., Ravelojaona J., Blackledge T.A., Kuntner M. (2025). Extreme Silk Toughness in Caerostris Spiders Is Limited to Adult Females. Integrative Zoology, online 30.11.2025. Dostęp: 2026-10-24.źródło↩
- 86Han S.I., Astley H.C., Maksuta D.D., Blackledge T.A. (2019). External power amplification drives prey capture in a spider web. PNAS 116: 12060–12065. Dostęp: 2026-10-24.źródło↩
- 87Jackson R.R., Nelson X.J., Sune G.O. (2005). A spider that feeds indirectly on vertebrate blood by choosing female mosquitoes as prey. PNAS 102: 15155–15160. Dostęp: 2026-10-24.źródło↩
- 88Chiara V. i in. (2022). A variable refractory period increases collective performance in noisy environments. PNAS 119: e2115103119. Dostęp: 2026-10-24.źródło↩
- 89Garwood R.J. i in. (2016). Almost a spider: a 305-million-year-old fossil arachnid and spider origins. Proceedings B 283: 20160125. Dostęp: 2026-10-24.źródło↩
- 90Huang D. i in. (2018). Origin of spiders and their spinning organs illuminated by mid-Cretaceous amber fossils. Nature Ecology & Evolution 2: 623–627. Dostęp: 2026-10-24.źródło↩
- 91Garrison N.L. i in. (2016). Spider phylogenomics: untangling the Spider Tree of Life. PeerJ 4: e1719. Dostęp: 2026-10-24.źródło↩
- 92Blackledge T.A., Gillespie R.G. (2004). Convergent evolution of behavior in an adaptive radiation of Hawaiian web-building spiders. PNAS 101: 16228–16233. Dostęp: 2026-10-24.źródło↩
- 93Gillespie R.G. (2005). Geographical context of speciation in a radiation of Hawaiian Tetragnatha spiders (Araneae, Tetragnathidae). Journal of Arachnology 33: 313–322. Dostęp: 2026-10-24.źródło↩
- 94Mammola S., Isaia M. (2017). Spiders in caves. Proceedings B 284: 20170193. Dostęp: 2026-10-24.źródło↩
- 95Mammola S., Piano E., Malard F., Vernon P., Isaia M. (2019). Extending Janzen’s hypothesis to temperate regions: A test using subterranean ecosystems. Functional Ecology. Dostęp: 2026-10-24.źródło↩
- 96Kloss T.G. i in. (2017). Proximate mechanism of behavioral manipulation of an orb-weaver spider host by a parasitoid wasp. PLOS ONE 12: e0171336. Dostęp: 2026-10-24.źródło↩
- 97Takasuka K. i in. (2015). Host manipulation by an ichneumonid spider ectoparasitoid that takes advantage of preprogrammed web-building behaviour for its cocoon protection. Journal of Experimental Biology 218: 2326–2332. Dostęp: 2026-10-24.źródło↩
- 98Goetzke H.H., Federle W. (2021). Role of legs and foot adhesion in salticid spiders jumping from smooth surfaces. Journal of Comparative Physiology A 207: 165–177. Dostęp: 2026-10-24.źródło↩
- 99Weihmann T., Günther M., Blickhan R. (2012). Hydraulic leg extension is not necessarily the main drive in large spiders. Journal of Experimental Biology 215: 578–583. Dostęp: 2026-10-24.źródło↩
- 100McCoy D.E. i in. (2019). Structurally assisted super black in colourful peacock spiders. Proceedings B 286: 20190589. Dostęp: 2026-10-24.źródło↩
- 101Hsiung B.-K., Deheyn D.D., Shawkey M.D., Blackledge T.A. (2015). Blue reflectance in tarantulas is evolutionarily conserved despite nanostructural diversity. Science Advances 1: e1500709. Dostęp: 2026-10-24.źródło↩
- 102Girard M.B., Kasumovic M.M., Elias D.O. (2011). Multi-Modal Courtship in the Peacock Spider, Maratus volans (O.P.-Cambridge, 1874). PLOS ONE 6: e25390. Dostęp: 2026-10-24.źródło↩
- 103Dupérré N., Tapia E. (2024). Seven new species of the enigmatic spider genus Paratropis Simon, 1889 (Mygalomorphae, Paratropididae) from Ecuador. Zootaxa 5519: 451–486. Dostęp: 2026-10-24.źródło↩
- 104Zamani A. i in. (2025). New data on the spider fauna of Iran (Arachnida: Araneae), Part XII. Zootaxa 5601: 1–45. Dostęp: 2026-10-24.źródło↩
- 105Do Thi Ha, Dinh Thi Thu Ha, Pham Dinh Sac (2025). Diversity of ground-active spider community across different tropical forest habitats and climate conditions in Northern Vietnam. HNUE Journal of Science 70(2): 138–150. Dostęp: 2026-10-24.źródło↩
- 106Kioko G.M., Marusik Y.M., Li S., Kioko E.N., Ji L. (2021). Checklist of the spiders (Araneae) of Kenya. African Invertebrates 62: 47–229. Dostęp: 2026-10-24.źródło↩
- 107Kioko G., Sese J. (2022). A checklist dataset of the spider species from Kenya. National Museums of Kenya. Dostęp: 2026-10-24.źródło↩
- 108Aguilera M.A., Casanueva M.E. (2005). Arañas chilenas: estado actual del conocimiento y clave para las familias de Araneomorphae. Gayana 69: 201–224. Dostęp: 2026-10-24.źródło↩
- 109MacKenzie D.I. i in. (2002). Estimating site occupancy rates when detection probabilities are less than one. Ecology 83: 2248–2255. Dostęp: 2026-10-24.źródło↩
- 110Chao A. i in. (2014). Rarefaction and extrapolation with Hill numbers: a framework for sampling and estimation in species diversity studies. Ecological Monographs 84: 45–67. Dostęp: 2026-10-24.źródło↩
- 111GBIF (odczyt 2026). Data quality requirements: Occurrence datasets. Dostęp: 2026-10-24.źródło↩
- 112Dupérré N., Tapia E., Bond J.E. (2023). Review of the Spider Genus Linothele (Mygalomorphae, Dipluridae) from Ecuador — An Exceptional Case of Speciation in the Andes. Arthropoda 1: 68–341. Dostęp: 2026-10-24.źródło↩
- 113araneae — Spiders of Europe. Zoropsis spinimana, karta gatunku. Dostęp: 2026-10-24.źródło↩
- 114araneae — Spiders of Europe. Segestria florentina, karta gatunku. Dostęp: 2026-10-24.źródło↩
- 115araneae — Spiders of Europe. Eresus kollari, karta gatunku. Dostęp: 2026-10-24.źródło↩
- 116araneae — Spiders of Europe. Scytodes thoracica, karta gatunku. Dostęp: 2026-10-24.źródło↩
- 117araneae — Spiders of Europe. Pisaura mirabilis, karta gatunku. Dostęp: 2026-10-24.źródło↩
- 118araneae — Spiders of Europe. Tetragnatha extensa, karta gatunku. Dostęp: 2026-10-24.źródło↩
- 119araneae — Spiders of Europe. Uloborus plumipes, karta gatunku. Dostęp: 2026-10-24.źródło↩
- 120araneae — Spiders of Europe. Menemerus semilimbatus, karta gatunku. Dostęp: 2026-10-24.źródło↩
- 121Shamble P.S. i in. (2017). Walking like an ant: a quantitative and experimental approach to understanding locomotor mimicry in the jumping spider Myrmarachne formicaria. Proceedings of the Royal Society B. Dostęp: 2026-10-24.źródło↩
- 122Wood H.M. i in. (2016). Repeated Evolution of Power-Amplified Predatory Strikes in Trap-Jaw Spiders. Current Biology. Dostęp: 2026-10-24.źródło↩
- 123Heiling A.M., Herberstein M.E., Chittka L. (2003). Crab-spiders manipulate flower signals. Nature 421: 334. Dostęp: 2026-10-24.źródło↩
- 124Ma J. i in. (2025). The genomic consequences and persistence of sociality in spiders. Genome Research 35: 499–511. Dostęp: 2026-10-24.źródło↩
- 125Høye T.T., Kresse J.C., Koltz A.M., Bowden J.J. (2020). Earlier springs enable high-Arctic wolf spiders to produce a second clutch. Proceedings of the Royal Society B. Dostęp: 2026-10-24.źródło↩
- 126Vink C.J., McQuillan B.N., Simpson A.H., Correa-Garhwal S.M. (2017). The marine spider, Desis marina (Araneae: Desidae): new observations and localities. The Wētā 51: 71–79. Dostęp: 2026-10-24.źródło↩
- 127World Spider Catalog. Liphistius desultor, karta uznanego gatunku. Dostęp: 2026-10-24.źródło↩
- 128World Spider Catalog. Phidippus audax, karta uznanego gatunku. Dostęp: 2026-10-24.źródło↩
- 129Dippenaar-Schoeman A.S. i in. (2023). Checklist of the spiders (Araneae) of South Africa. African Invertebrates 64. Dostęp: 2026-10-24.źródło↩
- 130Marshall B.M. i in. (2022). Searching the web builds fuller picture of arachnid trade. Communications Biology 5: 448. Dostęp: 2026-10-24.źródło↩
- 131Wood H.M. (2020). Morphology and performance of the trap-jaw cheliceral strikes in spiders (Araneae, Mecysmaucheniidae). Journal of Experimental Biology 223: jeb219899. Dostęp: 2026-10-24.źródło↩
- 132Dukas R., Morse D.H. (2003). Crab spiders affect flower visitation by bees. Oikos 101: 157–163. Dostęp: 2026-10-24.źródło↩
- 133Dukas R., Morse D.H. (2005). Crab spiders show mixed effects on flower-visiting bees and no effect on plant fitness components. Écoscience 12: 244–247. Dostęp: 2026-10-24.źródło↩
- 134Koltz A.M., Classen A.T., Wright J.P. (2018). Warming reverses top-down effects of predators on belowground ecosystem function in Arctic tundra. PNAS 115: E7541–E7549. Dostęp: 2026-10-24.źródło↩
- 135Chiara V., Arrufat P., Jeanson R. (2022). A variable refractory period increases collective performance in noisy environments. PNAS 119: e2115103119. Dostęp: 2026-10-24.źródło↩
- 136Correa-Garhwal S.M. i in. (2019). Spidroins and Silk Fibers of Aquatic Spiders. Scientific Reports 9: 13656. Dostęp: 2026-10-24.źródło↩
- 137Hammond G., Knight K. (2001). Phidippus audax. Animal Diversity Web, University of Michigan. Dostęp: 2026-10-24.źródło↩